A potência crítica (Critical Power, CP) representa um dos conceitos mais relevantes da fisiologia integrativa do exercício, particularmente para a compreensão dos mecanismos bioenergéticos que determinam a relação entre intensidade, duração e tolerância ao esforço. Diferentemente de indicadores que expressam predominantemente a capacidade máxima de um sistema fisiológico, como o consumo máximo de oxigênio (VO₂máx), a CP está associada à maior intensidade para a qual o organismo consegue estabelecer condições relativamente estáveis de determinadas variáveis metabólicas durante o exercício de carga constante. Sua importância reside na identificação de uma transição funcional entre condições nas quais a demanda energética pode ser atendida com relativa estabilidade e aquelas caracterizadas por perturbações progressivas da homeostase muscular, culminando na incapacidade de manutenção da potência requerida (JONES et al., 2010; POOLE et al., 2016).
O conceito fundamenta-se na relação hiperbólica entre potência e tempo até a exaustão, originalmente formalizada por Monod e Scherrer (1965). No modelo clássico de dois parâmetros, a potência crítica corresponde à assíntota da curva potência-tempo, enquanto o parâmetro W′ representa a quantidade finita de trabalho que pode ser realizada acima dessa potência. Matematicamente, essa relação pode ser expressa como \(P=CP+W’/t\), em que P representa a potência desenvolvida, t corresponde ao tempo até a exaustão e W′ é expresso em joules. A relação evidencia que o tempo de tolerância ao exercício não diminui linearmente com o aumento da intensidade. Nas proximidades da CP, pequenas alterações na potência podem produzir modificações expressivas na duração do esforço, particularmente quando a intensidade ultrapassa a fronteira entre os domínios pesado e severo (BURNLEY; JONES, 2018).
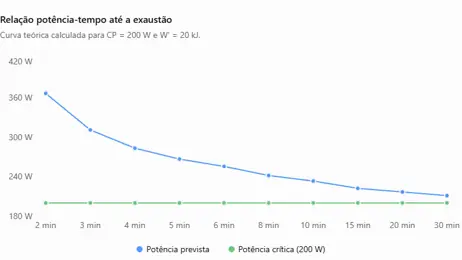
Figura 1 – Relação hiperbólica entre potência e tempo até a exaustão, com identificação da potência crítica e do parâmetro W′.
Fonte: Elaboração própria, com base no modelo de Monod e Scherrer (1965) e na interpretação fisiológica de Burnley e Jones (2018). Valores hipotéticos utilizados exclusivamente para representação matemática.
A Figura 1 demonstra que a CP representa um parâmetro assintótico do modelo, e não uma potência literalmente sustentável por tempo ilimitado. Embora o modelo matemático projete um aumento acentuado do tempo até a exaustão à medida que a potência se aproxima da CP, a duração real do exercício permanece limitada por fatores como disponibilidade de substratos, termorregulação, fadiga neuromuscular e condições ambientais. A validade preditiva do modelo também depende da faixa de duração utilizada para estimar seus parâmetros, não sendo apropriado extrapolá-lo indiscriminadamente para esforços de várias horas.
A relevância fisiológica da CP torna-se particularmente evidente quando comparada ao VO₂máx. Enquanto este representa a maior taxa de consumo de oxigênio alcançada durante o exercício, a CP expressa uma característica da tolerância metabólica a intensidades submáximas elevadas. Indivíduos com valores semelhantes de VO₂máx podem apresentar potências críticas diferentes, refletindo diferenças na capacidade oxidativa muscular, na eficiência mecânica, na cinética do VO₂ e na regulação do metabolismo energético. Consequentemente, a melhora do desempenho em endurance não depende exclusivamente de aumentos do VO₂máx, mas também de adaptações que permitam sustentar potências absolutas mais elevadas sem ultrapassar a fronteira de estabilidade metabólica (POOLE et al., 2016).
A interpretação da CP exige compreender que a ressíntese de adenosina trifosfato (ATP) resulta da participação simultânea da fosforilação oxidativa, da glicólise e do sistema creatina quinase–fosfocreatina. Essas vias não constituem sistemas independentes que se alternam de maneira sequencial. Ao contrário, encontram-se continuamente integradas por mecanismos de regulação bioenergética que respondem às alterações da demanda de ATP, da disponibilidade de ADP, do estado energético celular e das condições metabólicas do músculo esquelético. A contribuição relativa de cada processo modifica-se de acordo com a intensidade, a duração e o padrão de recrutamento muscular (MADER, 2003).
Durante a transição do repouso para o exercício, a elevação praticamente imediata da demanda de ATP não é acompanhada por um aumento instantâneo da fosforilação oxidativa. A diferença transitória entre demanda energética e resposta oxidativa é compensada principalmente pela utilização de PCr e por ajustes no fluxo glicolítico. À medida que a respiração mitocondrial aumenta, ocorre progressiva redução desse desequilíbrio inicial. No domínio moderado, situado abaixo do primeiro limiar metabólico, o VO₂ apresenta uma resposta primária que tende a alcançar estabilidade em poucos minutos, acompanhada por relativa estabilização das concentrações de PCr, fosfato inorgânico (Pi) e outros indicadores da homeostase muscular.
No domínio pesado, compreendido entre o primeiro limiar e a fronteira pesado-severo, a maior demanda de ATP promove respostas metabólicas adicionais. Uma característica importante desse domínio é o aparecimento do componente lento do VO₂, caracterizado por uma elevação adicional do consumo de oxigênio em relação à resposta primária. Esse fenômeno está associado a modificações no custo energético da produção de força, na eficiência contrátil e no recrutamento de unidades motoras, entre outros mecanismos. Entretanto, diferentemente do domínio severo, o componente lento pode apresentar estabilização tardia, permitindo que o exercício prossiga em condições relativamente estáveis (JONES et al., 2010; BURNLEY; JONES, 2018).
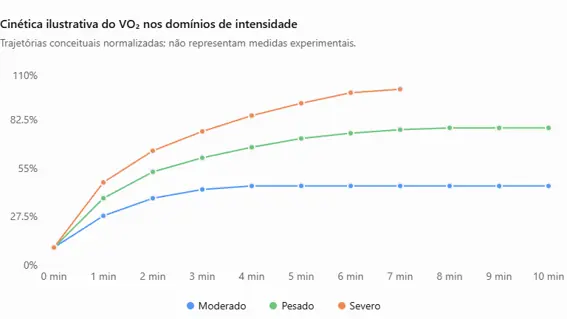
Figura 2 – Representação conceitual da cinética do consumo de oxigênio nos domínios moderado, pesado e severo durante exercício de carga constante.
Fonte: Elaboração própria, fundamentada em Jones et al. (2010), Poole et al. (2016) e Burnley e Jones (2018). Valores normalizados e hipotéticos. A interrupção da curva severa representa a possibilidade de exaustão antes dos demais protocolos.
Conforme ilustrado na Figura 2, a distinção fundamental entre os domínios pesado e severo não reside simplesmente na presença ou ausência do componente lento do VO₂, mas na possibilidade de alcançar um estado metabólico relativamente estável. No domínio pesado, o componente lento pode prolongar a fase de ajuste oxidativo antes da estabilização. No domínio severo, o VO₂ pode continuar aumentando em direção ao VO₂máx, enquanto diferentes variáveis intramusculares apresentam perturbações progressivas. A magnitude e a duração dessas respostas dependem da intensidade relativa, das características individuais e da cinética de ajuste dos sistemas envolvidos. Em intensidades extremas, o exercício pode terminar antes que o VO₂máx seja alcançado.
A compreensão desses fenômenos encontra fundamentos importantes nos modelos bioenergéticos desenvolvidos pela escola de Alois Mader. Desde a década de 1980, essa abordagem procurou interpretar quantitativamente a interação entre demanda de ATP, capacidade oxidativa mitocondrial, atividade glicolítica e dinâmica do lactato. Em sua formulação posterior, Mader (2003) descreveu a regulação da glicólise e da fosforilação oxidativa em função do estado de fosforilação citosólico e da demanda energética da célula muscular. Essa perspectiva contribuiu para superar interpretações excessivamente compartimentalizadas dos sistemas energéticos, reconhecendo que a atividade metabólica resulta da interação contínua entre vias que compartilham intermediários, mecanismos regulatórios e funções celulares.
A contribuição dessa escola é particularmente relevante para compreender que o aumento da intensidade do exercício modifica simultaneamente a taxa de hidrólise de ATP, a cinética de ressíntese energética e o equilíbrio entre produção e utilização de metabólitos. Entretanto, a interpretação contemporânea do componente lento do VO₂ resulta de diferentes linhas de investigação, incluindo estudos de cinética pulmonar, metabolismo muscular, eficiência contrátil e recrutamento neuromuscular. Assim, a relevância histórica de Mader deve ser reconhecida como parte de um desenvolvimento científico cumulativo, sem atribuir exclusivamente a seus modelos a explicação de todos os mecanismos posteriormente identificados.
Outro aspecto fundamental refere-se ao papel da glicólise e do lactato na regulação metabólica. A elevação da concentração sanguínea de lactato não deve ser interpretada como evidência direta de insuficiência de oxigênio, tampouco como demonstração de que o metabolismo oxidativo deixou de atender à maior parte da demanda energética. O lactato constitui um importante intermediário metabólico, continuamente produzido, transportado e utilizado como substrato oxidativo por diferentes células e tecidos. Sua concentração sanguínea representa o resultado dinâmico das taxas de aparecimento e remoção, sendo influenciada pelo fluxo glicolítico, pelo transporte entre compartimentos e pela capacidade de utilização metabólica (BROOKS, 2018).
Da mesma forma, o desenvolvimento da fadiga durante o exercício severo não pode ser atribuído isoladamente à produção de lactato ou ao aumento da concentração de íons hidrogênio. Alterações na disponibilidade de PCr, no acúmulo de Pi, na homeostase iônica, no metabolismo energético e na função contrátil contribuem de maneira integrada para a redução da capacidade de produção de força. A interpretação da CP como fronteira metabólica exige, portanto, considerar o conjunto dessas respostas, evitando relações causais simplificadas entre uma variável isolada e a incapacidade de manutenção do exercício.
Entre as evidências experimentais mais relevantes para compreender essa fronteira encontram-se os estudos que utilizaram espectroscopia de ressonância magnética de fósforo-31 (³¹P-MRS) para acompanhar alterações intramusculares durante o exercício. Essa metodologia permite investigar a dinâmica da PCr, do Pi e do pH intracelular, oferecendo informações sobre o estado energético do músculo esquelético. Quando a intensidade permanece abaixo da CP, observa-se frequentemente uma redução inicial da PCr seguida de estabilização em um novo patamar. Acima da CP, a PCr tende a apresentar diminuição progressiva, acompanhada por alterações contínuas em outros indicadores da homeostase muscular (JONES et al., 2010; POOLE et al., 2016).
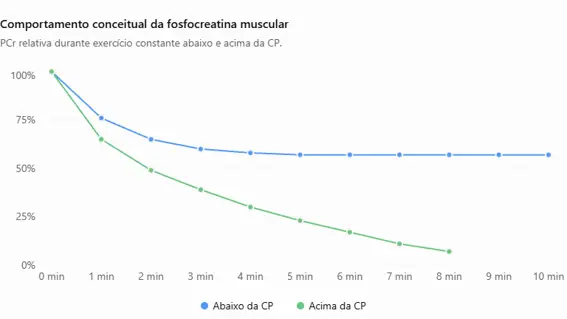
Figura 3 – Comportamento da fosfocreatina muscular durante exercícios realizados abaixo e acima da potência crítica.
Fonte: Elaboração própria, baseada na interpretação fisiológica apresentada por Jones et al. (2010) e Poole et al. (2016). Curvas esquemáticas, sem correspondência com valores experimentais específicos.
A Figura 3 representa uma das distinções bioenergéticas mais importantes associadas à CP. A redução inicial da PCr constitui uma resposta fisiológica ao aumento da demanda de ATP e ocorre mesmo em intensidades sustentáveis. Portanto, a utilização de PCr não caracteriza, isoladamente, o domínio severo. A diferença fundamental está na possibilidade de estabelecer um novo equilíbrio dinâmico entre sua utilização e ressíntese. Abaixo da CP, a concentração de PCr pode estabilizar-se em um patamar inferior ao observado em repouso. Acima dessa intensidade, a manutenção da elevada demanda energética associa-se à redução progressiva da PCr e à perturbação de outras variáveis intramusculares, até que a produção de força requerida não possa mais ser sustentada.
O aumento do Pi durante o exercício severo possui relevância adicional por sua associação com alterações na função contrátil e nos processos de liberação e utilização de cálcio pelo músculo esquelético. Entretanto, a relação entre Pi, PCr, pH e fadiga não deve ser interpretada como uma sequência causal única e invariável. A contribuição relativa desses mecanismos depende das condições experimentais, do tipo de contração, da intensidade e das características do músculo avaliado. O conceito de potência crítica integra essas respostas como manifestações de uma transição fisiológica entre condições de estabilidade e instabilidade metabólica.
A dinâmica de ressíntese da PCr durante a recuperação oferece outra demonstração da importância funcional da CP. Após esforços intensos, a restauração da PCr depende predominantemente da disponibilidade de ATP proveniente da fosforilação oxidativa. Durante a recuperação em repouso, a redução da demanda energética contrátil permite direcionar maior parcela do ATP produzido à ressíntese de PCr. Quando a recuperação é realizada ativamente, sua velocidade e magnitude passam a depender da intensidade do exercício mantido. Em intensidades suficientemente inferiores à CP, pode ocorrer recuperação líquida da PCr, embora geralmente mais lenta do que em repouso. Em intensidades superiores à CP, a elevada demanda energética pode impedir sua recuperação líquida e produzir perturbações metabólicas adicionais.
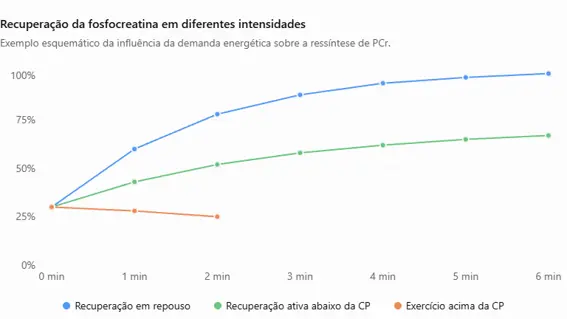
Figura 4 – Influência da intensidade da recuperação sobre a ressíntese de fosfocreatina muscular após exercício intenso.
Fonte: Elaboração própria, fundamentada nos mecanismos de recuperação bioenergética discutidos por Poole et al. (2016) e Burnley e Jones (2018). Trajetórias hipotéticas, sem reprodução de resultados experimentais. A interrupção da curva acima da CP representa a limitação da tolerância ao exercício nessa condição.
Conforme representado na Figura 4, a recuperação da PCr não depende exclusivamente do tempo transcorrido após o esforço, mas também da demanda energética imposta durante o período de recuperação. Essa distinção possui implicações relevantes para a organização do treinamento intervalado, uma vez que a intensidade dos períodos de recuperação influencia a restauração do estado energético muscular e, consequentemente, a capacidade de realizar esforços subsequentes. Entretanto, a recuperação da PCr não deve ser considerada equivalente à recuperação do W′, pois este último representa um parâmetro matemático integrativo cuja dinâmica envolve mecanismos adicionais e apresenta dependência das condições de exercício.
O W′ constitui, nesse contexto, uma medida da capacidade finita de realizar trabalho acima da CP, mas não corresponde diretamente a um reservatório específico de energia anaeróbica. Embora sua magnitude e utilização estejam associadas à dinâmica da PCr, à contribuição glicolítica, à capacidade oxidativa e à tolerância às perturbações metabólicas, não existe correspondência estequiométrica simples entre a depleção de W′ e a utilização de um único substrato energético. Essa distinção é fundamental para evitar interpretações equivocadas do modelo potência-tempo, especialmente quando aplicado à prescrição de esforços intermitentes (BURNLEY; JONES, 2018).
A relação entre CP, W′ e tolerância ao exercício permite compreender por que adaptações relativamente discretas da capacidade metabólica podem produzir modificações expressivas no desempenho. Considerando a equação clássica \(t=W’/(P-CP)\), para potências superiores à CP, um aumento desse limiar reduz a diferença entre a potência exigida e a potência crítica, ampliando o tempo previsto até a exaustão, desde que W′ permaneça constante. A magnitude dessa alteração é particularmente expressiva quando a potência de exercício se encontra próxima da CP. Entretanto, a resposta real ao treinamento pode envolver modificações simultâneas da CP e do W′, não sendo apropriado pressupor que ambos os parâmetros se alterem de maneira independente.
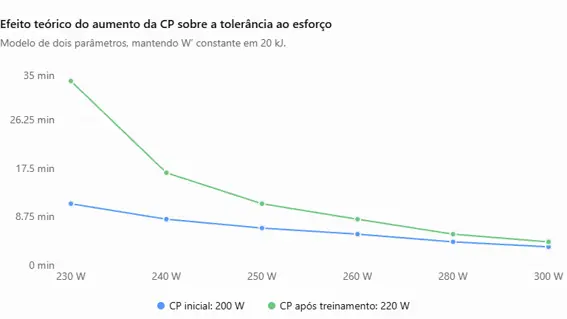
Figura 5 – Efeito matemático de um aumento de 10% na potência crítica sobre o tempo previsto até a exaustão em diferentes intensidades absolutas.
Fonte: Elaboração própria, com base no modelo de Monod e Scherrer (1965). Simulação matemática com CP inicial de 200 W, CP final de 220 W e W′ constante de 20 kJ. Não representa resultados observados em uma intervenção experimental.
A Figura 5 demonstra que o aumento hipotético da CP de 200 para 220 W produz modificações não lineares no tempo previsto até a exaustão. À potência constante de 250 W, por exemplo, o modelo prevê aumento da duração de aproximadamente 6,7 para 11,1 minutos, correspondendo a uma melhora de cerca de 67%, apesar de a CP ter aumentado apenas 10%. Em intensidades mais próximas da nova CP, os efeitos matemáticos tornam-se ainda mais expressivos. Esse comportamento contribui para explicar a importância das adaptações que deslocam a fronteira entre os domínios pesado e severo, mesmo quando as alterações do VO₂máx são relativamente pequenas.
Do ponto de vista experimental, a determinação da CP requer procedimentos metodológicos rigorosos. A estimativa pode ser obtida por meio de esforços máximos realizados em diferentes durações, utilizando modelos matemáticos que descrevem a relação entre potência, trabalho e tempo. Embora dois esforços sejam suficientes para determinar matematicamente os parâmetros do modelo clássico, protocolos com três ou mais esforços máximos oferecem melhores condições para avaliar a consistência dos resultados e a adequação do ajuste. A escolha das durações, a familiarização dos participantes, a padronização das condições experimentais e a confiabilidade da medida de potência são determinantes para a validade das estimativas (VANHATALO; JONES; BURNLEY, 2011).
Também é necessário distinguir a CP de outros indicadores frequentemente utilizados na avaliação do condicionamento aeróbico, como o segundo limiar de lactato (LT2), o máximo estado estável de lactato (MLSS) e a potência funcional de limiar (FTP). Embora esses parâmetros estejam relacionados à capacidade de sustentar intensidades elevadas, apresentam fundamentos conceituais, critérios operacionais e limitações metodológicas diferentes. A proximidade numérica eventualmente observada entre eles não autoriza sua utilização como sinônimos. Particularmente, a FTP constitui uma estimativa operacional empregada no treinamento, enquanto a CP resulta de uma modelagem específica da relação potência-duração, associada a respostas fisiológicas características dos domínios de intensidade (POOLE et al., 2016; BURNLEY; JONES, 2018).
A integração entre medidas de VO₂, potência mecânica, frequência cardíaca, oxigenação muscular e marcadores metabólicos oferece possibilidades adicionais para investigar os mecanismos associados à tolerância ao exercício. Entretanto, essas variáveis apresentam diferentes níveis de especificidade fisiológica. A espectroscopia de infravermelho próximo (NIRS), por exemplo, permite acompanhar alterações relativas da oxigenação e da hemodinâmica muscular, mas não fornece diretamente concentrações de PCr, Pi ou taxas absolutas de ressíntese de ATP. Da mesma forma, a cinética pulmonar do VO₂ representa uma resposta integrada do organismo, cuja interpretação exige considerar a contribuição dos músculos ativos e de outros tecidos. A utilização combinada dessas medidas pode ampliar a caracterização funcional dos domínios de intensidade, desde que respeitadas as limitações de cada tecnologia.
Em síntese, a potência crítica representa uma fronteira fisiológica de elevada relevância para compreender a sustentabilidade metabólica do exercício. Seu significado ultrapassa a descrição matemática da relação entre potência e tempo até a exaustão, envolvendo a integração entre demanda energética, fosforilação oxidativa, glicólise, metabolismo da PCr, recrutamento neuromuscular e manutenção da homeostase intracelular. Os modelos bioenergéticos desenvolvidos pela escola de Alois Mader, juntamente com as investigações posteriores sobre cinética do VO₂, metabolismo muscular e potência crítica, constituem contribuições complementares para a consolidação desse conhecimento.
A ciência contemporânea do treinamento de endurance fundamenta-se precisamente nessa integração entre mecanismos fisiológicos, modelos quantitativos e evidências experimentais. A interpretação isolada de limiares, concentrações de lactato ou zonas de treinamento, desconsiderando seus fundamentos metabólicos e suas limitações metodológicas, reduz a complexidade de processos biológicos que vêm sendo investigados sistematicamente há décadas. A principal contribuição da CP não está apenas em permitir a definição de intensidades de treinamento, mas em oferecer uma estrutura conceitual para compreender por que determinadas demandas energéticas podem ser sustentadas, enquanto outras produzem perturbações progressivas que limitam inevitavelmente a continuidade do exercício.
Referências
BROOKS, George A. The science and translation of lactate shuttle theory. Cell Metabolism, v. 27, n. 4, p. 757–785, 2018. DOI: https://doi.org/10.1016/j.cmet.2018.03.008.
BURNLEY, Mark; JONES, Andrew M. Power–duration relationship: physiology, fatigue, and the limits of human performance. European Journal of Sport Science, v. 18, n. 1, p. 1–12, 2018. DOI: https://doi.org/10.1080/17461391.2016.1249524.
JONES, Andrew M. et al. Critical power: implications for determination of V̇O₂max and exercise tolerance. Medicine & Science in Sports & Exercise, v. 42, n. 10, p. 1876–1890, 2010. DOI: https://doi.org/10.1249/MSS.0b013e3181d9cf7f.
MADER, Alois. Glycolysis and oxidative phosphorylation as a function of cytosolic phosphorylation state and power output of the muscle cell. European Journal of Applied Physiology, v. 88, n. 4–5, p. 317–338, 2003. DOI: https://doi.org/10.1007/s00421-002-0676-3.
MONOD, H.; SCHERRER, J. The work capacity of a synergic muscular group. Ergonomics, v. 8, n. 3, p. 329–338, 1965. DOI: https://doi.org/10.1080/00140136508930810.
POOLE, David C. et al. Critical power: an important fatigue threshold in exercise physiology. Medicine & Science in Sports & Exercise, v. 48, n. 11, p. 2320–2334, 2016. DOI: https://doi.org/10.1249/MSS.0000000000000939.
VANHATALO, Anni; JONES, Andrew M.; BURNLEY, Mark. Application of critical power in sport. International Journal of Sports Physiology and Performance, v. 6, n. 1, p. 128–136, 2011. DOI: https://doi.org/10.1123/ijspp.6.1.128.