A potência crítica (Critical Power — CP) constitui um dos conceitos mais relevantes da fisiologia contemporânea do exercício, particularmente para a compreensão dos limites da tolerância ao esforço, da organização dos domínios de intensidade e dos mecanismos responsáveis pelo desenvolvimento da fadiga muscular. Originalmente formulado a partir da relação matemática entre intensidade e duração do exercício, o conceito evoluiu para um modelo fisiológico capaz de integrar a cinética do consumo de oxigênio, a homeostase dos fosfatos de alta energia, o metabolismo glicolítico, a capacidade oxidativa muscular e as características estruturais da microcirculação.
A literatura acerca dos fundamentos fisiológicos da potência crítica oferece perspectivas complementares sobre esse fenômeno. Enquanto alguns autores enfatizam os determinantes bioenergéticos da relação potência–duração e a interpretação contemporânea do parâmetro W′, outros examinam criticamente a ideia de que a CP corresponderia a uma intensidade sustentável indefinidamente, demonstrando que a existência de um estado estacionário metabólico não implica ausência de fadiga.
A integração dessas abordagens permite compreender a CP não simplesmente como um indicador de desempenho aeróbio, mas como uma fronteira funcional entre diferentes regimes de controle metabólico. Abaixo dessa fronteira, o organismo pode alcançar uma condição relativamente estável de produção e utilização de energia, embora permaneça sujeito à fadiga durante esforços prolongados. Acima dela, a incapacidade de estabilizar determinadas variáveis intracelulares desencadeia perturbações progressivas que limitam a duração do exercício e, frequentemente, conduzem o consumo de oxigênio ao seu valor máximo (JONES et al., 2010; VANHATALO et al., 2011).
Origem histórica e fundamentos matemáticos da relação potência–duração
A origem conceitual da potência crítica está associada aos estudos de Monod e Scherrer (1965), que investigaram a relação entre força, trabalho e tempo de tolerância em exercícios musculares estáticos e dinâmicos. Os autores identificaram uma relação hiperbólica entre a intensidade do esforço e sua duração máxima, sugerindo a existência de uma intensidade assintótica que poderia ser mantida por períodos muito prolongados.
Essa interpretação foi particularmente influente porque estabeleceu uma conexão quantitativa entre a capacidade de produzir trabalho mecânico e a duração durante a qual determinada intensidade poderia ser sustentada. Entretanto, a afirmação original de que a potência crítica corresponderia à maior intensidade sustentável sem fadiga precisa ser interpretada à luz das limitações matemáticas e fisiológicas do modelo.
A relação hiperbólica pode ser expressa pela equação:
P = CP + (W’ / t)
na qual P representa a potência mecânica desenvolvida, CP corresponde à potência crítica, W’ representa a constante de curvatura da relação potência–duração, expressa em joules, e t corresponde ao tempo até a exaustão, em segundos.
Reorganizando a equação, obtém-se:
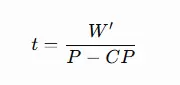
Essa expressão descreve a relação entre o tempo de tolerância ao exercício e a magnitude da potência desenvolvida acima da CP. Quanto maior a diferença entre a potência exigida e a potência crítica, menor será o tempo durante o qual o exercício poderá ser sustentado. Inversamente, à medida que a potência se aproxima da CP por valores superiores, o tempo previsto pelo modelo aumenta acentuadamente.
É fundamental observar, entretanto, que essa equação descreve especificamente a tolerância ao exercício no domínio severo. Quando P = CP, o denominador da equação torna-se zero, impossibilitando a determinação matemática do tempo de exaustão. Portanto, a relação hiperbólica não demonstra que o exercício na potência crítica possa ser mantido indefinidamente. Ela simplesmente deixa de fornecer uma previsão válida nesse ponto.
Essa distinção é central para a interpretação contemporânea do modelo. A CP constitui a assíntota matemática da relação potência–duração, mas não representa uma intensidade na qual os processos fisiológicos responsáveis pela fadiga deixam de existir. A incapacidade do modelo de prever a duração do exercício exatamente na assíntota não invalida sua utilidade; pelo contrário, delimita seu campo de aplicação.
A relação pode também ser apresentada em sua forma linear:
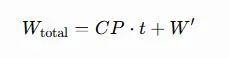
Nessa representação, o trabalho total realizado até a exaustão é relacionado ao tempo de exercício. A inclinação da reta corresponde à CP, enquanto o intercepto representa W′. Essa formulação permite estimar ambos os parâmetros a partir de diferentes testes realizados até o limite de tolerância.
O modelo também pode ser adaptado à corrida por meio da relação velocidade–duração, na qual a velocidade crítica (Critical Speed — CS) representa a assíntota e D′ corresponde à capacidade finita de deslocamento acima dessa velocidade. Embora matematicamente análogos, os parâmetros obtidos em diferentes modalidades não são necessariamente intercambiáveis, pois dependem das características biomecânicas, neuromusculares e metabólicas da tarefa (JONES et al., 2010).
Figura 1. Relação hiperbólica potência–duração
Representação teórica para CP = 250 W e W′ = 20 kJ. A curva aproxima-se da assíntota sem alcançá-la.
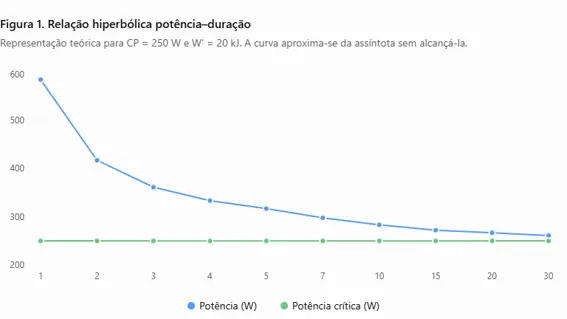
Figura 1 — Reconstrução didática da relação potência–duração apresentada nas palestras. Valores simulados, não provenientes dos participantes dos estudos. Fonte: elaboração conceitual baseada em Monod e Scherrer (1965) e Jones et al. (2010).
A potência crítica como fronteira entre os domínios pesado e severo
O significado fisiológico da potência crítica tornou-se mais claro com o desenvolvimento do conceito de domínios de intensidade, definidos não apenas pela magnitude absoluta do esforço, mas sobretudo pelas respostas dinâmicas dos sistemas respiratório, cardiovascular e muscular.
No domínio moderado, o exercício é realizado abaixo do primeiro limiar metabólico, frequentemente identificado por indicadores ventilatórios ou pela primeira elevação sustentada do lactato sanguíneo. Nessas condições, o consumo de oxigênio aumenta inicialmente e posteriormente alcança um estado estacionário relativamente rápido, enquanto a concentração sanguínea de lactato permanece próxima dos valores basais ou apresenta pequenas alterações.
No domínio pesado, situado entre o primeiro limiar e a potência crítica, ocorre maior perturbação metabólica inicial, acompanhada por aumento do consumo de oxigênio e desenvolvimento de um componente lento do VO2. Entretanto, diferentemente do domínio severo, esse componente pode estabilizar-se em um valor inferior ao VO2 máximo, permitindo a manutenção de um estado estacionário tardio. O lactato sanguíneo também pode permanecer elevado em relação ao repouso, mas tende à estabilização quando a intensidade é suficientemente inferior ao limite superior desse domínio.
A potência crítica delimita, portanto, a transição entre uma condição na qual o organismo consegue estabelecer um novo equilíbrio metabólico e outra na qual determinadas variáveis fisiológicas continuam a se modificar progressivamente.
Acima da CP, a produção de ATP necessária à manutenção da potência mecânica exige uma combinação de processos oxidativos e de fosforilação em nível de substrato cuja dinâmica não permite estabilização completa do ambiente intracelular. A concentração de fosfocreatina diminui progressivamente, o fosfato inorgânico se acumula, o pH muscular tende a declinar e o consumo de oxigênio continua aumentando durante o esforço.
Essa interpretação foi consolidada pelos estudos de Jones et al. (2008), que demonstraram, utilizando espectroscopia de ressonância magnética de fósforo-31, diferenças substanciais nas respostas metabólicas musculares imediatamente abaixo e acima da CP.
A potência crítica deve, assim, ser compreendida como um limiar de estabilidade metabólica, e não como uma intensidade que separa exercício aeróbio de anaeróbio. A produção oxidativa de ATP continua sendo fundamental acima da CP, enquanto processos glicolíticos e outras fontes de ressíntese energética permanecem ativos abaixo dela. A diferença essencial reside na possibilidade de estabilização das respostas metabólicas, e não na ativação exclusiva de determinado sistema energético.
Essa distinção também permite compreender por que a CP apresenta estreita relação fisiológica com a máxima intensidade de estado estável de lactato (maximal lactate steady state — MLSS), embora as duas medidas não sejam obrigatoriamente idênticas. A MLSS é determinada experimentalmente a partir da estabilidade do lactato sanguíneo durante exercícios de carga constante, enquanto a CP resulta do ajuste matemático da relação potência–duração. Diferenças metodológicas, duração dos estágios, variabilidade biológica e características do modelo podem produzir estimativas distintas.
Evidências experimentais da perda de homeostase muscular acima da potência crítica
Uma das contribuições mais importantes para a compreensão mecanística da CP foi apresentada por Jones et al. (2008), em um estudo que investigou diretamente o metabolismo energético muscular durante exercícios realizados acima e abaixo da potência crítica.
Os pesquisadores avaliaram seis homens saudáveis submetidos inicialmente a testes de extensão unilateral do joelho em diferentes intensidades, permitindo estimar uma CP média de aproximadamente 20 ± 2 W. Posteriormente, os participantes realizaram exercícios a 10% abaixo da CP durante 20 minutos e a 10% acima da CP até o limite de tolerância, enquanto as concentrações musculares de fosfocreatina, fosfato inorgânico e o pH eram acompanhados por espectroscopia de ressonância magnética de fósforo-31.
Os resultados demonstraram que, abaixo da CP, as concentrações de fosfocreatina e fosfato inorgânico alcançaram valores relativamente estáveis aproximadamente três minutos após o início do exercício. A concentração final de fosfocreatina correspondeu, em média, a 68 ± 11% do valor basal, enquanto o fosfato inorgânico atingiu 314 ± 216% do valor de repouso. O pH permaneceu próximo da neutralidade, com valor final de 7,01 ± 0,03.
Acima da CP, entretanto, a fosfocreatina continuou diminuindo durante o exercício, alcançando apenas 26 ± 16% do valor basal ao final do esforço. Simultaneamente, a concentração de fosfato inorgânico aumentou para 564 ± 167% do valor de repouso, enquanto o pH diminuiu para 6,87 ± 0,10. O tempo médio de tolerância nessa condição foi de 14,7 ± 7,1 minutos (JONES et al., 2008).
Esses resultados demonstram que a diferença entre os domínios pesado e severo não se limita à intensidade do exercício ou à magnitude absoluta da demanda energética. Ela envolve uma mudança qualitativa na capacidade do músculo de regular seu ambiente bioquímico.
No domínio pesado, o aumento inicial da hidrólise de ATP é acompanhado por ajustes da fosforilação oxidativa que permitem alcançar um equilíbrio dinâmico entre produção e consumo de energia. A fosfocreatina diminui durante a transição inicial, mas posteriormente se estabiliza em um nível inferior ao repouso, refletindo a nova condição de funcionamento metabólico.
No domínio severo, a incapacidade de estabelecer esse equilíbrio determina uma perturbação progressiva das concentrações dos fosfatos de alta energia. A redução contínua da fosfocreatina e o aumento do fosfato inorgânico indicam que a demanda energética e a resposta oxidativa não alcançam uma condição estável compatível com a manutenção prolongada daquela potência.
Figura 2. Fosfocreatina muscular abaixo e acima da CP
Esquema das respostas de PCr ao exercício de carga constante.
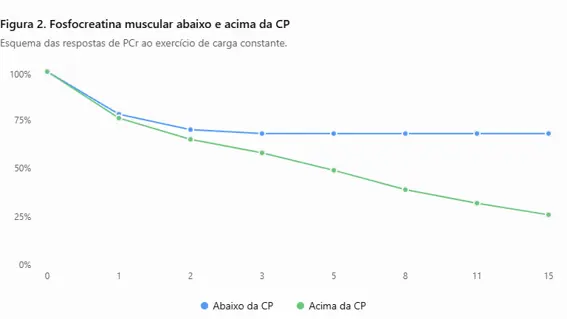
Figura 2 — Representação esquemática da evolução da fosfocreatina (PCr), expressa em percentual do repouso. Os valores finais refletem as médias publicadas por Jones et al. (2008); as trajetórias intermediárias são ilustrativas e não reproduzem os dados originais.
O fosfato inorgânico merece atenção particular porque sua elevação não constitui apenas um indicador passivo do metabolismo energético. O aumento de sua concentração pode comprometer a função contrátil por diferentes mecanismos, incluindo alterações na liberação de cálcio pelo retículo sarcoplasmático, na sensibilidade dos miofilamentos ao cálcio e na produção de força pelas pontes cruzadas actina–miosina.
De maneira semelhante, a redução do pH intracelular acompanha importantes alterações do metabolismo energético. Entretanto, a interpretação contemporânea da fadiga muscular não atribui exclusivamente aos íons hidrogênio a redução da capacidade contrátil. O efeito da acidificação depende da temperatura, das condições celulares e de sua interação com outras alterações metabólicas, particularmente o acúmulo de fosfato inorgânico e as modificações no manejo intracelular de cálcio.
Consequentemente, a perda progressiva da homeostase acima da CP deve ser interpretada como resultado de processos metabólicos interdependentes, e não como consequência isolada do acúmulo de lactato ou da acidificação muscular.
O componente lento do consumo de oxigênio e sua relação com a potência crítica
O componente lento do consumo de oxigênio constitui uma das manifestações sistêmicas mais importantes das perturbações metabólicas que ocorrem durante exercícios de intensidade elevada.
Após o início de um exercício de carga constante, o consumo de oxigênio aumenta em resposta à maior demanda de ressíntese oxidativa de ATP. No domínio moderado, esse ajuste ocorre predominantemente por meio da componente primária da cinética do VO2 que tende a alcançar um estado estacionário relativamente rápido.
No domínio pesado, surge uma elevação adicional do consumo de oxigênio, denominada componente lento, que se desenvolve após a fase inicial de ajuste. Esse fenômeno representa um aumento do custo de oxigênio necessário para sustentar a mesma potência mecânica externa.
No domínio severo, o componente lento assume importância ainda maior, pois a resposta do VO2 não alcança um estado estacionário antes do limite de tolerância. Em exercícios suficientemente prolongados dentro desse domínio, o consumo de oxigênio pode alcançar o VO2 máximo mesmo quando a potência externa permanece constante.
Evidências atuais destacam que essa progressão está relacionada à incapacidade de estabilização do ambiente metabólico muscular. A hidrólise contínua de fosfocreatina, o acúmulo de fosfato inorgânico e as alterações no equilíbrio energético intracelular contribuem para aumentar a estimulação da respiração mitocondrial.
Entretanto, o componente lento não deve ser interpretado simplesmente como uma resposta compensatória à acidose ou a alterações da glicólise. Sua origem é multifatorial e envolve alterações na eficiência contrátil, na distribuição do recrutamento muscular e no custo energético dos processos celulares necessários à manutenção da produção de força.
O recrutamento progressivo de unidades motoras de maior limiar, frequentemente associadas a fibras musculares do tipo II, pode contribuir para o aumento do custo energético do exercício. Essas fibras apresentam, em média, características metabólicas e contráteis distintas das fibras do tipo I, incluindo maior velocidade de encurtamento e maior atividade ATPásica da miosina. Entretanto, o custo metabólico depende também da carga relativa, da frequência de ativação, da eficiência mecânica e das adaptações ao treinamento.
Outro mecanismo potencialmente relevante envolve o aumento do custo energético da manutenção da homeostase iônica e da função contrátil em fibras musculares progressivamente fatigadas. Dessa maneira, parte do aumento do consumo de oxigênio pode estar associada à necessidade de sustentar processos celulares que se tornam energeticamente mais dispendiosos durante o exercício prolongado.
Murgatroyd et al. (2011) demonstraram que as características da cinética pulmonar do oxigênio estão relacionadas à tolerância ao exercício de alta intensidade, reforçando a interpretação de que a rapidez do ajuste oxidativo inicial e a magnitude do componente lento influenciam a relação potência–duração.
Essas observações ajudam a compreender por que intervenções que aceleram a cinética do VO2 e reduzem a magnitude do componente lento podem aumentar a potência crítica. Uma resposta oxidativa mais rápida reduz a necessidade inicial de recorrer intensamente aos mecanismos de transferência energética associados à queda da fosfocreatina e à perturbação metabólica, enquanto uma menor amplitude do componente lento indica menor aumento progressivo do custo de oxigênio para sustentar determinada potência.
Contudo, é importante distinguir associação de causalidade. O componente lento do VO2 e a perda de homeostase muscular compartilham determinantes fisiológicos, mas não representam necessariamente uma relação causal unidirecional. Ambos podem emergir de alterações simultâneas no recrutamento muscular, na eficiência energética e no controle metabólico intracelular.
Figura 3. Cinética do VO₂ nos três domínios de intensidade
Respostas conceituais do consumo de oxigênio durante exercícios de carga constante.
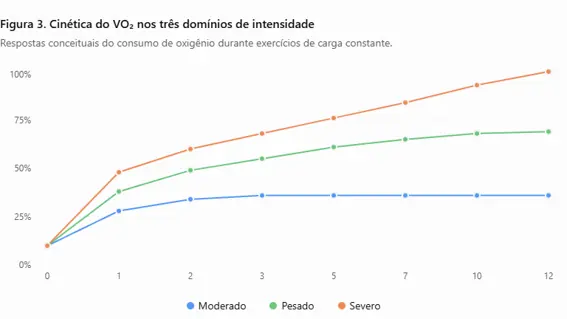
Figura 3 — Representação conceitual do consumo de oxigênio, em escala relativa ilustrativa, durante exercícios nos domínios moderado, pesado e severo. O domínio pesado admite estabilização tardia; no severo, o VO₂ pode atingir seu máximo antes da exaustão. Curvas simuladas, não extraídas dos vídeos.
A potência crítica como limiar de transição dos mecanismos de fadiga muscular
Uma das contribuições mais relevantes dos achados científicos consiste na revisão crítica da afirmação de que exercícios realizados abaixo da potência crítica poderiam ser sustentados sem fadiga.
A manutenção de um estado estacionário metabólico não significa ausência de alterações fisiológicas progressivas. Mesmo quando o consumo de oxigênio, a fosfocreatina e o lactato sanguíneo permanecem relativamente estáveis, processos relacionados à disponibilidade de substratos, à transmissão neuromuscular, ao equilíbrio iônico, à temperatura muscular e à ativação voluntária podem contribuir para o desenvolvimento da fadiga.
Essa distinção foi demonstrada experimentalmente por Burnley, Vanhatalo e Jones (2012), que investigaram as respostas de fadiga neuromuscular durante contrações isométricas intermitentes realizadas acima e abaixo do torque crítico (Critical Torque — CT).
Os pesquisadores utilizaram um protocolo de contrações do quadríceps com três segundos de contração e dois segundos de repouso, introduzindo contrações voluntárias máximas periódicas para avaliar a evolução da capacidade de produção de força. A fadiga periférica foi quantificada por meio da redução do torque produzido por estímulos elétricos duplos aplicados ao músculo após uma contração voluntária máxima, procedimento conhecido como potentiated doublet.
Esse método permite avaliar alterações na capacidade contrátil muscular independentemente da ativação voluntária imediata, fornecendo um indicador da contribuição periférica para a fadiga.
Os resultados demonstraram que, acima do torque crítico, a fadiga periférica se desenvolvia rapidamente, com redução progressiva da resposta contrátil até valores finais relativamente semelhantes, apesar das diferentes intensidades e durações dos esforços.
Abaixo do torque crítico, entretanto, a fadiga também ocorria, mas sua velocidade de desenvolvimento era substancialmente menor. Em determinadas comparações, a taxa de redução da capacidade contrátil foi aproximadamente quatro a cinco vezes mais rápida acima do torque crítico do que nas condições subcríticas (BURNLEY; VANHATALO; JONES, 2012).
Essa observação modifica profundamente a interpretação fisiológica da potência crítica. O conceito não deve ser entendido como uma fronteira entre exercícios que produzem fadiga e exercícios que não produzem fadiga, mas como uma transição entre diferentes padrões de desenvolvimento da fadiga.
Acima do torque crítico, a progressiva perturbação dos fosfatos de alta energia, o acúmulo de fosfato inorgânico e as alterações no acoplamento excitação–contração parecem contribuir intensamente para a redução da capacidade de produção de força. A fadiga periférica desenvolve-se rapidamente e pode alcançar uma magnitude relativamente semelhante no momento da falha da tarefa.
Abaixo do torque crítico, a estabilidade relativa das concentrações dos metabólitos de alta energia não impede o desenvolvimento de fadiga. Entretanto, os mecanismos limitantes parecem envolver uma combinação mais complexa de fatores, incluindo alterações da ativação central, disponibilidade de glicogênio muscular e modificações progressivas da função neuromuscular.
A interpretação é particularmente importante para exercícios prolongados de endurance. Um ciclista pode desenvolver fadiga significativa durante várias horas de exercício abaixo da CP, mesmo sem apresentar aumento progressivo do consumo de oxigênio até o máximo ou perda contínua da homeostase dos fosfatos de alta energia. Nesse contexto, o limite de tolerância depende de mecanismos distintos daqueles predominantes em um esforço severo de curta duração.
Figura 4. Diferentes velocidades de desenvolvimento da fadiga periférica
Ilustração das respostas neuromusculares acima e abaixo do torque crítico.
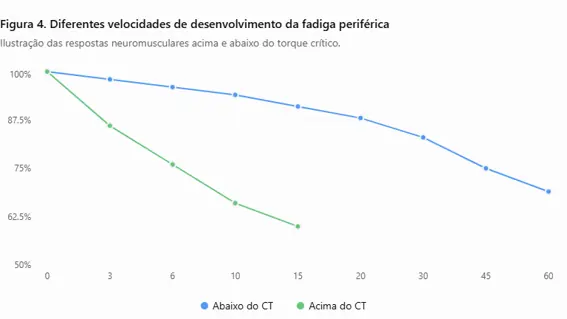
Figura 4 — Representação esquemática da redução relativa da resposta contrátil evocada (potentiated doublet). O declínio é mais rápido acima do torque crítico. Valores ilustrativos, baseados no padrão qualitativo descrito por Burnley, Vanhatalo e Jones (2012), sem reprodução dos dados experimentais originais.
O significado mais amplo desses resultados é que a CP constitui um limiar funcional associado à mudança da dinâmica da fadiga, mas não um ponto absoluto de ausência ou presença de fadiga. Além disso, sua determinação experimental apresenta incertezas estatísticas e variabilidade fisiológica, razão pela qual pequenas diferenças de potência nas proximidades da CP devem ser interpretadas com cautela.
A natureza fisiológica do W′ e sua relação com o metabolismo oxidativo
O segundo parâmetro fundamental da relação potência–duração é o W′, tradicionalmente interpretado como uma reserva finita de trabalho disponível acima da potência crítica.
Na formulação clássica, o W′ foi frequentemente associado à capacidade anaeróbia de produção de energia, especialmente à utilização da fosfocreatina e à glicólise com fosforilação em nível de substrato. Entretanto, essa interpretação é insuficiente para explicar as evidências contemporâneas.
Vanhatalo enfatiza que o W′ não corresponde a um reservatório energético exclusivamente anaeróbio, tampouco a uma quantidade fixa de ATP previamente armazenada no músculo. Trata-se de um parâmetro funcional que expressa a quantidade de trabalho mecânico adicional tolerável acima da CP dentro das condições experimentais utilizadas para sua determinação.
Embora a fosfocreatina e a glicólise contribuam para sustentar esse trabalho adicional, a fosforilação oxidativa continua produzindo ATP durante todo o exercício severo. O aumento progressivo do consumo de oxigênio demonstra que o sistema oxidativo participa ativamente da sustentação do esforço, inclusive durante a utilização do W′.
A quantidade de trabalho disponível acima da CP depende, portanto, da interação entre a produção de energia, o custo energético da contração, a dinâmica de recrutamento muscular e a tolerância às perturbações metabólicas.
A interpretação do W′ como uma capacidade funcional também ajuda a compreender sua sensibilidade às alterações na disponibilidade de oxigênio. Intervenções experimentais envolvendo hipóxia ou hiperóxia podem modificar a CP e o W′, demonstrando que ambos os parâmetros dependem das condições de transporte e utilização de oxigênio.
Entretanto, a relação entre esses parâmetros não é necessariamente linear ou independente. Quando uma intervenção aumenta a CP, parte do trabalho anteriormente realizado acima da assíntota passa a integrar a parcela de potência sustentável, modificando matematicamente a estimativa do W′. Por essa razão, reduções do W′ após determinadas intervenções não devem ser interpretadas automaticamente como diminuição da capacidade energética muscular.
Esse fenômeno pode ser ilustrado considerando um indivíduo com CP de 250 W e W′ de 20 kJ. Durante um exercício constante a 300 W, a potência excedente corresponde a 50 W, de modo que o tempo previsto de tolerância será:
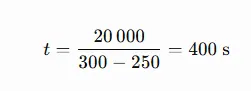
Portanto, o modelo prevê aproximadamente 6 minutos e 40 segundos de exercício nessa intensidade.
Se uma adaptação ao treinamento elevar a CP para 270 W, mantendo hipoteticamente o mesmo W′, a diferença entre a potência exigida e a CP diminuirá para 30 W. O tempo previsto passará então para aproximadamente 11 minutos e 7 segundos.
O exemplo demonstra que pequenas alterações da CP podem produzir modificações substanciais na tolerância ao exercício severo, particularmente quando a potência escolhida está relativamente próxima da assíntota.
Entretanto, na prática, adaptações ao treinamento podem modificar simultaneamente a CP e o W′, de modo que a previsão do desempenho exige considerar ambos os parâmetros.
Determinantes estruturais da potência crítica: fibras musculares, capacidade oxidativa e microcirculação
A associação entre potência crítica e capacidade aeróbia não depende exclusivamente do consumo máximo de oxigênio. A CP expressa também a capacidade do músculo de utilizar o oxigênio disponível para sustentar elevadas taxas de produção oxidativa de ATP sem desenvolver perturbações metabólicas progressivas.
Essa capacidade é influenciada pela composição das fibras musculares, pela densidade e funcionalidade mitocondrial, pela atividade das enzimas oxidativas e pelas características estruturais e funcionais da microcirculação.
As fibras musculares do tipo I apresentam elevada capacidade oxidativa, maior resistência relativa à fadiga e características contráteis que favorecem a produção sustentada de força durante exercícios prolongados. Entretanto, sua contribuição para o desempenho depende também da capacidade de receber oxigênio e substratos metabólicos em quantidade suficiente para sustentar a fosforilação oxidativa.
Nesse contexto, a capilarização muscular representa um determinante particularmente importante. A rede capilar contribui para o transporte convectivo e difusivo de oxigênio, enquanto a proximidade entre capilares e fibras musculares influencia as condições de transferência de oxigênio do sangue para as mitocôndrias.
Mitchell et al. (2018) investigaram a relação entre potência crítica, composição de fibras musculares e características da capilarização em 14 homens treinados em endurance. Os participantes apresentaram CP média de 303 ± 52 W e W′ médio de 17,0 ± 3,0 kJ.
Os pesquisadores observaram correlação positiva entre a CP e a proporção de fibras do tipo I (r = 0,79), assim como entre a CP e a razão capilar/fibra (r = 0,88). Entretanto, a associação mais expressiva ocorreu entre a CP e o número de capilares contatos ao redor das fibras do tipo I, com coeficiente de correlação de r = 0,94.
Esses resultados indicam que a relação entre capacidade oxidativa muscular e potência crítica não depende apenas da proporção de fibras com fenótipo oxidativo, mas também das estruturas vasculares responsáveis pelo fornecimento de oxigênio a essas fibras.
É importante observar que essas associações são correlacionais e não demonstram, isoladamente, que o aumento da capilarização provoque determinado incremento da CP. Entretanto, sua magnitude e coerência fisiológica reforçam a interpretação de que a capacidade de sustentar elevadas taxas de metabolismo oxidativo depende da integração entre as propriedades intrínsecas das fibras musculares e o sistema microvascular que as abastece.
Curiosamente, Mitchell et al. (2018) não identificaram associações significativas entre o W′ e as variáveis morfológicas musculares investigadas. Esse resultado reforça a distinção entre a CP, fortemente relacionada à capacidade oxidativa sustentada, e o W′, cuja determinação envolve mecanismos mais complexos de tolerância ao exercício severo.
Figura 5. Associações entre a potência crítica e características musculares
Coeficientes de correlação publicados por Mitchell et al. (2018).
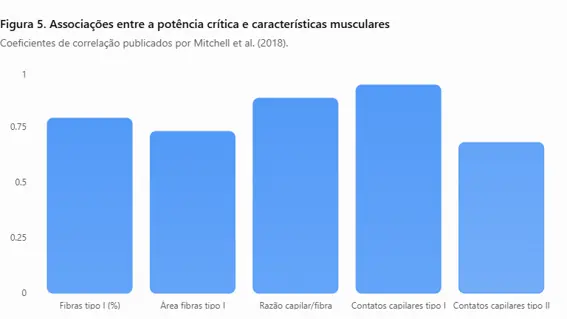
Figura 5 — Coeficientes de correlação observados entre potência crítica e características histológicas do músculo esquelético. Dados publicados por Mitchell et al. (2018), apresentados em formato gráfico adaptado.
Esses achados possuem implicações importantes para a compreensão das adaptações ao treinamento de endurance. O aumento da capacidade oxidativa mitocondrial pode reduzir a perturbação dos fosfatos de alta energia durante exercícios submáximos, enquanto a expansão da rede capilar pode favorecer a disponibilidade de oxigênio e melhorar as condições para sua utilização intracelular.
A associação entre essas adaptações permite sustentar maior potência mecânica antes que a demanda energética ultrapasse a capacidade de estabilização metabólica. Portanto, o aumento da CP pode refletir não apenas maior capacidade mitocondrial, mas também melhorias integradas no transporte de oxigênio, na capacidade oxidativa das fibras musculares e na economia metabólica do exercício.
Determinação experimental da potência crítica e suas aplicações à prescrição do treinamento
A determinação experimental da potência crítica pode ser realizada por diferentes procedimentos, desde protocolos convencionais envolvendo múltiplos esforços até a exaustão até testes máximos de curta duração, como o protocolo all-out de três minutos.
No procedimento convencional, o participante realiza exercícios de carga constante em diferentes intensidades do domínio severo. Cada teste é conduzido até o limite de tolerância, permitindo estabelecer pares de valores de potência e tempo. A partir desses resultados, ajusta-se a relação hiperbólica ou suas transformações lineares para estimar a CP e o W′.
A precisão dessa estimativa depende da seleção adequada das intensidades, da distribuição dos tempos de exaustão, da familiarização do participante e das características do modelo matemático utilizado. A inclusão de esforços demasiadamente curtos ou prolongados pode modificar os parâmetros estimados, particularmente quando os dados não são suficientemente distribuídos ao longo da região da curva que se pretende caracterizar.
Uma alternativa desenvolvida por Vanhatalo, Doust e Burnley (2007) consiste no teste máximo de três minutos realizado em cicloergômetro. Nesse protocolo, o participante desenvolve o maior esforço possível durante toda a duração do teste, sem controlar voluntariamente a distribuição da intensidade. A potência apresenta inicialmente valores muito elevados e diminui progressivamente à medida que a capacidade de realizar trabalho acima da CP é utilizada.
Nos instantes finais, a potência tende a aproximar-se de um patamar relativamente estável, cuja média pode ser utilizada como estimativa da CP. O trabalho acumulado acima desse patamar fornece uma estimativa do W′.
No estudo original, realizado com dez indivíduos fisicamente ativos, a potência média ao final do teste foi de 287 ± 55 W, praticamente idêntica à CP de 287 ± 56 W estimada independentemente por testes convencionais. O trabalho acima da potência final também apresentou correspondência com o W′ calculado pelo modelo tradicional (VANHATALO; DOUST; BURNLEY, 2007).
Apesar de sua praticidade, o teste de três minutos exige condições específicas de execução, configuração adequada do ergômetro e esforço máximo efetivo. Sua validade não deve ser automaticamente extrapolada para protocolos realizados com controle voluntário do ritmo ou equipamentos com características mecânicas diferentes das utilizadas na validação original.
A aplicação da CP à prescrição do treinamento oferece uma alternativa fisiologicamente fundamentada aos modelos baseados exclusivamente em percentuais do VO2 máximo, da frequência cardíaca máxima ou da potência aeróbia máxima.
Dois indivíduos com valores semelhantes de VO2 máximo podem apresentar potências críticas distintas, em função de diferenças na capacidade oxidativa periférica, na economia do movimento, na capilarização muscular e nas características da cinética do consumo de oxigênio. Dessa maneira, a prescrição de intensidades relativas ao VO2 máximo pode produzir respostas metabólicas substancialmente diferentes entre indivíduos.
A CP permite identificar a fronteira entre exercícios nos quais um estado estacionário metabólico pode ser alcançado e aqueles em que a perturbação fisiológica tende a progredir até o limite de tolerância. Essa propriedade é particularmente útil para organizar sessões de treinamento intervalado de alta intensidade e interpretar a tolerância a esforços severos.
Entretanto, a CP não substitui a identificação do primeiro limiar metabólico nem permite, isoladamente, caracterizar todas as zonas de treinamento. Sua principal contribuição consiste em identificar o limite superior do domínio pesado e a entrada no domínio severo. Para a prescrição de treinamento de endurance, sua utilização deve ser integrada a outros indicadores fisiológicos, incluindo a cinética do consumo de oxigênio, os limiares metabólicos e as respostas individuais à duração do exercício.
Integração fisiológica e considerações finais
A evolução do conceito de potência crítica representa uma transição importante na fisiologia do exercício: de um modelo originalmente matemático, utilizado para descrever a relação entre intensidade e duração, para uma estrutura conceitual capaz de integrar fenômenos bioenergéticos, musculares, cardiovasculares e neuromusculares.
A potência crítica não representa a maior intensidade que pode ser sustentada indefinidamente, tampouco um ponto abaixo do qual a fadiga deixa de ocorrer. Sua relevância fisiológica está associada à mudança da dinâmica de controle metabólico e à transição entre diferentes padrões de desenvolvimento da fadiga.
Abaixo da CP, a fosforilação oxidativa pode alcançar uma taxa compatível com a estabilização relativa das concentrações musculares de fosfocreatina, fosfato inorgânico e outros indicadores metabólicos. Entretanto, essa estabilidade não impede o desenvolvimento de fadiga durante exercícios prolongados, particularmente quando fatores relacionados à disponibilidade de substratos, ao controle neuromuscular e às condições sistêmicas passam a limitar a continuidade do esforço.
Acima da CP, a incapacidade de estabelecer um estado estacionário metabólico determina perturbações progressivas nos fosfatos de alta energia, na homeostase intracelular e na função contrátil. Essas alterações acompanham o desenvolvimento do componente lento do consumo de oxigênio e a aproximação do limite de tolerância ao exercício.
O parâmetro W′, por sua vez, não deve ser compreendido como um reservatório exclusivamente anaeróbio, mas como uma expressão funcional da capacidade de realizar trabalho acima da potência crítica. Sua magnitude depende de processos metabólicos integrados, incluindo a contribuição da fosforilação oxidativa, a disponibilidade de fosfatos de alta energia e a tolerância às perturbações associadas ao esforço severo.
As evidências provenientes da espectroscopia de ressonância magnética, das biópsias musculares e dos estudos de fadiga neuromuscular demonstram que a CP constitui uma fronteira fisiológica relevante para compreender a relação entre demanda energética, capacidade oxidativa e estabilidade metabólica.
Particularmente importante é a associação entre potência crítica, proporção de fibras musculares do tipo I e capilarização. Esses resultados reforçam a interpretação de que a capacidade de sustentar elevadas intensidades de exercício depende da integração entre a maquinaria oxidativa muscular e as estruturas microvasculares responsáveis pelo fornecimento de oxigênio.
Portanto, a potência crítica deve ser entendida como uma manifestação funcional da capacidade integrada de transporte, utilização e regulação da energia durante o exercício. Sua importância não reside apenas na previsão matemática do desempenho, mas sobretudo na possibilidade de identificar uma transição fundamental entre condições fisiológicas nas quais o metabolismo pode alcançar estabilidade e aquelas em que a perda progressiva da homeostase limita a tolerância ao esforço.
Referências bibliográficas
Referências organizadas alfabeticamente, em formato autor-data compatível com a ABNT NBR 6023.
BURNLEY, M.; VANHATALO, A.; JONES, A. M. Distinct profiles of neuromuscular fatigue during muscle contractions below and above the critical torque in humans. Journal of Applied Physiology, v. 113, n. 2, p. 215–223, 2012. DOI: https://doi.org/10.1152/japplphysiol.00022.2012.
JONES, A. M. et al. Muscle metabolic responses to exercise above and below the “critical power” assessed using ³¹P-MRS. American Journal of Physiology-Regulatory, Integrative and Comparative Physiology, v. 294, n. 2, p. R585–R593, 2008. DOI: https://doi.org/10.1152/ajpregu.00731.2007.
JONES, A. M. et al. Critical power: implications for determination of VO₂max and exercise tolerance. Medicine & Science in Sports & Exercise, v. 42, n. 10, p. 1876–1890, 2010. DOI: https://doi.org/10.1249/MSS.0b013e3181d9cf7f.
MITCHELL, E. A. et al. Critical power is positively related to skeletal muscle capillarity and type I muscle fibers in endurance-trained individuals. Journal of Applied Physiology, v. 125, n. 3, p. 737–745, 2018. DOI: https://doi.org/10.1152/japplphysiol.01126.2017.
MONOD, H.; SCHERRER, J. The work capacity of a synergic muscular group. Ergonomics, v. 8, n. 3, p. 329–338, 1965. DOI: https://doi.org/10.1080/00140136508930810.
MURGATROYD, S. R. et al. Pulmonary O₂ uptake kinetics as a determinant of high-intensity exercise tolerance in humans. Journal of Applied Physiology, v. 110, n. 6, p. 1598–1606, 2011. DOI: https://doi.org/10.1152/japplphysiol.01092.2010.
VANHATALO, A.; DOUST, J. H.; BURNLEY, M. Determination of critical power using a 3-min all-out cycling test. Medicine & Science in Sports & Exercise, v. 39, n. 3, p. 548–555, 2007. DOI: https://doi.org/10.1249/mss.0b013e31802dd3e6.
VANHATALO, A. et al. Muscle fiber recruitment and the slow component of O₂ uptake: constant work rate vs. all-out sprint exercise. American Journal of Physiology-Regulatory, Integrative and Comparative Physiology, v. 300, n. 3, p. R700–R707, 2011. DOI: https://doi.org/10.1152/ajpregu.00761.2010.