PARTE I — DO TRABALHO EXTERNO AO DOMÍNIO FISIOLÓGICO
1. A sessão de treinamento como dose biológica
O treinamento de endurance pode ser compreendido, em sua essência, como um processo sistemático de exposição do organismo a estímulos fisiológicos suficientemente intensos para produzir perturbação da homeostase, mas suficientemente controlados para permitir recuperação, remodelação estrutural e funcional e posterior aumento da capacidade de suportar o mesmo estímulo com menor custo fisiológico.
O chamado método norueguês não é uma novidade. Trata-se de metodologia cuja caraterística encontra-se menos na existência de um determinado tipo de sessão e mais na precisão com que o estímulo é dosado e integrado ao restante do processo de treinamento. A vantagem biológica dessa distribuição está na possibilidade de acumular enorme quantidade de trabalho sem produzir uma quantidade equivalente de dano muscular, estresse autonômico, perturbação metabólica e necessidade de recuperação. Por outro lado, a concentração de lactato sanguíneo não é simplesmente um marcador de “cansaço” nem uma medida direta da produção total de lactato pelo músculo. Ela representa o resultado dinâmico entre produção, utilização, transporte e remoção do lactato pelos diferentes tecidos.
O conceito fundamental passa a ser, portanto, controle da intensidade interna, e não perseguição de um número mágico. Em sessões lactato-guiadas, a velocidade ou potência externa é ajustada de acordo com a resposta metabólica do atleta. O objetivo é produzir determinada intensidade fisiológica repetidamente, evitando que o atleta ultrapasse inadvertidamente a intensidade que comprometeria a recuperação e reduziria o volume total que poderá ser realizado posteriormente. Essa lógica transforma o lactato em instrumento de feedback aplicado à prescrição da carga externa.
Há, entretanto, uma distinção metodológica essencial entre utilizar o lactato para diagnosticar limiares e utilizá-lo para controlar o treinamento. O primeiro objetivo procura localizar pontos fisiológicos em uma curva incremental; o segundo utiliza a resposta do organismo para regular a sessão e manter a carga dentro de uma faixa desejada. A metodologia norueguesa contemporânea enfatiza particularmente o segundo aspecto. O atleta não precisa necessariamente descobrir um ponto matematicamente perfeito da curva de lactato para que o monitoramento seja útil; ele precisa, sobretudo, compreender como seu organismo responde à relação entre velocidade ou potência, frequência cardíaca, lactato, percepção de esforço e fadiga.
De fato, o problema central do treinamento de alto rendimento não é produzir o maior estresse possível, mas produzir o maior estímulo adaptativo sustentável ao longo de semanas, meses e anos. (TØNNESSEN et al., 2024; FRY et al., 1992). Esse resultado é particularmente relevante para a interpretação do método norueguês. A possibilidade de realizar grande volume de treinamento intensivo não decorre da ausência de estresse, mas da capacidade de manter esse estresse abaixo do ponto em que ele compromete a continuidade do processo. O atleta precisa terminar uma sessão suficientemente estimulado para produzir adaptação, mas suficientemente preservado para realizar o treinamento planejado posteriormente. A fronteira entre estímulo produtivo e carga excessiva é individual, dinâmica e dependente do estado de treinamento.
O processo torna-se circular: prescrição, execução, mensuração, interpretação, ajuste e nova execução. O treinador deixa de ser apenas o prescritor de sessões e passa a atuar como gestor de um sistema adaptativo. A excelência do treinamento de endurance reside, portanto, na capacidade de encontrar individualmente o ponto em que volume, intensidade, frequência, especificidade e recuperação produzem a maior quantidade de trabalho assimilável sem comprometer a continuidade do processo.
Nenhuma variável isolada descreve adequadamente a resposta ao treinamento. O VO₂ informa a taxa de utilização de oxigênio; a frequência cardíaca fornece uma resposta cardiovascular integrada; o lactato fornece informação sobre o estado do metabolismo glicolítico e seu equilíbrio com utilização e remoção; velocidade e potência representam a produção mecânica externa; e a percepção subjetiva fornece informação complementar sobre o estado global do atleta. A interpretação conjunta dessas variáveis é muito mais poderosa do que a análise de qualquer uma delas isoladamente.
A metodologia de endurance pode finalmente ser entendida como uma tentativa de resolver um problema biológico aparentemente paradoxal: produzir o máximo de adaptação possível sem exceder a capacidade de recuperação do organismo. Para uma prova como a maratona, essa integração ganha significado especial. A velocidade competitiva precisa ser suficientemente alta para produzir desempenho, mas suficientemente baixa para preservar estabilidade metabólica, disponibilidade energética, integridade neuromuscular e capacidade termorregulatória durante aproximadamente duas a três horas ou mais. O atleta não compete no VO₂max; compete em uma intensidade submáxima elevada que depende da interação entre VO₂max, utilização fracional, economia e durabilidade.
Tabela 1 — Dimensões complementares da carga de treinamento
| Dimensão | Exemplos | O que informa | Limitação isolada |
| Carga externa | Potência, velocidade, ritmo, distância | Trabalho/tarefa efetivamente realizada | Não informa o custo biológico individual |
| Carga interna cardiovascular | FC, deriva cardíaca | Resposta cardiovascular integrada | Sensível a calor, hidratação, fadiga e altitude |
| Carga interna metabólica | VO₂, lactato, SmO₂ | Custo oxidativo, balanço de lactato, oxigenação local | Cada marcador representa apenas parte do sistema |
| Percepção | RPE, sensação respiratória e muscular | Integração psicofisiológica do esforço | Depende de experiência, contexto e calibração |
2. Zonas, limiares e domínios: o continuum não é uma escada
Toda sessão de treinamento deveria ser concebida a partir de um objetivo biológico claramente definido. Isso significa que a escolha da intensidade, da duração, da densidade e da organização dos estímulos não deve decorrer simplesmente da conveniência de utilizar determinada velocidade, potência, frequência cardíaca ou zona previamente estabelecida, mas da compreensão de quais perturbações fisiológicas o exercício produzirá e quais adaptações se pretende induzir mediante sua repetição ao longo do tempo. O treinamento de endurance modifica progressivamente a estrutura e a função dos sistemas cardiovascular, respiratório, neuromuscular e metabólico, mas essas adaptações não são determinadas exclusivamente pela intensidade. Elas resultam da interação entre intensidade, volume, duração, frequência, recuperação, modalidade esportiva, estado inicial de treinamento e histórico individual do atleta. Nesse contexto, os sistemas de zonas constituem ferramentas práticas para organizar a intensidade do treinamento e relacionar a carga externa produzida à resposta fisiológica interna. Contudo, é fundamental reconhecer que essas zonas não correspondem a compartimentos biológicos rigidamente separados. As variáveis fisiológicas modificam-se continuamente à medida que a intensidade aumenta, e os limiares representam marcadores operacionais de regiões de transição nas quais o comportamento metabólico, ventilatório e cardiovascular sofre modificações relevantes para a tolerância ao exercício e para a prescrição do treinamento (BURNLEY; JONES, 2007; FAUDE; KINDERMANN; MEYER, 2009).
A organização da intensidade do treinamento exige também distinguir claramente carga externa e resposta interna. A potência produzida no ciclismo, a velocidade na corrida ou o ritmo em outras modalidades representam predominantemente a carga externa, isto é, o trabalho que o atleta realiza ou a exigência mecânica à qual é submetido. A frequência cardíaca, por sua vez, representa uma dimensão da resposta cardiovascular, enquanto a percepção subjetiva de esforço integra múltiplas informações aferentes e eferentes relacionadas à experiência psicofisiológica do exercício. Embora frequência cardíaca e RPE sejam extremamente úteis para monitoramento cotidiano, nenhuma dessas variáveis mede diretamente o metabolismo muscular. Um atleta pode apresentar a mesma potência com respostas de frequência cardíaca distintas em consequência da temperatura ambiental, da hidratação, da fadiga acumulada, da disponibilidade energética ou da deriva cardiovascular. Da mesma forma, uma determinada percepção de esforço não permite identificar isoladamente a taxa de glicólise, o recrutamento de unidades motoras ou a utilização relativa dos diferentes substratos energéticos. A determinação de limiares fisiológicos acrescenta, portanto, uma camada importante de individualização à prescrição, desde que seus resultados sejam interpretados dentro das limitações metodológicas e da variabilidade biológica do atleta (AMANN; SECHER, 2010; BOURDON et al., 2017).
O desenvolvimento dos modelos modernos de intensidade esteve historicamente associado à observação da concentração sanguínea de lactato durante exercícios incrementais. Durante décadas, entretanto, a interpretação fisiológica dessa molécula foi marcada pela ideia de que seu aparecimento representaria deficiência de oxigênio, metabolismo anaeróbio e produção de um resíduo responsável pela fadiga muscular. Essa interpretação foi progressivamente abandonada. O lactato é produzido continuamente em diferentes tecidos, inclusive em condições nas quais existe ampla disponibilidade de oxigênio, e constitui um importante intermediário do metabolismo energético. Sua concentração sanguínea em determinado momento não representa simplesmente a quantidade produzida pelo músculo, mas o resultado líquido de processos simultâneos de produção, transporte, captação, conversão e utilização por diferentes tecidos. Assim, uma concentração sanguínea elevada não pode ser interpretada automaticamente como evidência de hipóxia muscular ou de incapacidade mitocondrial absoluta para oxidar substratos. O comportamento do lactato deve ser compreendido como parte de um sistema metabólico integrado no qual diferentes células e tecidos podem simultaneamente produzir, liberar, captar e utilizar essa molécula (BROOKS, 2018; GLADDEN, 2004).
A formação de lactato está diretamente relacionada à interconversão entre piruvato e lactato catalisada pela enzima lactato desidrogenase. Quando o piruvato é convertido em lactato, NADH é oxidado a NAD⁺, contribuindo para a manutenção do estado redox citosólico necessário à continuidade do fluxo glicolítico. Esse processo permite que a glicólise continue fornecendo ATP em situações nas quais a demanda energética é elevada. A produção de lactato, portanto, não deve ser interpretada como uma alternativa metabólica utilizada apenas quando o oxigênio deixa de estar disponível. Fibras musculares metabolicamente oxidativas também podem produzir lactato, ao mesmo tempo em que possuem elevada capacidade para utilizá-lo como substrato energético. A importância dessa molécula tornou-se ainda mais evidente a partir do desenvolvimento do conceito de lactate shuttle, segundo o qual o lactato participa do transporte de carbono e energia entre diferentes compartimentos celulares e entre diferentes tecidos. O músculo esquelético, por exemplo, pode produzir e liberar lactato que posteriormente será utilizado por fibras musculares mais oxidativas, pelo miocárdio ou por outros tecidos capazes de oxidar seus carbonos, enquanto parte pode ser direcionada ao fígado para participação em processos como a gliconeogênese (BROOKS, 1985; BROOKS, 2018; GLADDEN, 2004).
O transporte do lactato através das membranas celulares está fortemente associado à atividade dos transportadores de monocarboxilatos, particularmente MCT1 e MCT4. O MCT1 apresenta elevada expressão em tecidos com grande capacidade oxidativa e participa do transporte bidirecional de monocarboxilatos de acordo com as condições metabólicas e os gradientes existentes. O MCT4, por outro lado, apresenta expressão particularmente elevada em fibras mais glicolíticas e está associado à capacidade de exportar lactato e prótons quando o fluxo glicolítico é elevado. Essa diferença de distribuição contribui para o intercâmbio metabólico entre fibras com diferentes características, mas não permite classificá-las simplesmente como produtoras ou consumidoras exclusivas de lactato. Uma mesma fibra muscular pode produzir e utilizar lactato, e o fluxo líquido dessa molécula depende do equilíbrio momentâneo entre produção, transporte e oxidação. Por essa razão, a concentração de lactato no sangue não identifica diretamente qual tipo de fibra está ativo, mas representa uma manifestação sistêmica de processos metabólicos distribuídos entre diferentes compartimentos do organismo (BONEN, 2001; HALESTRAP; PRICE, 1999; PILEGAARD et al., 1999).
À medida que a intensidade do exercício aumenta, a demanda por ressíntese de ATP também se eleva, produzindo alterações progressivas no fluxo das diferentes vias metabólicas. Em exercícios de baixa intensidade, existe produção contínua de lactato, mas sua utilização e remoção são suficientes para manter concentrações sanguíneas relativamente estáveis. O aumento progressivo da intensidade eleva o fluxo glicolítico e modifica o recrutamento de unidades motoras. Esse recrutamento segue, em linhas gerais, o princípio do tamanho, pelo qual unidades motoras de menor limiar tendem a ser ativadas antes de unidades de maior limiar, embora fatores como exigência de força, potência, velocidade de desenvolvimento de força e fadiga modifiquem a organização funcional desse processo. Não existe, portanto, um percentual universal do VO₂máx — como 40% — no qual fibras tipo IIa necessariamente começam a ser recrutadas e determinam o aparecimento do primeiro limiar de lactato. O recrutamento é progressivo, e fibras tipo I também podem apresentar produção significativa de lactato. O comportamento da curva de lactato deve ser explicado, de maneira mais rigorosa, pela modificação progressiva do equilíbrio entre produção, transporte e utilização à medida que a exigência metabólica aumenta (ENOKA; DUCHATEAU, 2017; GLADDEN, 2004).
O primeiro limiar de lactato, habitualmente denominado LT1, corresponde a uma primeira alteração sistemática no comportamento da concentração sanguínea de lactato durante o exercício incremental. A determinação exata desse ponto depende do método utilizado. Alguns protocolos utilizam o primeiro aumento sustentado acima da linha de base; outros empregam incrementos determinados ou critérios matemáticos. Por essa razão, uma concentração absoluta como 2 mmol·L⁻¹ não deve ser considerada a definição universal do LT1. Em determinados atletas e protocolos, o primeiro limiar pode ocorrer próximo desse valor; em outros, pode ser identificado abaixo ou acima dele. Também não existe uma relação fixa entre LT1 e o percentual do VO₂máx. Atletas altamente treinados tendem, em geral, a sustentar intensidades absolutas e relativas mais elevadas antes que ocorram alterações metabólicas progressivamente importantes, mas a posição do LT1 depende da modalidade, do nível de treinamento, do protocolo e do método de determinação. O significado fisiológico mais relevante é que essa região marca uma mudança detectável no equilíbrio metabólico e frequentemente constitui uma referência útil para separar intensidades de baixa perturbação homeostática de intensidades progressivamente mais exigentes (FAUDE; KINDERMANN; MEYER, 2009; HECK et al., 1985).
A primeira transição metabólica frequentemente apresenta proximidade com o primeiro limiar ventilatório, denominado VT1 ou LV1. Durante o exercício incremental, a ventilação aumenta inicialmente de forma aproximadamente proporcional às necessidades metabólicas e à produção de dióxido de carbono. À medida que a intensidade aumenta e ocorre maior perturbação do equilíbrio ácido-base, o sistema bicarbonato participa do tamponamento de parte da carga de prótons, contribuindo para a formação adicional de CO₂. Essa produção adicional de CO₂ influencia a resposta ventilatória e contribui para as mudanças observadas na relação entre ventilação, VO₂ e VCO₂. Entretanto, seria simplista afirmar que o aumento do CO₂ produzido pelo tamponamento é o único responsável pela transição ventilatória. A ventilação é regulada por mecanismos integrados que incluem comando central, aferências periféricas provenientes da musculatura, quimiorrecepção e outras influências neurais e químicas. LT1 e VT1 representam, portanto, marcadores derivados de métodos diferentes e podem ocorrer em intensidades próximas, mas não devem ser considerados obrigatoriamente idênticos em todos os indivíduos (BEAVER; WASSERMAN; WHIPP, 1986; WASSERMAN et al., 1973).
A relação entre lactato e acidose também requer precisão. A antiga concepção de que o “ácido láctico” seria diretamente responsável pela acidificação muscular e, consequentemente, pela fadiga, não descreve adequadamente a bioquímica do exercício. O lactato não deve ser confundido com a causa direta do aumento da concentração de prótons. A perturbação ácido-base associada ao exercício intenso resulta de processos complexos relacionados à elevada taxa de transformação energética, particularmente à hidrólise de ATP e à capacidade dos sistemas intracelulares e extracelulares de tamponar e transportar as alterações químicas produzidas. A formação de lactato está, historicamente, fortemente associada à acidose porque ambos os fenômenos aumentam durante exercícios de elevada intensidade, mas essa associação não significa que um seja necessariamente a causa direta do outro. O lactato permanece, entretanto, como um marcador extremamente útil da crescente exigência metabólica, pois sua concentração e cinética refletem modificações relevantes no equilíbrio entre produção e utilização de energia (KEMP, 2005; ROBERG et al., 2004).
A região compreendida entre o primeiro e o segundo limiar corresponde, na classificação fisiológica baseada em três domínios, ao domínio pesado. Trata-se de uma faixa de intensidade caracterizada por perturbação homeostática superior à observada abaixo do LT1, mas que ainda pode permitir, em determinadas condições, a manutenção do exercício por períodos relativamente prolongados. Nessa região, a cinética do VO₂ apresenta características distintas, incluindo o desenvolvimento do componente lento, enquanto a concentração de lactato pode elevar-se acima dos valores observados em exercício leve antes de atingir um comportamento compatível com determinada estabilidade relativa. Essa região não deve ser considerada fisiologicamente homogênea, tampouco deve ser demonizada no planejamento do treinamento. Exercícios realizados entre LT1 e LT2 podem ser altamente específicos para diversas modalidades e competições, além de constituírem importantes estímulos para o desenvolvimento da capacidade de sustentar elevada produção aeróbica. O problema surge quando essa intensidade é utilizada de maneira excessiva e não planejada, comprometendo a recuperação necessária para o grande volume de treinamento de baixa intensidade ou reduzindo a qualidade das sessões realizadas em intensidades mais elevadas (BURNLEY; JONES, 2007; SEILER, 2010).
Com o aumento adicional da intensidade, o organismo aproxima-se de uma segunda região de transição frequentemente denominada LT2. Entretanto, essa denominação engloba diferentes métodos de identificação e não existe um único procedimento universalmente aceito para determinar o segundo limiar. Critérios como Dmax, aumento sistemático da concentração de lactato, máximas curvaturas da relação intensidade–lactato e outros métodos podem identificar intensidades semelhantes, mas não necessariamente idênticas. A inflexão mais pronunciada da curva de lactato não deve ser interpretada como evidência de que as mitocôndrias musculares tenham “saturado” e perdido a capacidade de remover lactato. O fenômeno é mais complexo. À medida que a intensidade aumenta, o fluxo glicolítico, o recrutamento de unidades motoras e a produção de lactato podem aumentar em uma magnitude que modifica o equilíbrio entre sua produção e sua utilização pelos diferentes tecidos. Transporte transmembrana, perfusão, capacidade oxidativa e duração da exposição à carga participam simultaneamente desse comportamento. O aumento acelerado da concentração sanguínea representa, portanto, um marcador de crescente perturbação metabólica e da incapacidade de manter determinadas variáveis em estabilidade durante exercício prolongado, e não uma simples “saturação mitocondrial” global (FAUDE; KINDERMANN; MEYER, 2009; GLADDEN, 2004).
A importância fisiológica dessa segunda transição torna-se ainda mais clara quando relacionada ao conceito de máximo estado estável de lactato, ou MLSS. Esse parâmetro é determinado por exercícios realizados em carga constante e procura identificar a maior intensidade em que a concentração sanguínea de lactato pode permanecer relativamente estável segundo critérios previamente definidos. Por essa razão, o MLSS possui grande relevância para a caracterização da fronteira entre intensidades que podem ser sustentadas com estabilidade metabólica relativa e aquelas nas quais a perturbação metabólica progride continuamente. Entretanto, LT2 e MLSS não são automaticamente sinônimos. O LT2 é identificado durante um teste incremental, enquanto o MLSS exige avaliação da resposta do lactato em exercícios de intensidade constante. As intensidades obtidas pelos dois métodos podem ser próximas, mas a equivalência não deve ser presumida individualmente. O mesmo princípio se aplica ao valor histórico de 4 mmol·L⁻¹, associado ao conceito de OBLA. Essa concentração pode ser utilizada como critério operacional e pode aproximar-se de uma importante transição fisiológica em alguns indivíduos, mas não representa uma concentração universal que defina o segundo limiar ou a máxima intensidade sustentável para todos os atletas (BENEKE, 2003; HECK et al., 1985; KEIR et al., 2015).
A potência crítica e a velocidade crítica oferecem outra abordagem para a caracterização da tolerância ao exercício intenso. Esses parâmetros são derivados da relação entre potência ou velocidade e o tempo até a exaustão em diferentes intensidades. A potência crítica é frequentemente associada à fronteira entre os domínios pesado e severo e, por isso, apresenta importante proximidade conceitual com MLSS e determinadas estimativas de LT2. Ainda assim, os parâmetros não são intercambiáveis de forma automática. O MLSS resulta do comportamento do lactato durante exercícios constantes; a potência crítica deriva da relação matemática entre intensidade e duração tolerável; e LT2 depende do critério empregado em teste incremental. Em alguns atletas, esses valores podem apresentar grande proximidade; em outros, diferenças relevantes podem ser observadas. Essa variabilidade possui importância prática, pois pequenas diferenças na potência prescrita próximo a essa região podem produzir grandes diferenças na duração tolerável e na perturbação fisiológica acumulada durante a sessão (KEIR et al., 2015; JONES; VARDAS; DOUGLASS, 2023).
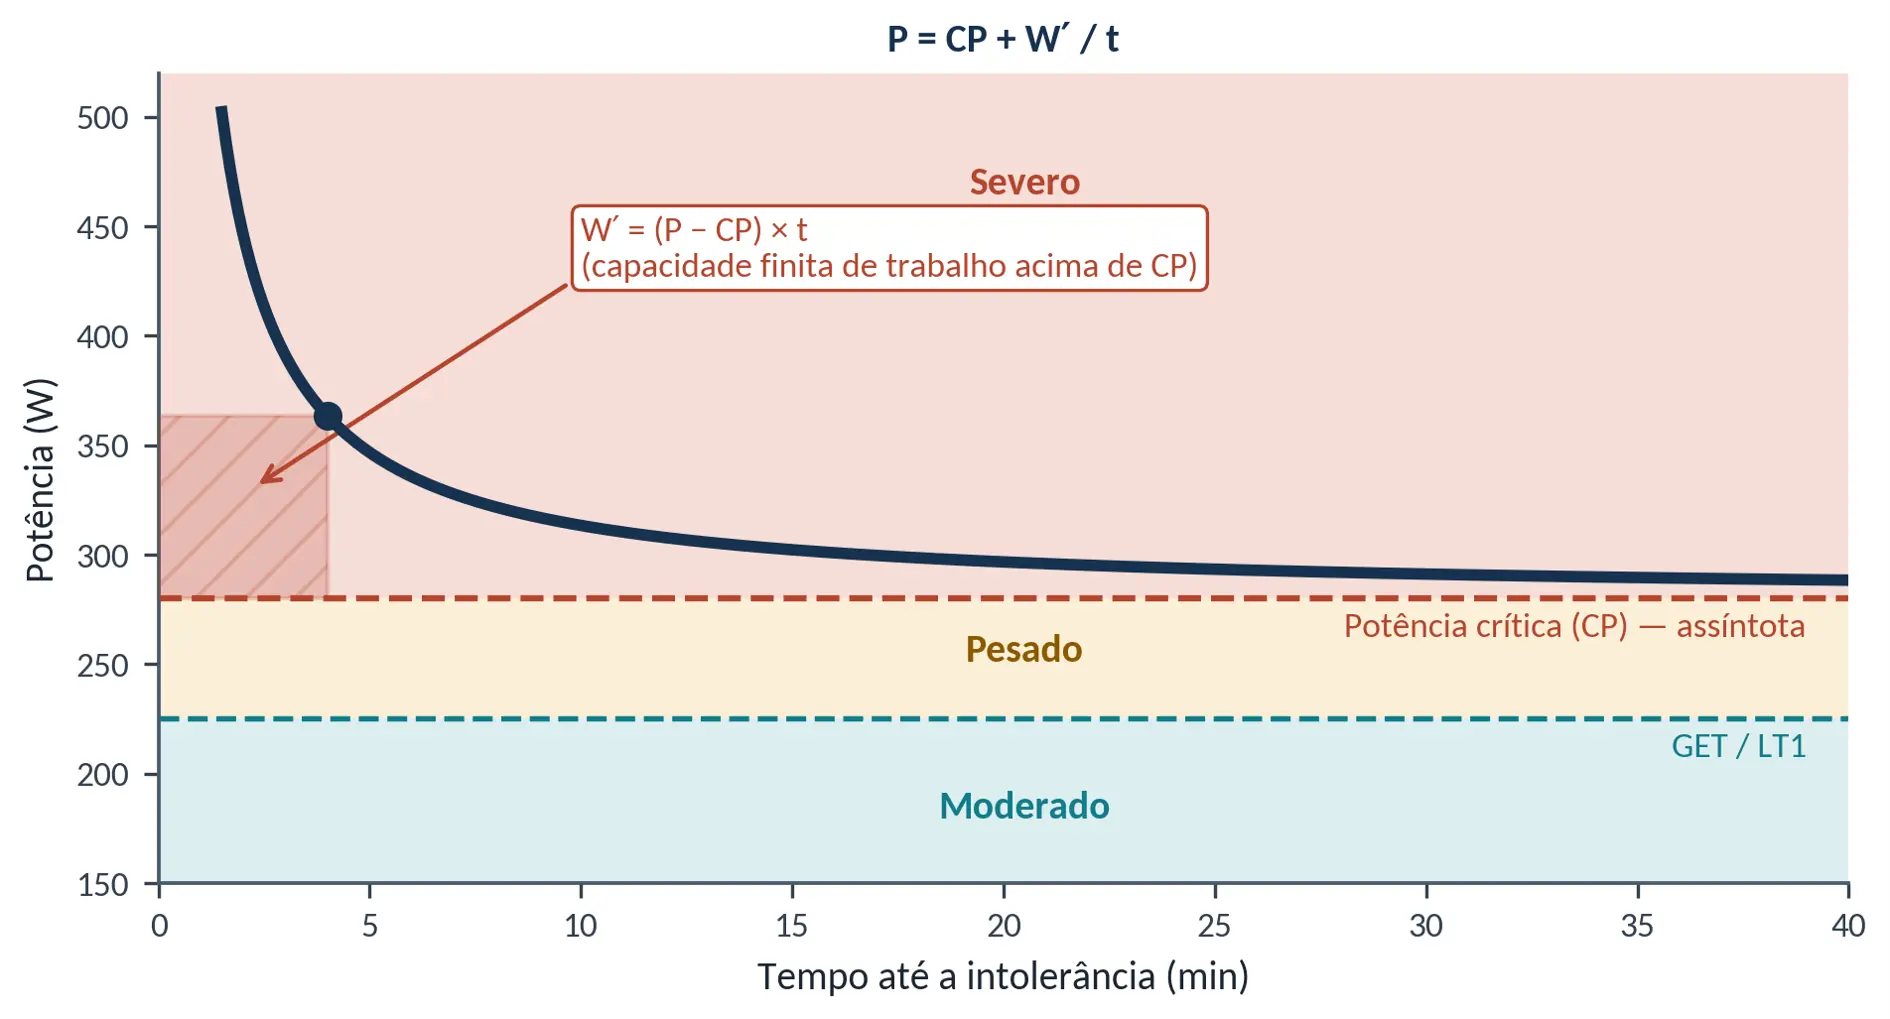
Figura complementar 1 — Relação potência–duração hiperbólica: a potência crítica (CP) delimita os domínios pesado e severo, e W′ representa a capacidade finita de trabalho acima de CP. Curva esquemática. Fonte: elaborada com base em Poole et al. (2016) e Jones et al. (2019).
Quando a intensidade ultrapassa a região de transição associada à fronteira entre os domínios pesado e severo, a estabilidade fisiológica deixa de ser sustentável indefinidamente. A concentração de lactato tende a aumentar progressivamente, a perturbação ácido-base torna-se maior e o componente lento do VO₂ pode conduzir o consumo de oxigênio a valores próximos ou iguais ao máximo, desde que a intensidade e a duração do exercício permitam essa evolução. Isso não significa, entretanto, que todo exercício realizado acima do LT2 conduza obrigatoriamente ao VO₂máx. A tolerância ao esforço pode ser insuficiente para permitir que o VO₂ alcance seu valor máximo, especialmente em exercícios realizados muito acima da intensidade associada ao VO₂máx. Quando o tempo de exercício é suficiente, porém, o domínio severo pode impor elevada solicitação aos sistemas responsáveis pela captação, transporte e utilização de oxigênio, tornando-se particularmente relevante para o desenvolvimento da potência aeróbica e da tolerância ao exercício de alta intensidade (BURNLEY; JONES, 2007; JONES; VARDAS; DOUGLASS, 2023).
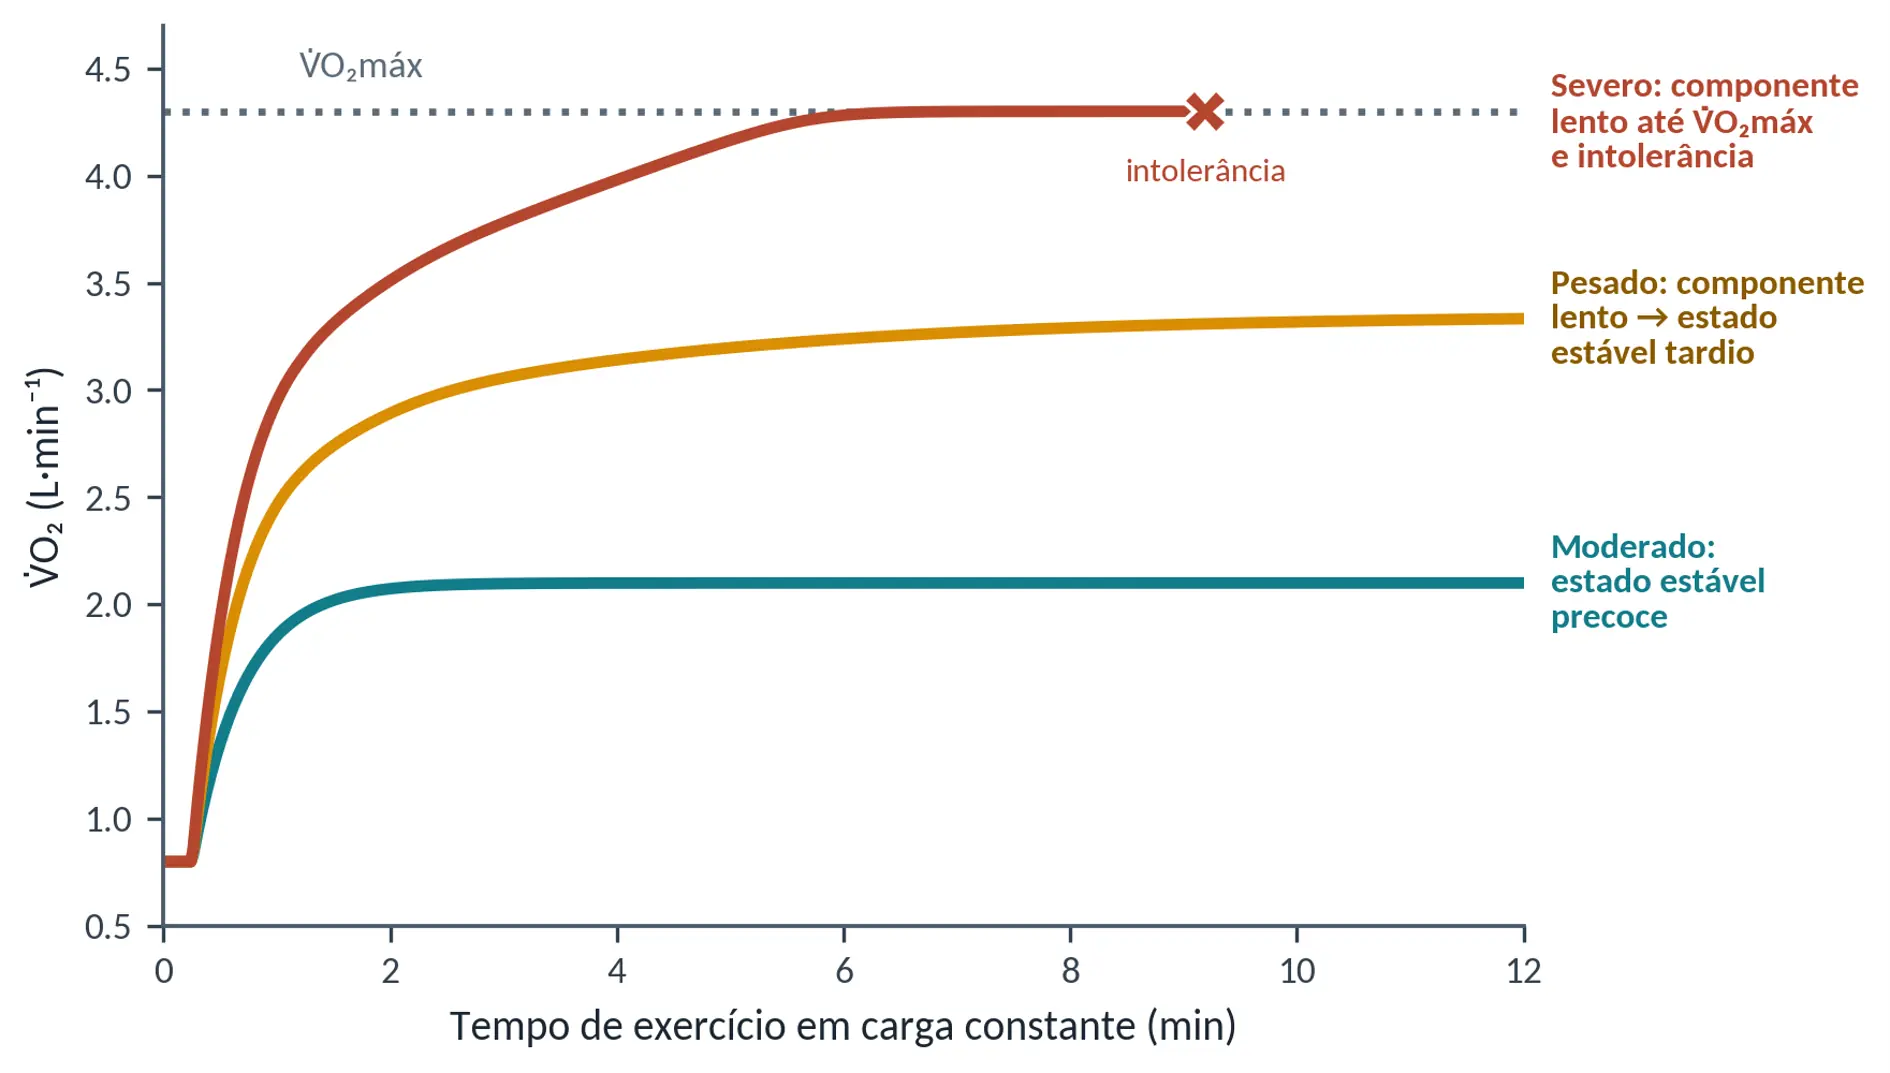
Figura complementar 2 — Cinética do V̇O₂ em carga constante nos domínios moderado, pesado e severo, com destaque para o componente lento. Curvas esquemáticas. Fonte: elaborada com base em Poole e Jones (2012) e Rossiter (2011).
O VO₂ máximo representa a maior taxa de consumo de oxigênio alcançável durante exercício suficientemente intenso e pode ser descrito pela equação de Fick como o produto entre o débito cardíaco e a diferença arteriovenosa de oxigênio. Essa relação demonstra que o desempenho aeróbico máximo depende simultaneamente da capacidade central de transportar oxigênio e da capacidade periférica dos tecidos de extraí-lo e utilizá-lo. O treinamento de endurance pode produzir expansão do volume plasmático, remodelamento cardíaco fisiológico, aumento do volume sistólico e maior capacidade de atingir elevados valores de débito cardíaco durante o exercício máximo. Paralelamente, adaptações periféricas, como aumento da capilarização, do conteúdo mitocondrial e da capacidade oxidativa muscular, contribuem para maior extração e utilização de oxigênio. Atletas de endurance altamente treinados podem apresentar débitos cardíacos máximos próximos ou superiores a 35–40 L·min⁻¹, enquanto indivíduos pouco treinados geralmente apresentam valores substancialmente menores, embora exista grande variabilidade individual. O desempenho, portanto, resulta da integração entre adaptações centrais e periféricas, e não simplesmente da existência de um VO₂máx elevado (BASSETT; HOWLEY, 2000; JOYNER; COYLE, 2008).
As intensidades próximas à potência ou velocidade associada ao VO₂máx são frequentemente organizadas sob a forma de treinamento intervalado porque o exercício contínuo nessa região possui tolerância limitada. Contudo, não existe uma duração universal de três a cinco minutos, nem um número obrigatório de quatro a seis repetições. Protocolos intervalados podem utilizar estímulos de curta ou longa duração, modificando a resposta fisiológica mediante a manipulação da intensidade, do tempo de trabalho, da recuperação e da relação entre trabalho e pausa. Recuperações incompletas podem manter o VO₂ elevado entre os estímulos e aumentar o tempo acumulado em elevada fração do consumo máximo de oxigênio, enquanto pausas mais longas permitem maior recuperação metabólica e podem favorecer maior potência ou velocidade durante cada repetição. Dessa forma, duas sessões realizadas na mesma intensidade nominal podem representar estímulos biologicamente bastante diferentes dependendo de sua estrutura intervalada (BUCHHEIT; LAURSEN, 2013; SEILER; TØNNESSEN, 2009).
Os modelos de cinco, seis ou sete zonas representam tentativas de aumentar a resolução prática dentro desse continuum fisiológico. Um modelo simplificado de três zonas organiza a intensidade abaixo do primeiro limiar, entre LT1 e LT2 e acima do segundo limiar. Modelos com maior número de zonas subdividem essas regiões para fins de prescrição, permitindo distinguir intensidades próximas ao primeiro limiar, esforços sustentados próximos ao segundo limiar, trabalho no domínio severo e estímulos ainda mais intensos, nos quais a contribuição anaeróbia assume maior importância relativa. Nenhum número específico de zonas é, por si só, fisiologicamente superior. O modelo mais útil será aquele capaz de fornecer resolução suficiente para os objetivos do treinamento sem criar uma falsa impressão de que cada fronteira operacional corresponde a uma mudança biológica abrupta. A escolha das zonas deve, portanto, estar subordinada à qualidade da avaliação fisiológica e à utilidade prática para o planejamento (SEILER, 2010; TREFF et al., 2019).
A expressão “zona 2” exige atenção especial porque seu significado depende do sistema adotado. Em alguns modelos de cinco zonas, ela corresponde predominantemente a intensidades abaixo do primeiro limiar; em outros, a faixa denominada zona 2 pode apresentar limites diferentes. Por isso, uma discussão cientificamente precisa deve priorizar a relação da intensidade com parâmetros fisiológicos claramente definidos, como LT1, LT2, MLSS ou potência crítica, em vez de pressupor que “zona 2” possui significado universal. Quando o objetivo é acumular elevado volume de trabalho predominantemente aeróbico com perturbação metabólica relativamente baixa, intensidades abaixo ou próximas ao primeiro limiar apresentam grande utilidade. Essa faixa permite prolongar o exercício e repetir sessões com menor custo fisiológico agudo, favorecendo o acúmulo de grande volume de treinamento ao longo de semanas e meses. Essa capacidade de acumular trabalho é um dos principais fundamentos fisiológicos para a predominância do treinamento de baixa intensidade em atletas de endurance (SEILER, 2010; STÖGG; SPERLICH, 2014).
A elevada participação do treinamento de baixa intensidade na preparação de atletas de endurance não significa que exista uma regra universal segundo a qual exatamente 80% do treinamento deva ser realizado em uma determinada zona de um modelo de cinco zonas e 20% exclusivamente em zonas superiores. A proporção frequentemente denominada “80/20” deriva de observações e modelos de distribuição da intensidade nos quais grande parte do volume de treinamento de atletas altamente treinados ocorre abaixo do primeiro limiar, uma parcela relativamente pequena entre LT1 e LT2 e o restante acima da segunda transição. A distribuição observada, entretanto, depende da modalidade, da fase da temporada, do método utilizado para quantificar a intensidade e das características individuais do atleta. Modelos piramidais e polarizados podem ser encontrados em diferentes populações e períodos de treinamento. A questão central não é reproduzir mecanicamente uma proporção, mas organizar o volume e a intensidade de forma que o atleta acumule estímulos suficientes para induzir adaptação sem produzir uma relação estímulo–fadiga incompatível com sua capacidade de recuperação (ROSENBLAT et al., 2019; SEILER, 2010; STÖGG; SPERLICH, 2014).
A intensidade compreendida entre os dois limiares possui papel importante dentro dessa organização. Em determinadas modalidades e competições, uma parcela substancial do desempenho ocorre em intensidades situadas nessa região ou em sua proximidade. O treinamento realizado entre LT1 e LT2 pode desenvolver a capacidade de sustentar elevada produção aeróbica e pode ser particularmente relevante para provas prolongadas realizadas em intensidades próximas ao limiar. O problema não é a existência dessa intensidade no treinamento, mas seu uso indiscriminado. Quando um atleta executa repetidamente sessões em intensidade moderada simplesmente porque considera o treinamento abaixo do primeiro limiar “leve demais”, pode aumentar o custo de recuperação sem produzir volume suficiente em baixa intensidade nem preservar a qualidade necessária para as sessões de alta intensidade. A distribuição racional do treinamento deve, portanto, considerar a especificidade competitiva, o estágio da temporada, a tolerância individual e a interação entre as diferentes sessões dentro do microciclo (MUJIKA, 2010; SEILER, 2010).
O treinamento extensivo predominantemente realizado em intensidades baixas ou moderadas contribui para um conjunto amplo de adaptações cardiovasculares e musculares. O aumento do volume sistólico, a expansão do volume plasmático, o remodelamento cardiovascular associado ao treinamento, a maior densidade capilar e o aumento do conteúdo e da função mitocondrial são algumas das adaptações observadas em resposta ao treinamento de endurance. Entretanto, seria inadequado atribuir cada uma delas exclusivamente a uma única zona. Diferentes intensidades podem ativar mecanismos adaptativos parcialmente sobrepostos, e a magnitude da resposta depende da dose acumulada. A principal vantagem estratégica do treinamento de baixa intensidade reside no fato de permitir grande quantidade de trabalho específico com perturbação homeostática relativamente controlada, criando condições para o desenvolvimento progressivo da capacidade aeróbica e para a inserção de sessões mais intensas sem que todo o programa seja dominado por elevada fadiga residual (JOYNER; COYLE, 2008; PERRY et al., 2010).
As adaptações mitocondriais ilustram claramente essa sobreposição entre intensidade e volume. A contração muscular aumenta a demanda energética e ativa diversas vias de sinalização relacionadas à biogênese mitocondrial e ao aprimoramento da capacidade oxidativa, incluindo mecanismos associados à AMPK, CaMK e PGC-1α. A repetição sistemática do estímulo de endurance pode aumentar o conteúdo mitocondrial, a atividade de enzimas oxidativas e a capacidade muscular de utilizar diferentes substratos para ressintetizar ATP. Exercícios de alta intensidade também podem produzir forte sinalização metabólica e promover adaptações mitocondriais, inclusive em fibras de contração rápida. Portanto, não existe uma divisão fisiológica absoluta na qual o treinamento abaixo do LT1 seja responsável exclusivamente pela formação de adaptações oxidativas nas fibras tipo I e o treinamento intenso tenha como função exclusiva aumentar MCT4 ou a densidade mitocondrial das fibras rápidas. As respostas são específicas, mas também parcialmente sobrepostas, e sua magnitude depende do tipo, da duração e da repetição do estímulo (PILEGAARD et al., 1999; PERRY et al., 2010).
O treinamento modifica também a relação entre produção, transporte e utilização do lactato. O aumento da capacidade oxidativa muscular e as adaptações relacionadas ao transporte de monocarboxilatos podem contribuir para que determinada potência ou velocidade produza menor perturbação metabólica após um período de treinamento. Isso não significa necessariamente que o músculo simplesmente passe a produzir menos lactato em termos absolutos. Em atletas altamente treinados, taxas metabólicas elevadas podem produzir grandes quantidades de lactato durante esforços intensos. A diferença fundamental está na capacidade de utilizar, transportar e equilibrar esse fluxo metabólico. Como consequência, a curva intensidade–lactato pode deslocar-se para intensidades superiores, permitindo que o atleta sustente maior potência ou velocidade antes que ocorra aumento progressivo da concentração sanguínea. Esse deslocamento contribui para explicar por que atletas altamente treinados frequentemente apresentam LT1, LT2 e outras referências de tolerância metabólica em intensidades absolutas muito superiores às observadas em indivíduos menos treinados e, em muitos casos, também em maior fração do VO₂máx (BONEN, 2001; JOYNER; COYLE, 2008).
A melhora do desempenho de endurance, portanto, não pode ser avaliada exclusivamente pelo aumento do VO₂máx. O desempenho depende também da fração do VO₂máx que pode ser sustentada, da economia ou eficiência do movimento, da capacidade de manter a produção mecânica durante fadiga prolongada e de outras características específicas da modalidade. Um atleta pode apresentar pequena alteração do VO₂máx após determinado período de treinamento e, ainda assim, melhorar substancialmente seu desempenho se deslocar os limiares para velocidades ou potências superiores, reduzir o custo energético necessário para produzir determinada carga ou preservar melhor essas relações durante esforços prolongados. Na corrida, utiliza-se frequentemente o conceito de economia de corrida para descrever o custo de oxigênio ou energético associado a determinada velocidade submáxima. No ciclismo, a eficiência mecânica relaciona a energia ou potência mecânica produzida à energia metabólica despendida. Esses conceitos estão relacionados, mas não são sinônimos, e dependem de fatores metabólicos, neuromusculares, biomecânicos e mecânico-elásticos (BASSETT; HOWLEY, 2000; JOYNER; COYLE, 2008).
A noção de durabilidade acrescenta uma dimensão particularmente importante ao entendimento do desempenho em endurance. Os parâmetros fisiológicos são frequentemente determinados em testes realizados quando o atleta se encontra relativamente descansado, mas muitas competições exigem a manutenção da potência, da velocidade e da economia após várias horas de exercício. Durante esforços prolongados, a fadiga pode modificar progressivamente o custo metabólico do movimento, a frequência cardíaca, a utilização de substratos e a capacidade de sustentar determinada intensidade. A durabilidade representa, em termos gerais, a capacidade de preservar o desempenho fisiológico e mecânico apesar da exposição prolongada ao exercício. Isso explica por que sessões extensas e específicas podem desempenhar papel fundamental no planejamento, inclusive quando incorporam períodos realizados em diferentes intensidades ao longo do treino. Uma intensidade que, isoladamente, poderia ser classificada como pertencente à região intermediária pode adquirir significado completamente diferente quando utilizada de forma estratégica após várias horas de exercício, reproduzindo demandas específicas de uma competição (MAUGUIN et al., 2023).
As zonas de treinamento são, por consequência, dinâmicas. Alterações produzidas pelo treinamento podem deslocar LT1, LT2, MLSS, potência crítica e a relação entre frequência cardíaca, potência, velocidade e VO₂. Além disso, a resposta fisiológica a uma determinada carga pode variar diariamente. A disponibilidade de glicogênio, o efeito residual de sessões anteriores, a temperatura ambiental, a hidratação, a altitude, a qualidade do sono e a fadiga acumulada podem modificar a resposta cardiovascular e metabólica. Por essa razão, um valor de potência ou frequência cardíaca obtido em um teste não deve ser interpretado como uma fronteira biológica imutável. A avaliação periódica permite atualizar as zonas de treinamento, enquanto o monitoramento cotidiano por potência, velocidade, frequência cardíaca, RPE e outras medidas fisiológicas disponíveis pode ajudar a identificar discrepâncias entre a carga planejada e a resposta efetivamente produzida pelo organismo (BOURDON et al., 2017).
A utilização integrada dessas informações permite compreender que a prescrição de intensidade não deve se basear em uma única variável. A frequência cardíaca pode informar a resposta cardiovascular; potência e velocidade permitem quantificar a carga externa; RPE informa a percepção global do esforço; o VO₂ caracteriza a resposta metabólica oxidativa; a ventilação pode revelar transições fisiológicas; e o lactato fornece informação sobre o comportamento metabólico resultante do equilíbrio entre sua produção e utilização. Nenhuma dessas variáveis, isoladamente, descreve toda a fisiologia do exercício. A integração de diferentes medidas permite maior resolução para identificar a intensidade que efetivamente está sendo imposta ao organismo e, consequentemente, maior precisão na seleção dos estímulos de treinamento. Essa abordagem é particularmente relevante quando o objetivo é individualizar a prescrição e acompanhar como o atleta responde e se adapta ao longo do processo de preparação (BOURDON et al., 2017; FAUDE; KINDERMANN; MEYER, 2009).
Em síntese, a compreensão científica das zonas de treinamento exige abandonar duas simplificações opostas. A primeira consiste em imaginar que cada zona representa um compartimento fisiológico rigidamente separado, delimitado por concentrações universais de lactato ou percentuais fixos do VO₂máx. A segunda seria concluir que, por representarem transições contínuas, os limiares não possuem utilidade prática. Os limiares permanecem extremamente úteis justamente porque permitem transformar respostas fisiológicas contínuas em referências individualizadas para a organização da carga. LT1, LT2, limiares ventilatórios, MLSS e potência crítica não são sinônimos absolutos, mas representam diferentes perspectivas sobre as transições que ocorrem à medida que aumenta a exigência metabólica e diminui a capacidade de sustentar determinadas intensidades em estado relativamente estável. Quando adequadamente determinados e interpretados, esses parâmetros permitem organizar o treinamento de maneira mais coerente com a fisiologia individual do atleta (BURNLEY; JONES, 2007; FAUDE; KINDERMANN; MEYER, 2009; KEIR et al., 2015).
O lactato ocupa posição central nessa interpretação, mas sua utilização exige abandonar definitivamente a visão de uma molécula residual produzida apenas pela ausência de oxigênio e responsável direta pela fadiga muscular. O lactato é um intermediário metabólico relevante, capaz de participar do transporte de energia e carbono entre diferentes células e tecidos. Sua concentração sanguínea representa o resultado de um equilíbrio dinâmico entre múltiplos processos e, por isso, sua curva durante o exercício incremental pode fornecer informações valiosas sobre mudanças na perturbação metabólica. Entretanto, essa curva não identifica diretamente quais fibras musculares estão sendo recrutadas, não demonstra isoladamente a ocorrência de “saturação” das mitocôndrias e não autoriza a aplicação de valores universais para todos os indivíduos. Seu maior valor está na individualização: compreender como determinado organismo responde ao aumento progressivo da carga e utilizar essa informação para estabelecer intensidades biologicamente coerentes com os objetivos do treinamento (BROOKS, 2018; FAUDE; KINDERMANN; MEYER, 2009; GLADDEN, 2004).
A distribuição da intensidade deve, finalmente, ser compreendida como um problema de dose-resposta e de integração entre estímulos, e não como a defesa de uma zona isolada ou de uma proporção universal. O treinador precisa decidir qual volume pode ser acumulado, quais adaptações devem ser priorizadas, quais intensidades apresentam maior especificidade para a competição e qual quantidade de trabalho intenso pode ser recuperada sem comprometer o restante do programa. O treinamento predominantemente abaixo do primeiro limiar permite acumular grande volume com perturbação fisiológica relativamente controlada e contribui para o desenvolvimento de ampla capacidade aeróbica. O treinamento entre os limiares pode desenvolver a capacidade de sustentar elevada produção aeróbica e atender a demandas específicas de provas prolongadas. O treinamento no domínio severo impõe elevada solicitação cardiorrespiratória e metabólica e pode ser utilizado para desenvolver potência aeróbica, tolerância à alta intensidade e outras adaptações específicas. A excelência na prescrição não reside, portanto, em considerar uma determinada zona intrinsecamente superior às demais, mas em compreender qual perturbação biológica cada estímulo produz, qual adaptação se pretende obter e como as diferentes sessões podem ser combinadas para produzir desempenho superior sem exceder a capacidade individual de recuperação (ROSENBLAT et al., 2019; SEILER, 2010; STÖGG; SPERLICH, 2014).
Tecnologias portáteis e integração da avaliação fisiológica ao controle do treinamento
A crescente compreensão da complexidade das respostas fisiológicas ao exercício reforça a limitação de modelos de prescrição baseados exclusivamente em variáveis externas, como velocidade, potência, distância ou duração. Embora essas variáveis sejam fundamentais para quantificar o trabalho realizado, atletas submetidos à mesma carga externa podem apresentar respostas internas substancialmente diferentes em função do nível de treinamento, da fadiga acumulada, da disponibilidade de substratos, das condições ambientais, da hidratação e de outras características individuais. A evolução das tecnologias portáteis permite, progressivamente, transferir parte da avaliação fisiológica anteriormente restrita ao ambiente laboratorial para o contexto cotidiano de treinamento, possibilitando a integração entre carga externa e múltiplas dimensões da resposta biológica individual. Essa abordagem é particularmente relevante para a individualização do treinamento, uma vez que a prescrição fisiologicamente fundamentada depende não apenas de conhecer a carga aplicada, mas também de compreender como o organismo responde e se adapta a essa carga (BOURDON et al., 2017; BUCHHEIT, 2014).
Dentro dessa perspectiva, a avaliação portátil das trocas gasosas pode ampliar significativamente a resolução fisiológica disponível para treinadores e atletas. Sistemas como o VO₂ Master permitem mensurar o consumo de oxigênio durante exercício realizado fora do laboratório convencional, possibilitando a análise da resposta do VO₂ em diferentes intensidades e a identificação de transições fisiológicas associadas ao comportamento ventilatório e à cinética do consumo de oxigênio. A possibilidade de acompanhar o VO₂ durante modalidades específicas também contribui para reduzir a dependência exclusiva de estimativas indiretas baseadas em frequência cardíaca, velocidade ou potência. É importante, entretanto, interpretar essa tecnologia de acordo com as variáveis efetivamente mensuradas pelo equipamento e suas características metodológicas. No caso do VO₂ Master, a avaliação concentra-se fundamentalmente na mensuração do consumo de oxigênio e das variáveis ventilatórias associadas, não devendo ser apresentada como equivalente a um sistema metabólico completo capaz de determinar diretamente todas as variáveis derivadas da análise simultânea de O₂ e CO₂. Ainda assim, a mensuração portátil do VO₂ pode oferecer informações particularmente relevantes para a avaliação da economia do exercício, da cinética do VO₂, da intensidade correspondente a determinadas frações do VO₂ máximo e da resposta fisiológica a diferentes estruturas de treinamento (BASSETT; HOWLEY, 2000; BURNLEY; JONES, 2007).
A avaliação da oxigenação muscular por espectroscopia no infravermelho próximo acrescenta outra dimensão à análise da resposta ao exercício. O Moxy Monitor permite acompanhar alterações relativas na oxigenação do tecido muscular, particularmente por meio de variáveis como a saturação muscular de oxigênio e o conteúdo total de hemoglobina no volume de tecido avaliado. Essas informações não devem ser interpretadas simplesmente como uma medida direta do “consumo de oxigênio” do músculo, mas como indicadores relacionados ao equilíbrio dinâmico entre a disponibilidade de oxigênio no tecido e sua utilização metabólica. Durante o exercício progressivo, a análise da cinética da oxigenação muscular pode complementar as informações obtidas por potência, frequência cardíaca, VO₂ e lactato, permitindo observar como determinado músculo responde à crescente demanda energética. A utilização integrada dessas medidas pode ser particularmente interessante para investigar diferenças entre atletas, músculos ou condições de exercício, bem como para acompanhar alterações na resposta periférica ao treinamento, desde que sejam respeitadas as limitações inerentes à profundidade de penetração óptica, à composição do tecido e à especificidade do local de avaliação (FERRARI; QUARESIMA, 2012; PERREY; FERRARI, 2018).
O monitoramento da resposta térmica acrescenta ainda uma dimensão importante à avaliação fisiológica, especialmente em situações nas quais a carga ambiental influencia substancialmente a resposta cardiovascular e metabólica ao exercício. O CORE permite estimar continuamente a temperatura corporal central por meio de um sistema portátil baseado na integração de sinais fisiológicos e de transferência de calor, possibilitando acompanhar tendências individuais da carga térmica durante treinamento e competição. A temperatura corporal central não representa uma variável isolada, mas integra processos relacionados à produção metabólica de calor, à transferência de calor para o ambiente e à capacidade termorregulatória individual. Dessa forma, seu acompanhamento pode ser particularmente útil durante exercícios prolongados, treinamento em ambientes quentes e estratégias de aclimatação ao calor. A interpretação dos dados deve considerar, entretanto, que diferentes métodos de estimativa da temperatura corporal possuem características e limitações próprias, e que a temperatura estimada por sensores não deve ser automaticamente tratada como equivalente a uma mensuração invasiva de referência. Ainda assim, o monitoramento contínuo da carga térmica pode fornecer informações relevantes para ajustar intensidade, hidratação, estratégias de resfriamento e exposição ambiental, particularmente quando integrado às demais variáveis fisiológicas e contextuais (CHEUVRONT; HAYMES, 2001; RACINAIS et al., 2015).
A integração dessas tecnologias permite avançar de uma abordagem baseada predominantemente em indicadores isolados para uma análise fisiológica multidimensional. Durante uma mesma sessão, potência ou velocidade podem quantificar a carga externa, a frequência cardíaca pode caracterizar parte da resposta cardiovascular, o VO₂ pode informar diretamente sobre a resposta oxidativa do organismo, a oxigenação muscular pode fornecer informações sobre a dinâmica periférica no tecido avaliado e o monitoramento térmico pode acrescentar a dimensão da carga ambiental e termorregulatória. Nenhuma dessas variáveis substitui completamente as demais. Pelo contrário, o principal potencial científico e aplicado está precisamente na integração das informações. Um atleta que apresenta determinada potência pode, por exemplo, manter o VO₂ relativamente estável enquanto a frequência cardíaca aumenta progressivamente e a temperatura corporal se eleva, configurando uma resposta fisiológica diferente daquela observada em condições ambientais mais favoráveis. Da mesma forma, alterações na oxigenação muscular podem acrescentar informações que não seriam evidentes apenas pela análise da potência ou do VO₂ sistêmico. A avaliação integrada permite, portanto, aproximar a interpretação da complexidade real da fisiologia do exercício (BOURDON et al., 2017; PERREY; FERRARI, 2018).
Sob essa perspectiva, tecnologias como o VO₂ Master, o Moxy Monitor e o CORE não devem ser consideradas simplesmente instrumentos destinados à geração de maior quantidade de dados. Seu valor depende da capacidade de transformar medidas fisiológicas em informação interpretável e aplicável à tomada de decisão. A utilização adequada dessas ferramentas exige compreender o significado fisiológico de cada variável, suas limitações metodológicas e a relação entre a resposta observada e o contexto no qual ela foi produzida. Quando utilizadas dentro de uma estrutura de avaliação individualizada, essas tecnologias podem contribuir para a identificação de intensidades de treinamento, o acompanhamento da resposta aguda às sessões, a avaliação das adaptações ao longo do tempo e o refinamento da prescrição em diferentes condições ambientais e competitivas. A tecnologia, portanto, não substitui o conhecimento fisiológico; sua principal contribuição consiste em ampliar a capacidade de observar, quantificar e interpretar processos que anteriormente permaneciam parcialmente inacessíveis durante o treinamento cotidiano (BOURDON et al., 2017; BUCHHEIT, 2014).
Conclusão
A evolução da fisiologia aplicada ao treinamento de endurance aponta progressivamente para uma abordagem na qual a prescrição não deve depender exclusivamente de classificações genéricas de intensidade ou de valores absolutos de lactato, frequência cardíaca, velocidade e potência. O objetivo central é compreender como cada organismo responde à carga externa e como essa resposta se modifica em função do treinamento, da fadiga, do ambiente e das características individuais. Os limiares fisiológicos, a cinética do VO₂, o comportamento do lactato, a oxigenação muscular e a resposta termorregulatória representam diferentes perspectivas sobre um mesmo sistema biológico em permanente interação.
Nesse contexto, a utilização integrada de tecnologias portáteis pode aproximar a avaliação fisiológica do ambiente real de treinamento. O VO₂ Master, o Moxy Monitor e o CORE representam três dimensões complementares dessa abordagem: a resposta metabólica sistêmica, a dinâmica local da oxigenação muscular e a carga térmica do organismo. Quando interpretadas conjuntamente com potência, velocidade, frequência cardíaca, percepção subjetiva de esforço e, quando apropriado, lactato sanguíneo, essas informações podem contribuir para uma compreensão mais individualizada da relação entre estímulo, resposta e adaptação. O objetivo final não é simplesmente medir mais variáveis, mas reduzir a distância entre a complexidade da fisiologia humana e a precisão com que o treinamento é avaliado, controlado e prescrito (BASSETT; HOWLEY, 2000; BOURDON et al., 2017; PERREY; FERRARI, 2018).
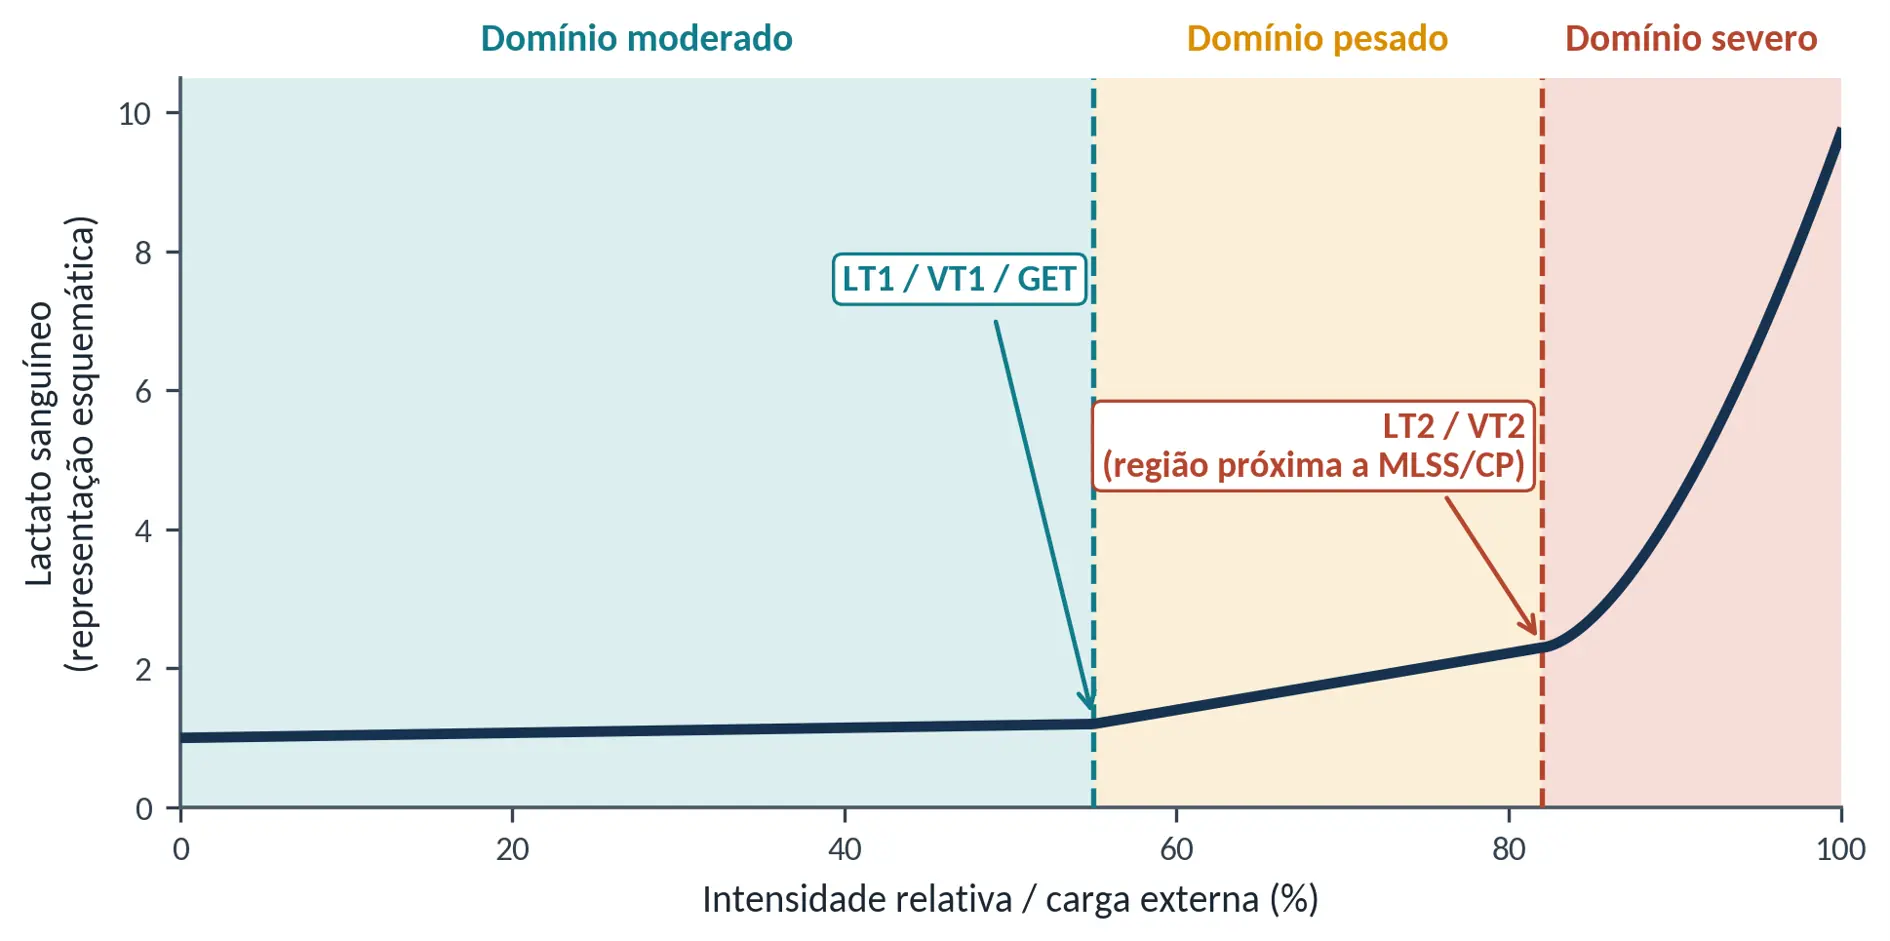
Figura 1 — Continuum conceitual de intensidade, com LT1/VT1/GET e a região do segundo limiar. LT2, MLSS e potência crítica são marcadores relacionados, mas não matematicamente idênticos.
Tabela 2 — Modelo fisiológico de três zonas e domínios de intensidade
| Região | Âncora | Comportamento fisiológico predominante | Tolerância típica |
| Zona 1 / moderado | Abaixo de LT1/VT1/GET | Estado estável de VO₂; lactato próximo do basal; baixo custo autonômico relativo | Longa |
| Zona 2 / pesado | Entre LT1 e LT2 | VO₂ elevado; componente lento possível; lactato pode estabilizar em nível superior | Intermediária |
| Zona 3 / severo | Acima de LT2/CP | Ausência de estado estável metabólico; progressão ao VO₂máx conforme tarefa | Curta |
3. V̇O₂máx, utilização fracional, economia e durabilidade
2. O que é treinável no endurance
A exposição parte da curva potência–duração e da integração dos sistemas energéticos. ATP e fosfocreatina sustentam os segundos iniciais; a glicólise contribui de forma crescente conforme a demanda; e a fosforilação oxidativa domina progressivamente à medida que a duração aumenta. Seiler rejeita a interpretação de “sistemas” independentes: o metabolismo é integrado, e a capacidade aeróbia participa continuamente da restauração dos estoques e da sustentação do trabalho intermitente.
Para esforços de endurance, o modelo clássico combina V̇O₂máx, utilização fracional do V̇O₂máx e economia/eficiência. Um V̇O₂máx elevado amplia o teto de potência metabólica aeróbia; a utilização fracional determina quanto desse teto pode ser sustentado; a economia traduz essa potência metabólica em velocidade ou potência mecânica. Seiler acrescenta a durabilidade: a capacidade de preservar esses atributos após horas de trabalho e fadiga acumulada. A literatura contemporânea trata a durabilidade como dimensão relevante do perfil fisiológico e potencialmente independente das medidas obtidas em estado fresco (MAUNDER et al., 2021).
3. Zonas fisiológicas e dinâmica do lactato
No modelo de três zonas, a primeira região corresponde a intensidades nas quais o lactato é produzido, oxidado e redistribuído sem elevação sustentada no sangue. A ausência de aumento da lactatemia não significa ausência de produção de lactato. Ao ultrapassar LT1, o aparecimento sanguíneo aumenta, mas ainda pode ocorrer novo estado estável; acima de LT2, a taxa sistêmica de aparecimento supera a capacidade de remoção e a tolerância temporal cai acentuadamente. A formulação moderna abandona a noção de lactato como resíduo tóxico e o reconhece como intermediário metabólico e substrato transportável entre células e órgãos.
Seiler conecta as zonas à carga de estresse. O cruzamento de LT1 é acompanhado por alterações autonômicas, hormonais e perceptivas que mudam o custo de recuperação. Assim, a distribuição de intensidade não serve apenas para “mirar” uma via molecular; serve para administrar a quantidade de estresse que o atleta consegue absorver repetidamente.
4. Adaptações em escalas temporais diferentes: V̇O₂máx, limiar e economia
O caso de Paula Radcliffe é utilizado para mostrar que os determinantes do desempenho não evoluem no mesmo ritmo. Em sua trajetória longitudinal, o V̇O₂máx atingiu valores muito altos precocemente e mudou pouco, enquanto a economia de corrida continuou melhorando e a velocidade associada a concentrações submáximas de lactato aumentou. Jones (2006) documentou melhora de aproximadamente 15% na economia de corrida entre 1992 e 2003. O exemplo demonstra por que um atleta pode tornar-se muito mais rápido sem aumentar o V̇O₂máx.
A consequência é uma cronologia aproximada: V̇O₂máx tende a atingir platô relativamente cedo em atletas altamente treinados; limiar/utilização fracional pode continuar evoluindo; economia e eficiência podem amadurecer por muitos anos; e a durabilidade ganha importância em eventos longos. Trata-se de uma generalização, não de uma lei cronológica rígida.
O desempenho de endurance não pode ser reduzido ao V̇O₂máx. O teto aeróbico estabelece a potência metabólica máxima, mas a velocidade ou potência sustentável depende da fração desse teto que pode ser mantida, do custo energético para produzir trabalho externo e da resistência à deterioração desses atributos ao longo da prova. Essa última dimensão — durabilidade — torna explícito que a fisiologia medida em estado fresco não descreve integralmente o atleta após duas, três ou cinco horas de trabalho (MAUNDER et al., 2021).
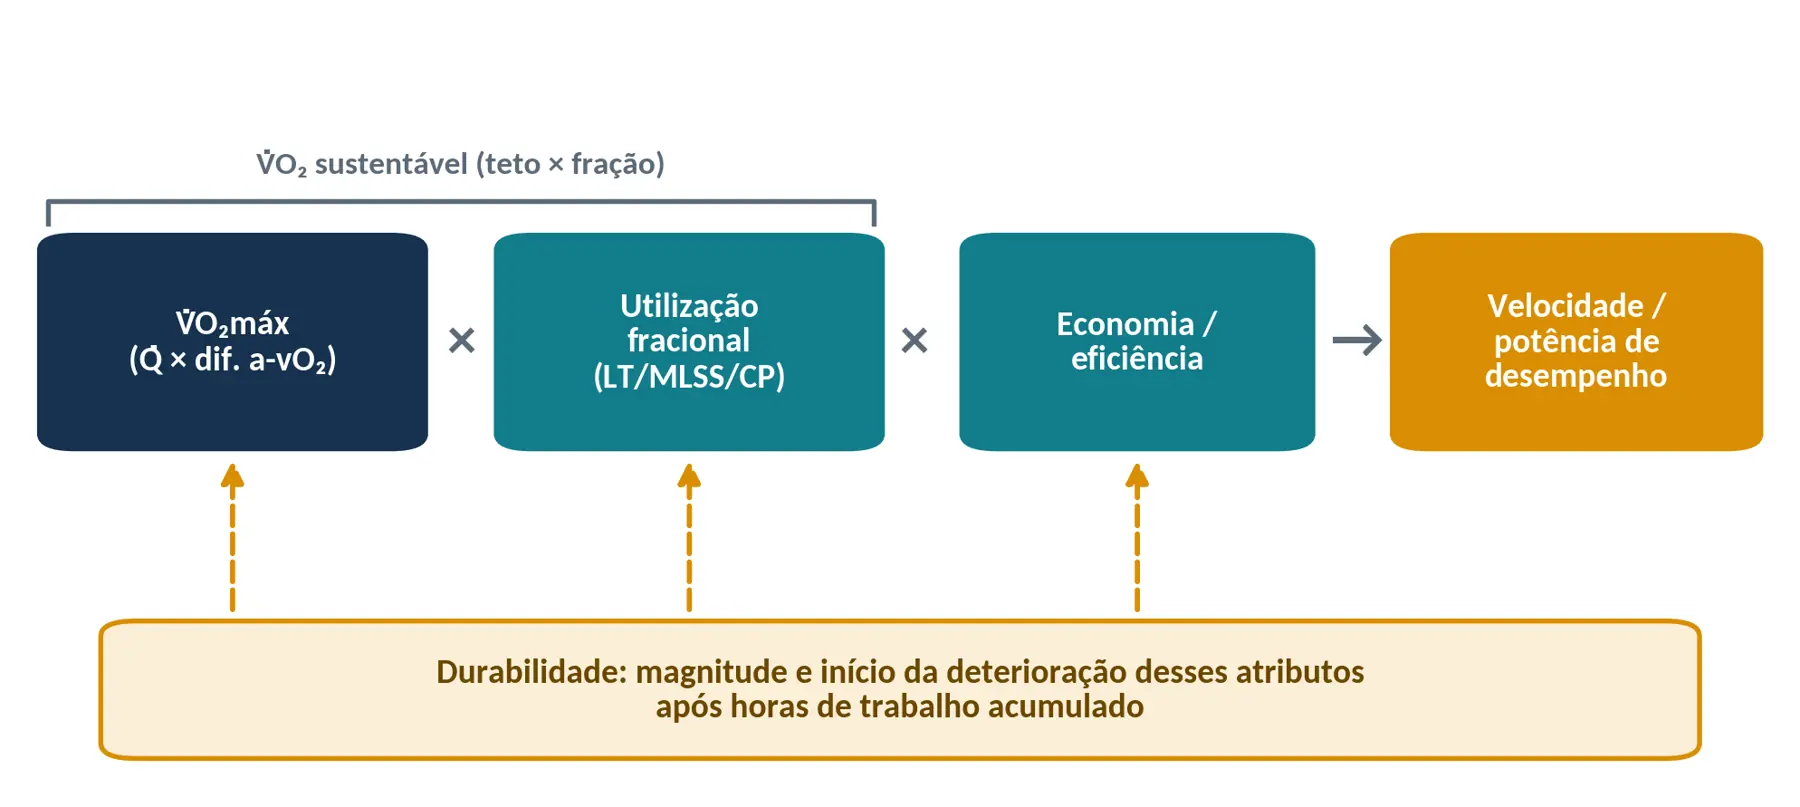
Figura complementar 3 — Modelo integrado dos determinantes do desempenho de endurance, com a durabilidade como dimensão transversal que modula V̇O₂máx, utilização fracional e economia. Fonte: elaborada com base em Coyle (1995) e Joyner e Coyle (2008).
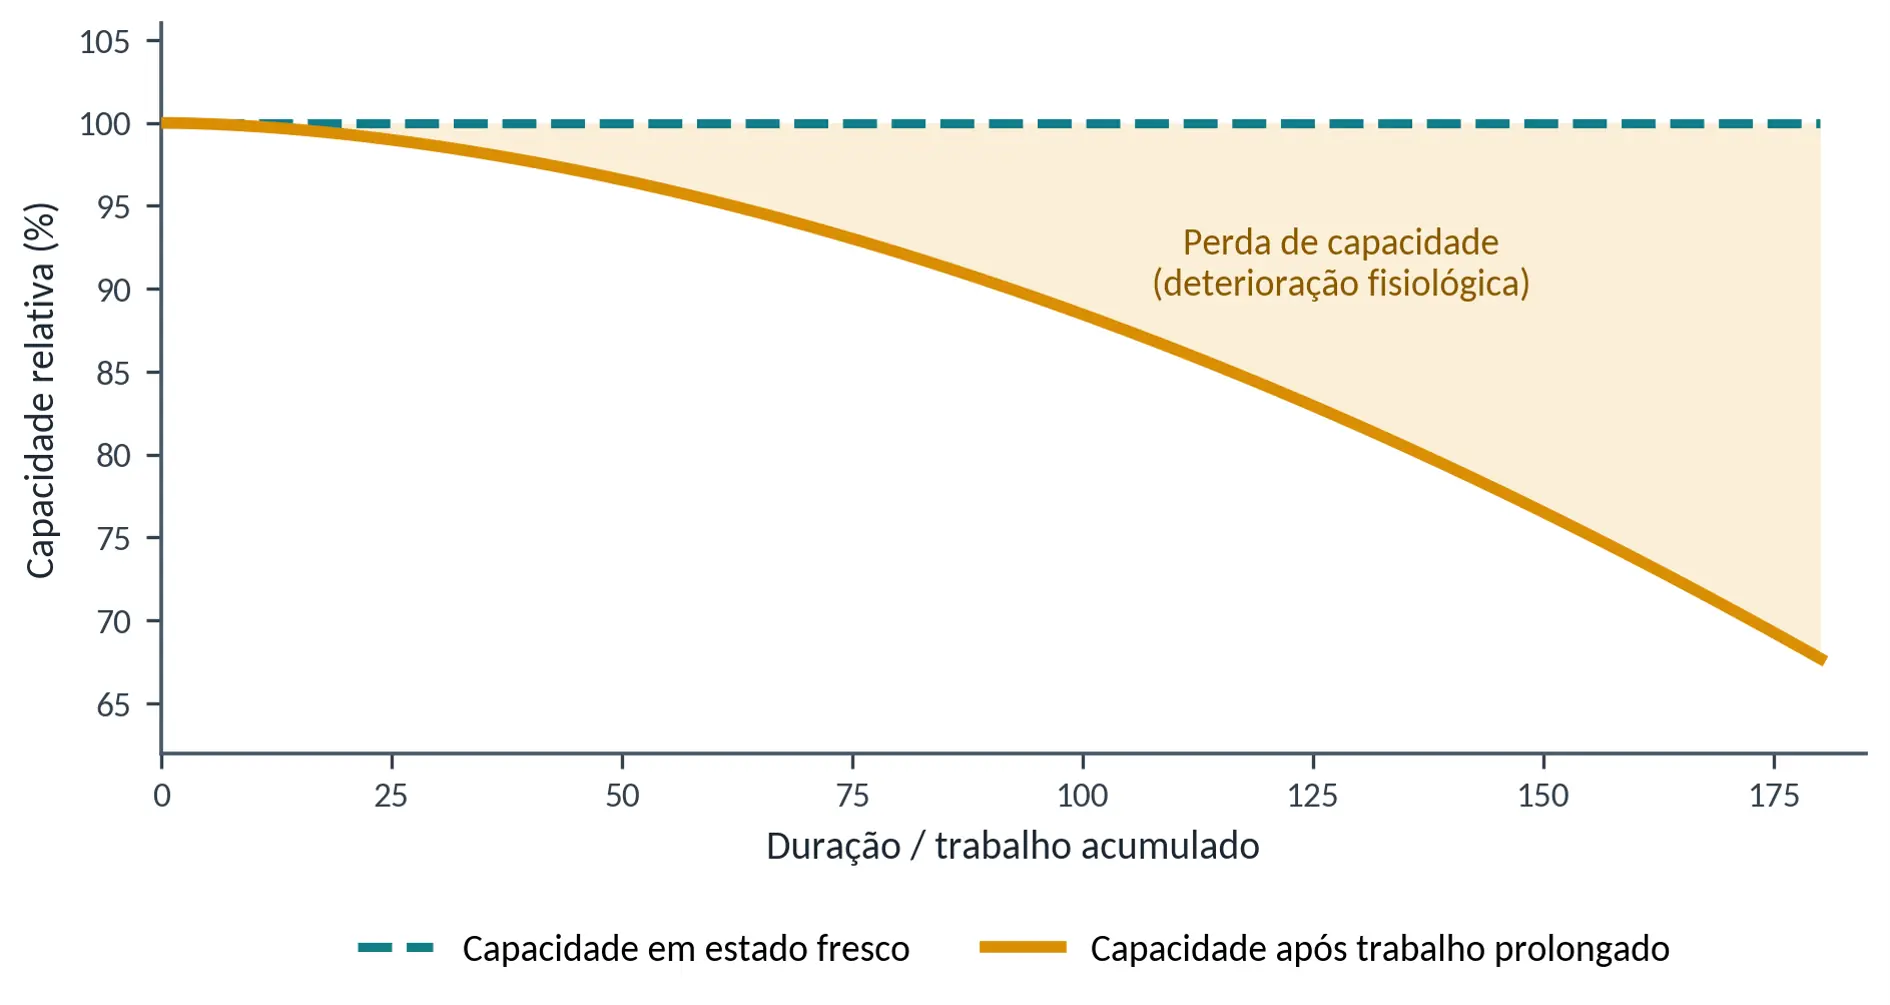
Figura 2 — Durabilidade como resistência à deterioração da capacidade fisiológica e mecânica ao longo do trabalho acumulado. Curvas esquemáticas.
PARTE II — LACTATO, PRÓTONS, VENTILAÇÃO E RECRUTAMENTO MUSCULAR
4. Lactato: de produto terminal a intermediário circulante
1. Introdução
O metabolismo do lactato constitui um dos capítulos mais revisitados da bioquímica metabólica e da fisiologia do exercício das últimas quatro décadas. Historicamente associado quase exclusivamente à fadiga muscular, à acidose e à hipóxia tecidual, o lactato é hoje reconhecido como um metabólito central da bioenergética celular, com papel simultâneo como substrato oxidativo mitocondrial, precursor gliconeogênico, agente tamponante de prótons e molécula sinalizadora capaz de modular a expressão gênica. Essa reconceitualização, consolidada principalmente a partir dos trabalhos de George A. Brooks e colaboradores desde a década de 1980, representa uma das mudanças de paradigma mais significativas da fisiologia integrativa contemporânea (BROOKS, 2018; BROOKS et al., 2021).
O objetivo deste material é apresentar, de forma aprofundada e fundamentada na literatura científica revisada por pares, os fundamentos históricos, bioquímicos, fisiológicos e clínicos que sustentam a compreensão atual do metabolismo do lactato. O texto está organizado em dezesseis eixos temáticos, do resgate histórico dos primeiros estudos sobre o ácido lático muscular até as fronteiras atuais de investigação sobre o lactato como regulador epigenético, destinando-se a estudantes de graduação e pós-graduação em Ciências do Esporte, Fisiologia do Exercício, Educação Física e áreas correlatas.
2. Contextualização Histórica do Estudo do Metabolismo do Lactato
O primeiro estudo quantitativo relacionando a produção de ácido lático à contração muscular foi conduzido por Fletcher e Hopkins (1907), em preparações neuromusculares de rã. Utilizando técnicas analíticas então inovadoras — incluindo a rápida inativação enzimática por congelamento para impedir a formação artefatual de lactato durante a análise —, os autores demonstraram que o ácido lático acumulado durante a contração muscular desaparecia progressivamente na presença de oxigênio, mas persistia em condições anaeróbias, estabelecendo pela primeira vez uma base quantitativa rigorosa para o estudo do metabolismo do lactato muscular (FLETCHER; HOPKINS, 1907).
Essa linha de investigação foi aprofundada por Archibald Vivian Hill, que desenvolveu métodos calorimétricos de altíssima sensibilidade para mensurar a produção de calor em músculo isolado, permitindo diferenciar o calor de contração do calor de recuperação — este último dependente de oxigênio. Em colaboração com Long e Lupton, Hill formulou o conceito de “débito de oxigênio” (oxygen debt), segundo o qual o consumo elevado de oxigênio na recuperação pós-exercício refletiria o reparo metabólico de um déficit energético contraído durante o esforço, sendo o lactato acumulado o principal indicador desse déficit (HILL; LONG; LUPTON, 1923-1924). Paralelamente, Otto Meyerhof quantificou, em preparações de músculo de rã isoladas, destituídas de perfusão sanguínea e mantidas em câmara anaeróbia, a relação estequiométrica entre a degradação do glicogênio muscular e a formação de ácido lático, estabelecendo os fundamentos quantitativos da via glicolítica. Hill e Meyerhof foram conjuntamente agraciados com o Prêmio Nobel de Fisiologia ou Medicina em 1922 por essas contribuições.
A extrapolação desses achados experimentais para a fisiologia humana in vivo revelou-se, entretanto, problemática. O preparo experimental de Meyerhof reproduzia uma condição fisiológica extrema — musculatura isolada, isquêmica e destituída de rede mitocondrial funcional em regime de perfusão —, não representativa da bioenergética muscular em condições de perfusão sanguínea e disponibilidade de oxigênio preservadas. Ainda assim, a associação causal entre formação de lactato e privação de oxigênio consolidou-se ao longo de todo o século XX como dogma central da fisiologia do exercício, disseminando-se também para a medicina pulmonar, a cardiologia intensiva e a nutrição clínica, campos nos quais a lactatemia passou a ser interpretada quase exclusivamente como marcador de sofrimento hipóxico-isquêmico (BROOKS, 2018; FERGUSON et al., 2018).
Um marco histórico paralelo e frequentemente subestimado é a descrição do ciclo de Cori por Carl F. Cori e Gerty T. Cori (1929), que demonstraram que o lactato produzido no músculo esquelético é captado pelo fígado e reconvertido a glicose por gliconeogênese, glicose esta que retorna à circulação e pode ser novamente captada pelo músculo. Esse achado — que rendeu aos Cori o Prêmio Nobel de Fisiologia ou Medicina em 1947 — estabeleceu, ainda na primeira metade do século XX, que o lactato não constitui um metabólito terminal, mas um substrato circulante ativamente reaproveitado pelo organismo (CORI; CORI, 1929). Não obstante, essa evidência conviveu por décadas, sem maior integração conceitual, com o paradigma da “acidose lática” hegemônico na fisiologia do exercício.
Um segundo marco de relevância histórica é o chamado “efeito Warburg”, descrito por Otto Warburg (orientador de Meyerhof), que observou que células neoplásicas convertem glicose predominantemente em lactato mesmo sob plena disponibilidade de oxigênio — fenômeno hoje denominado glicólise aeróbia (WARBURG, 1956). À luz da bioquímica da via glicolítica, essa observação deixa de ser paradoxal: a etapa terminal da glicólise, catalisada pela lactato desidrogenase (LDH), é uma reação regeneradora de NAD+ e consumidora — não geradora — de prótons, de modo que a produção de lactato em condições aeróbias é plenamente compatível com a estequiometria da via glicolítica, independentemente da disponibilidade tecidual de oxigênio (BROOKS, 2018; ROGATZKI et al., 2015).
A ruptura definitiva com o paradigma centenário ocorreu a partir do final da década de 1970 e ao longo da década de 1980, quando o emprego de traçadores isotópicos em humanos e animais em repouso e durante exercício permitiu demonstrar, de forma inequívoca, que o lactato é produzido e removido continuamente mesmo em condições de plena oxigenação tecidual, e que a magnitude dessa produção-remoção (turnover) excede, com frequência, aquela observada em situações de restrição de oxigênio (BROOKS, 2018). Esses achados fundamentaram a proposição da teoria da lançadeira de lactato, detalhada na Seção 5 deste documento.
3. Fundamentos da Bioenergética Glicolítica
A hidrólise do trifosfato de adenosina (ATP) a difosfato de adenosina (ADP) e fosfato inorgânico constitui a reação exergônica central que sustenta a contração muscular e a manutenção da homeostase celular, sendo continuamente ressintetizada por três sistemas energéticos integrados: o sistema dos fosfagênios (fosfocreatina), a via glicolítica citosólica e a fosforilação oxidativa mitocondrial. A via glicolítica converte uma molécula de glicose (ou uma unidade glicosil derivada do glicogênio) em duas moléculas de piruvato, por meio de dez reações enzimáticas sequenciais, com produção líquida de duas moléculas de ATP (via fosforilação em nível de substrato) e duas moléculas de NADH citosólico. As etapas cataliticamente limitantes dessa via — hexoquinase, fosfofrutoquinase-1 (PFK-1) e piruvato quinase — são reguladas por disponibilidade de substrato, razões ATP/ADP e AMP/ATP, e moduladores alostéricos como citrato e frutose-2,6-bifosfato (ROGATZKI et al., 2015).
O piruvato gerado ao final da glicólise possui dois destinos metabólicos principais. O primeiro é a descarboxilação oxidativa irreversível catalisada pelo complexo piruvato desidrogenase (PDH), localizado na matriz mitocondrial, que converte piruvato em acetil-coenzima A, posteriormente oxidada no ciclo de Krebs e acoplada à cadeia transportadora de elétrons e à fosforilação oxidativa. A atividade do complexo PDH é finamente regulada por fosforilação reversível (via piruvato desidrogenase quinases e fosfatases), pela concentração intramitocondrial de cálcio e pelas razões acetil-CoA/CoA e NADH/NAD+, constituindo o principal ponto de controle da oxidação de carboidratos. O segundo destino é a redução do piruvato a lactato, catalisada pela lactato desidrogenase (LDH) no citosol, com regeneração concomitante de NAD+ citosólico — cofator indispensável à continuidade da glicólise na etapa da gliceraldeído-3-fosfato desidrogenase (BROOKS et al., 2021).
A reação catalisada pela LDH opera próxima ao equilíbrio termodinâmico (constante de equilíbrio da ordem de 10⁴, favorecendo amplamente a formação de lactato) e apresenta atividade catalítica (Vmáx) várias ordens de grandeza superior à das enzimas regulatórias da via oxidativa. Em razão dessas propriedades cinéticas, Rogatzki e colaboradores (2015) argumentam que o lactato constitui invariavelmente o produto final da glicólise, independentemente da disponibilidade tecidual de oxigênio — a antiga dicotomia entre metabolismo “aeróbio” (culminando em piruvato) e “anaeróbio” (culminando em lactato) não encontra respaldo na cinética enzimática real do sistema. O que efetivamente determina o acúmulo tecidual e a concentração circulante de lactato é a relação dinâmica entre: (i) a taxa de fluxo glicolítico; (ii) a capacidade oxidativa mitocondrial (densidade e atividade enzimática); (iii) a tensão local de oxigênio; e (iv) a taxa líquida de transporte transmembrana de lactato, mediada pelos transportadores de monocarboxilato, detalhados na Seção 11 (ROGATZKI et al., 2015; BROOKS et al., 2021).
4. O Lactato como Agente de Tamponamento de Prótons
Um dos aspectos mais persistentemente mal-interpretados na literatura didática de fisiologia do exercício é a atribuição da acidose metabólica induzida pelo exercício intenso à formação de “ácido lático”, presumivelmente por meio da liberação de um próton (H+) durante sua dissociação. Essa concepção, denominada “acidose lática”, ignora que, ao pH intracelular fisiológico, o ácido lático (pKa aproximadamente 3,86) encontra-se quase completamente dissociado em lactato e H+ já no momento de sua formação, de modo que a reação relevante do ponto de vista da homeostase ácido-base não é a dissociação do ácido, mas a própria reação da lactato desidrogenase.
A reanálise bioquímica estequiométrica conduzida por Robergs, Ghiasvand e Parker (2004) demonstrou que a reação catalisada pela LDH — piruvato + NADH + H⁺ ⇌ lactato + NAD⁺ — consome, e não produz, um próton citosólico. Os autores demonstraram, por meio de balanço estequiométrico reação a reação de toda a via glicolítica e dos sistemas energéticos correlatos, que a principal fonte de prótons durante o exercício de alta intensidade é a hidrólise do ATP (ATP⁴⁻ + H₂O → ADP³⁻ + Pi²⁻ + H⁺) em taxa superior à da ressíntese de ATP, e não a formação de lactato. Nesse sentido, a produção de lactato — ao regenerar NAD⁺ e sustentar a continuidade da fosforilação em nível de substrato, além de consumir diretamente um próton em cada evento catalítico da LDH — atua como mecanismo que retarda, em vez de causar, a acidificação intracelular induzida pelo exercício (ROBERGS; GHIASVAND; PARKER, 2004).
Essa reinterpretação não é isenta de debate metodológico: parte da comunidade científica, particularmente aquela que adota a abordagem físico-química de Stewart para o equilíbrio ácido-base — na qual o pH é tratado como variável dependente de variáveis independentes como a diferença de íons fortes (SID), a pressão parcial de CO₂ e a concentração de ácidos fracos não voláteis, e não como resultado de balanços estequiométricos reação a reação —, argumenta que a atribuição causal da acidose a reações bioquímicas isoladas é uma simplificação excessiva do sistema fisiológico como um todo (STEWART, 1983; KOWALCHUK et al., 1988). Independentemente de qual arcabouço conceitual seja adotado, ambas as correntes convergem em rejeitar o modelo simplista segundo o qual a formação de lactato per se seria a causa direta da acidose muscular induzida pelo exercício. Para fins didáticos e aplicados, essa reconceitualização implica que a concentração de lactato sanguíneo ou muscular deve ser interpretada como um marcador correlacionado ao fluxo glicolítico e à atividade tamponante celular, e não como o agente causal da sensação de “queimação” muscular ou da fadiga contrátil, cujos determinantes primários envolvem antes o acúmulo de fosfato inorgânico, alterações no gradiente transmembrana de potássio e outras perturbações iônicas (ROBERGS; GHIASVAND; PARKER, 2004; FERGUSON et al., 2018).
5. A Lançadeira de Lactato e o Lactato como Combustível Mitocondrial
A teoria da lançadeira de lactato (lactate shuttle) postula que o lactato não constitui resíduo metabólico terminal, mas intermediário metabólico ativamente produzido em condições plenamente aeróbias e continuamente distribuído entre células, tecidos e órgãos produtores (“driver cells”) e consumidores (“recipient cells”). Nessa formulação, o lactato desempenha ao menos três funções fisiológicas simultâneas: substrato oxidativo majoritário para músculo esquelético, miocárdio e tecido encefálico; precursor gliconeogênico primário, sustentando a glicemia sistêmica por meio do ciclo de Cori; e molécula sinalizadora, capaz de modular a expressão gênica associada à biogênese mitocondrial e à adaptação ao estresse metabólico (BROOKS, 2018).
A teoria distingue múltiplos níveis hierárquicos de lançadeira: entre órgãos (lançadeira músculo-fígado do ciclo de Cori; lançadeira músculo-coração), entre células dentro de um mesmo tecido (lançadeira célula-célula, exemplificada pela transferência de lactato entre fibras musculares glicolíticas e oxidativas, ou entre astrócitos e neurônios no sistema nervoso central) e intracelularmente, entre o citosol e a mitocôndria (lançadeira intracelular de lactato) (BROOKS et al., 2021). Mais recentemente, essa produção de lactato foi documentada também no período pós-prandial, independentemente do exercício, evidenciando um papel metabólico ainda mais amplo do que se supunha (BROOKS et al., 2024).
A hipótese da lançadeira intracelular pressupõe a existência de um “complexo mitocondrial de oxidação de lactato” (mitochondrial lactate oxidation complex), no qual o transportador MCT1, a proteína chaperona CD147 e a isoforma mitocondrial da LDH estariam co-localizados na membrana mitocondrial interna, permitindo a oxidação direta do lactato pela mitocôndria sem conversão citosólica prévia a piruvato (BROOKS et al., 1999; HASHIMOTO; HUSSIEN; BROOKS, 2006). Essa hipótese permanece, todavia, objeto de controvérsia científica ativa: diversos grupos de pesquisa independentes não conseguiram replicar a presença de atividade significativa de LDH em frações mitocondriais purificadas nem demonstrar respiração mitocondrial sustentada por lactato em preparações permeabilizadas de músculo esquelético humano e animal, propondo em vez disso que o lactato deve ser reconvertido a piruvato por LDH citosólica (ou do espaço intermembranas) antes de ser captado pela mitocôndria por meio do transportador mitocondrial de piruvato (SAHLIN et al., 2002; YOSHIDA et al., 2007; JACOBS et al., 2013).
Essa divergência experimental permanece parcialmente não resolvida na literatura, possivelmente refletendo diferenças metodológicas na preparação e purificação de frações mitocondriais entre laboratórios (KANE, 2014). Independentemente de qual mecanismo molecular específico prevaleça — oxidação mitocondrial direta do lactato ou reconversão citosólica prévia a piruvato seguida de captação mitocondrial —, há convergência entre os grupos de pesquisa quanto ao papel do lactato como substrato oxidativo quantitativamente relevante para a respiração mitocondrial em músculo cardíaco e esquelético, encéfalo e outros tecidos altamente oxidativos, o que constitui o núcleo funcional da teoria da lançadeira, independentemente do detalhe mecanístico intracelular ainda em debate.
6. Lactato como Combustível Preferencial: Flexibilidade Metabólica, Oxidação Lipídica e Diabetes Tipo 2
O conceito de crossover metabólico, proposto por Brooks e Mercier (1994), descreve a transição progressiva da oxidação predominante de ácidos graxos para a oxidação predominante de carboidratos à medida que a intensidade relativa do exercício aumenta, sendo o lactato — e não a glicose diretamente — com frequência o substrato oxidativo preferencial em intensidades moderadas a altas. Esse fenômeno decorre da competição intracelular entre substratos pela via oxidativa mitocondrial (análoga, em sentido inverso, ao ciclo de Randle glicose-ácido graxo), modulada por disponibilidade relativa de substratos circulantes, atividade enzimática mitocondrial e demanda energética instantânea.
Esse arcabouço conceitual possui implicações diretas para a compreensão da flexibilidade metabólica — a capacidade do organismo de alternar eficientemente entre substratos energéticos conforme a disponibilidade e a demanda — e de sua alteração em estados de resistência à insulina e diabetes tipo 2. Indivíduos com flexibilidade metabólica preservada suprimem adequadamente a oxidação lipídica em resposta à disponibilidade de carboidratos e ao aumento da intensidade do exercício; indivíduos com resistência à insulina e diabetes tipo 2, por sua vez, frequentemente apresentam inflexibilidade metabólica, caracterizada por menor capacidade de suprimir a oxidação lipídica e por perfis de lactato alterados mesmo em repouso ou exercício submáximo, refletindo disfunção mitocondrial subjacente (SAN-MILLÁN; BROOKS, 2018).
7. Lactato Exógeno e Neuroproteção: Aplicação Terapêutica na Lesão Cerebral Traumática
Um dos desdobramentos clínicos mais relevantes da teoria da lançadeira de lactato é o uso terapêutico de infusão intravenosa de lactato de sódio hipertônico em pacientes com traumatismo cranioencefálico (TCE) moderado a grave. A justificativa fisiopatológica reside no fato de que, após lesão cerebral, o metabolismo oxidativo cerebral da glicose encontra-se frequentemente comprometido — por disfunção mitocondrial secundária, edema e alterações da microcirculação —, ao passo que a captação cerebral de lactato permanece preservada ou mesmo aumentada, funcionando como combustível alternativo em condições de crise energética neuronal, análogo à lançadeira astrócito-neurônio descrita em condições fisiológicas (GLENN et al., 2015).
Estudos empregando microdiálise cerebral e traçadores isotópicos demonstraram que a infusão contínua e cronometrada de lactato de sódio em adultos com TCE grave aumenta a captação cerebral de lactato sem elevação proporcional da captação de glicose, sugerindo utilização oxidativa direta do lactato exógeno pelo tecido cerebral lesionado (WOLAHAN et al., 2018). Ensaios clínicos subsequentes corroboraram efeitos favoráveis do lactato hipertônico sobre a perfusão cerebral e a pressão intracraniana, quando comparado a soluções osmóticas convencionais como o manitol, sugerindo que os benefícios observados combinam efeito osmótico e efeito metabólico-substrato específico (BERNINI et al., 2022).
8. Cinética do Lactato Induzida pelo Exercício Físico Agudo
A interpretação fisiológica correta da lactatemia exige a distinção conceitual entre concentração plasmática de lactato — um valor de balanço resultante entre taxas de produção e remoção em determinado instante — e taxa de turnover (aparecimento, Ra, e desaparecimento, Rd) de lactato, esta última mensurável por técnicas de diluição isotópica com traçadores marcados. A taxa de depuração metabólica (metabolic clearance rate, MCR) complementa essa caracterização, expressando o volume de plasma depurado de lactato por unidade de tempo. Concentrações elevadas de lactato circulante durante o exercício não implicam necessariamente hipóxia tecidual, mas antes refletem aumento da glicogenólise e da glicólise proporcional à intensidade do esforço, associado a aumento simultâneo — e não paradoxal — da oxidação mitocondrial de lactato pelos tecidos consumidores (FERGUSON et al., 2018; ROGATZKI et al., 2015).
9. Diferenças Metabólicas entre Atletas de Elite e Indivíduos com Resistência à Insulina
A comparação do perfil metabólico de atletas de endurance de elite com o de indivíduos metabolicamente doentes revela um paradoxo aparente: ambos os grupos podem apresentar concentrações absolutas de lactato semelhantes em determinadas intensidades relativas de esforço, por razões metabólicas diametralmente opostas. Em atletas treinados, a produção elevada de lactato coexiste com alta capacidade oxidativa mitocondrial e elevada taxa de depuração (clearance), refletindo um sistema metabólico robusto e altamente responsivo — achado também documentado por meio de perfis metabolômicos obtidos em ciclistas profissionais de elite, evidenciando maior capacidade de utilização oxidativa de lactato e de ácidos graxos concomitantemente (SAN-MILLÁN et al., 2020). Em indivíduos com resistência à insulina, por contraste, o mesmo nível de lactato pode refletir capacidade oxidativa mitocondrial reduzida e menor eficiência de depuração (SAN-MILLÁN; BROOKS, 2018). Essa distinção sustenta o uso do lactato não como valor absoluto isolado, mas como biomarcador dinâmico de flexibilidade metabólica, quando interpretado em conjunto com dados de oxidação de substrato e capacidade oxidativa mitocondrial.
10. Adaptações ao Treinamento Físico e Lançadeira de Lactato entre Fibras Musculares
O treinamento físico crônico, particularmente o treinamento de resistência aeróbia, promove aumento da densidade mitocondrial (via biogênese mitocondrial mediada por PGC-1α), da densidade capilar e da expressão de transportadores de monocarboxilato, favorecendo a lançadeira de lactato entre fibras musculares de tipo II (predominantemente glicolíticas, produtoras líquidas de lactato) e fibras de tipo I (predominantemente oxidativas, consumidoras líquidas de lactato), bem como entre músculo ativo e músculo em repouso, coração e encéfalo (DUBOUCHAUD et al., 2000). Esse processo é central para a melhora da capacidade oxidativa global e para o deslocamento do limiar de lactato para intensidades relativas mais elevadas — um dos marcadores fisiológicos mais robustos de adaptação ao treinamento aeróbio —, achado corroborado por revisão sistemática recente sobre os efeitos do exercício na expressão muscular de MCT1 e MCT4 em humanos e roedores (BENÍTEZ-MUÑOZ et al., 2024).
11. Transportadores de Monocarboxilato (MCT): Estrutura, Distribuição e Regulação
A família de transportadores de monocarboxilato (MCT1 a MCT4), codificada pelos genes da família SLC16, compreende proteínas transmembrana responsáveis pelo transporte facilitado, acoplado a prótons, de lactato, piruvato e corpos cetônicos entre compartimentos celulares e entre células (HALESTRAP, 2013). O MCT4 apresenta baixa afinidade e alta capacidade de transporte (Km relativamente elevado para lactato), predominando em fibras musculares glicolíticas de contração rápida, onde favorece o efluxo (exportação) de lactato produzido em alta taxa; o MCT1, com maior afinidade (Km mais baixo), predomina em fibras oxidativas de contração lenta, cardiomiócitos e determinadas populações neuronais e gliais, favorecendo o influxo e a subsequente utilização oxidativa do lactato (FELMLEE et al., 2020). A atividade funcional de MCT1 depende da associação com a glicoproteína transmembrana chaperona CD147 (basigina), essencial para seu correto endereçamento à membrana plasmática.
Estudos de inibição farmacológica específica de MCT1/MCT4 em modelo murino confirmam que esses transportadores são funcionalmente necessários para a manutenção da capacidade de exercício, e não meramente correlacionados a ela: a inibição farmacológica de MCT1 e MCT4 reduz significativamente a duração do exercício em esteira e eleva a concentração sanguínea de lactato imediatamente após o esforço, demonstrando que o bloqueio do transporte de lactato compromete a depuração e a utilização oxidativa do substrato (KITAOKA; TAKAHASHI; HATTA, 2022). O reconhecimento crescente desses transportadores como determinantes da direção e magnitude da lançadeira de lactato é considerado um dos avanços mais significativos das últimas décadas na compreensão molecular do fenômeno (BROOKS, 2018; BROOKS et al., 2021).
12. Cinética Sistêmica do Lactato: Contribuições dos Estudos com Traçadores Isotópicos
O emprego de traçadores isotópicos (lactato marcado com carbono-13 ou trítio) permitiu, a partir da década de 1980, quantificar diretamente as taxas de aparecimento (Ra) e desaparecimento (Rd) de lactato in vivo, tanto em repouso quanto durante exercício, revelando que o lactato é produzido e removido continuamente mesmo em repouso e sob plena oxigenação tecidual — achado incompatível com o paradigma clássico da acidose lática por hipóxia (BROOKS, 2018; BROOKS et al., 2021). Esses estudos evidenciaram, ainda, que atletas de elite apresentam maior taxa absoluta de produção e de oxidação de lactato do que indivíduos sedentários em intensidades equivalentes de esforço, refletindo maior capacidade mitocondrial de utilização do substrato, e não meramente menor produção (BROOKS, 2018; SAN-MILLÁN et al., 2020).
5. Lactate shuttle, MCT1/MCT4 e oxidação do carbono do lactato
A compreensão contemporânea das adaptações ao treinamento de endurance exige abandonar modelos excessivamente lineares nos quais uma única variável — consumo máximo de oxigênio, concentração sanguínea de lactato, frequência cardíaca ou determinada “zona” de treinamento — seria capaz de explicar isoladamente a resposta fisiológica ao exercício. O desempenho aeróbico emerge da interação entre transporte convectivo de oxigênio, difusão microvascular, utilização periférica de O₂, capacidade e qualidade mitocondrial, disponibilidade e seleção de substratos, transporte intercelular de metabólitos e controle ventilatório. Nesse sistema integrado, lactato, mitocôndrias, capilares e limiares fisiológicos não constituem fenômenos independentes, mas diferentes manifestações de uma rede metabólica continuamente ajustada à demanda energética imposta pela contração muscular. As adaptações ao treinamento devem, portanto, ser interpretadas a partir da magnitude, duração e frequência das perturbações da homeostase, e não simplesmente pela denominação da zona em que o exercício foi realizado (DRAKE; WILSON; YAN, 2016; REISMAN; HAWLEY; HOFFMAN, 2024; MØLMEN; ALMQUIST; SKATTEBO, 2025).
Essa perspectiva é particularmente importante para reinterpretar o lactato. Durante grande parte do século XX, sua elevação durante o exercício foi associada de maneira quase automática à insuficiência de oxigênio, à acidose e à fadiga. A fisiologia moderna demonstrou que essa representação é incompleta. O lactato é continuamente produzido mesmo em condições plenamente aeróbicas e participa de uma rede de transferência de carbono e equivalentes redutores entre compartimentos celulares, fibras musculares e órgãos. A lactatemia representa, portanto, o resultado líquido da relação entre aparecimento e desaparecimento de lactato no sangue, e não uma medida direta da sua produção muscular. Em determinado instante, uma fibra pode produzir lactato enquanto outra o utiliza oxidativamente; simultaneamente, coração, fígado e outros tecidos participam de sua remoção e utilização. Essa concepção constitui a base do lactate shuttle e modifica profundamente a interpretação dos limiares de lactato (BROOKS et al., 1999; JUEL; HALESTRAP, 1999; KITAOKA; HOSHINO; HATTA, 2012; BARTOLONI et al., 2024).
A passagem do lactato através das membranas celulares é mediada predominantemente pelos transportadores de monocarboxilatos, especialmente MCT1 e MCT4 no músculo esquelético. Esses transportadores realizam cotransporte de lactato e H⁺, em proporção aproximadamente 1:1, e operam de maneira passiva e bidirecional de acordo com os gradientes eletroquímicos existentes. O MCT1 apresenta maior afinidade pelo lactato e está particularmente associado às fibras oxidativas e à captação do metabólito, enquanto o MCT4 apresenta menor afinidade e elevada capacidade de transporte, sendo abundante em fibras mais glicolíticas e funcionalmente associado à exportação de lactato em condições de elevado fluxo glicolítico. Essa organização não cria compartimentos absolutamente produtores ou consumidores; ao contrário, favorece o intercâmbio contínuo de lactato entre fibras e tecidos, conforme a produção, a capacidade oxidativa e os gradientes metabólicos locais (JUEL; HALESTRAP, 1999; KITAOKA; HOSHINO; HATTA, 2012).
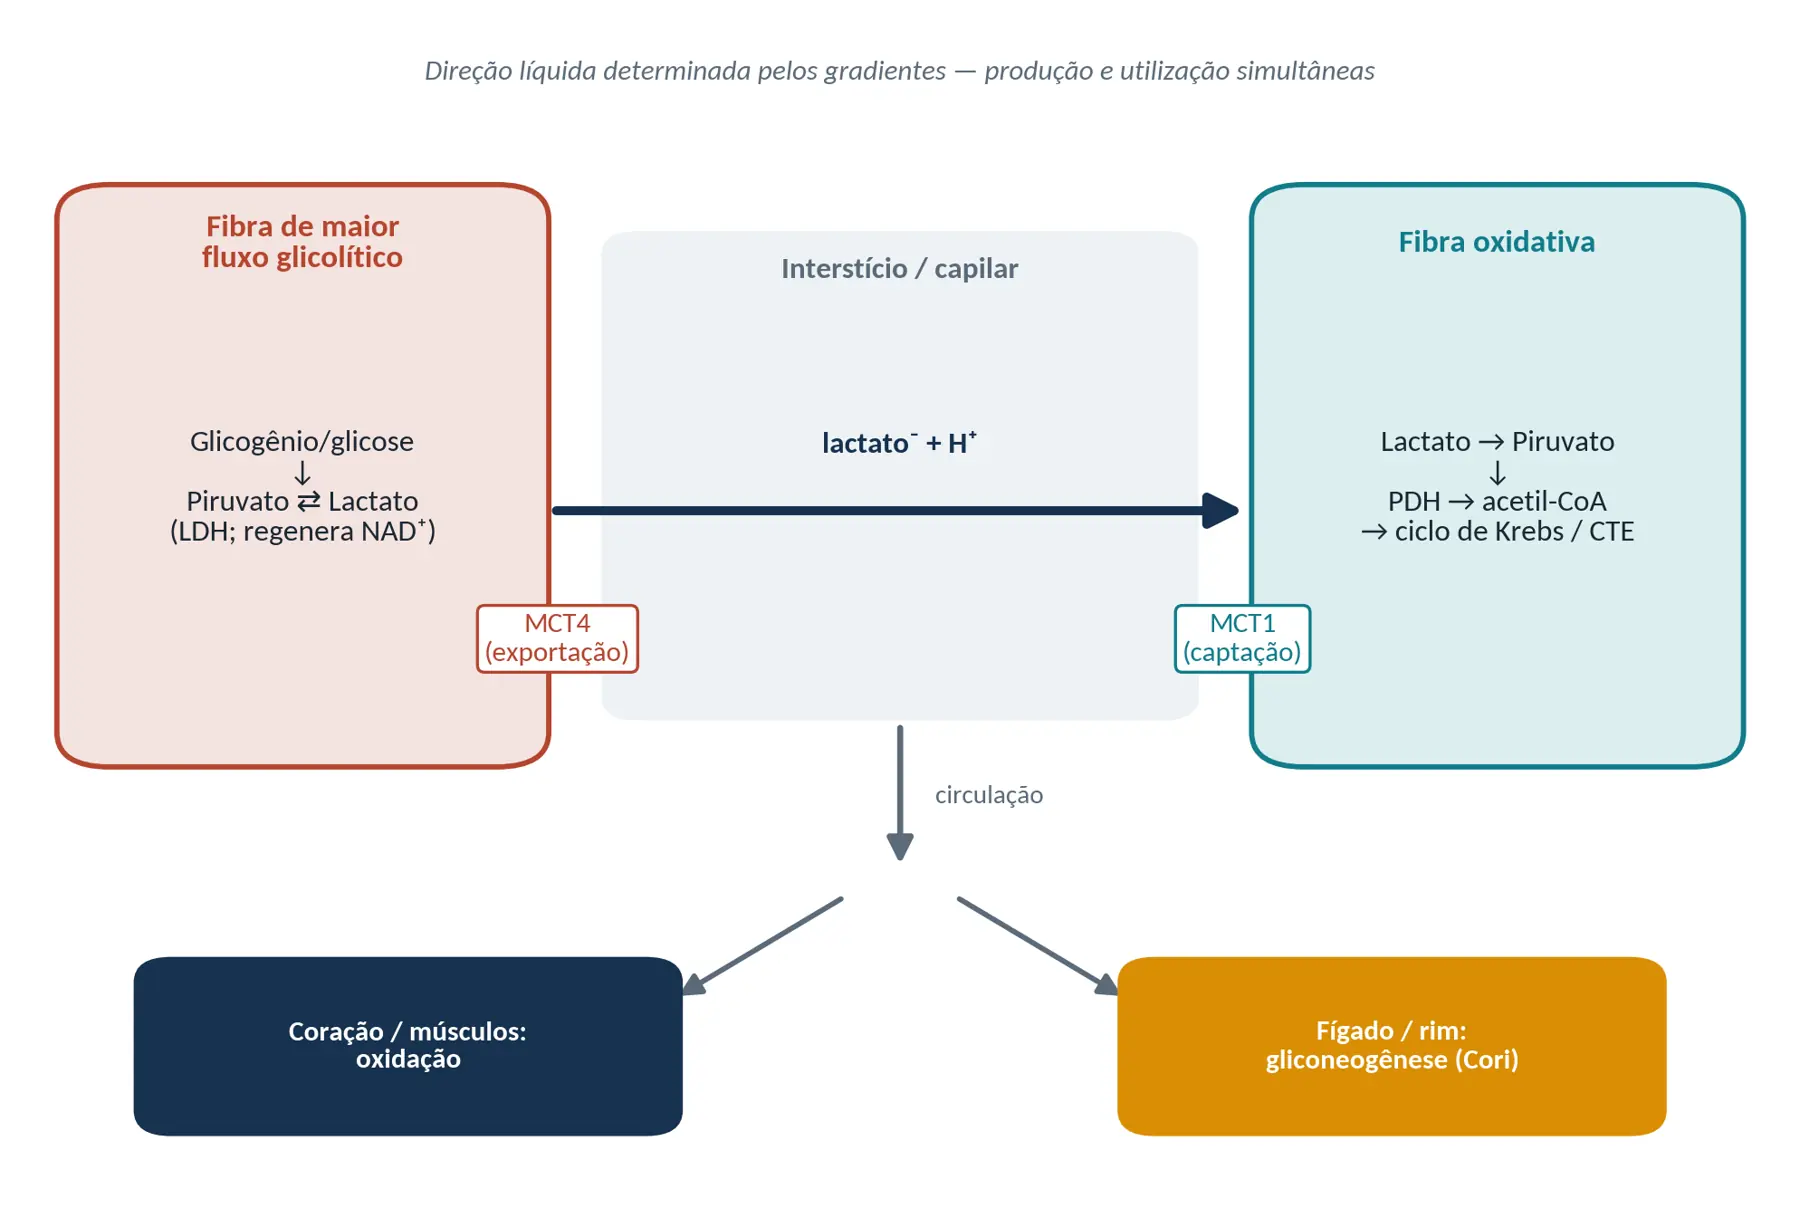
Figura complementar 4 — Lançadeira de lactato célula–célula e entre órgãos: exportação predominante via MCT4, captação via MCT1, oxidação mitocondrial após conversão a piruvato e gliconeogênese hepática/renal. Fonte: elaborada com base em Brooks (2009) e Brooks (2018).
Essa dinâmica ajuda a explicar por que o aumento da concentração sanguínea de lactato durante um teste incremental não deve ser interpretado simplesmente como o instante em que “começa o metabolismo anaeróbio”. A glicólise e a formação de lactato ocorrem desde intensidades muito baixas. O primeiro aumento sustentado da lactatemia significa que a relação entre aparecimento e desaparecimento começa a se modificar, enquanto a elevação curvilínea subsequente reflete um desequilíbrio progressivamente maior entre esses processos. A determinação dos limiares depende, consequentemente, do protocolo e do algoritmo adotado. Podem ser utilizados aumentos em relação ao basal, concentrações fixas, Dmax, Dmax modificado e diferentes definições de limiar individual; tais métodos não são matematicamente equivalentes e não devem ser tratados como se identificassem necessariamente a mesma intensidade fisiológica (BILLAT, 1996; FAUDE; KINDERMANN; MEYER, 2009). O próprio corpus analisado contém protocolos nos quais LT1 foi identificado como a primeira elevação da concentração plasmática de lactato acima do basal e LT2 pelo método Dmax modificado.
O treinamento modifica esse sistema em vários níveis. A expressão e a atividade dos transportadores de lactato podem ser moduladas pelo exercício, particularmente MCT1, aumentando a capacidade de transferência do lactato para tecidos e fibras oxidativas. Esse fenômeno deve ser interpretado conjuntamente com o aumento da capacidade mitocondrial: quanto maior a capacidade oxidativa da fibra, maior a possibilidade de utilizar piruvato e lactato como fontes de carbono para a oxidação. Assim, a redução da lactatemia observada em determinada carga após um período de treinamento não significa necessariamente que o músculo passou a “produzir menos lactato”; pode representar combinação de menor fluxo glicolítico relativo, maior oxidação intramuscular, maior transporte e maior remoção sistêmica. Essa distinção é essencial para interpretar adequadamente curvas de lactato e adaptações decorrentes do treinamento (KITAOKA; HOSHINO; HATTA, 2012; TAKEDA et al., 2022; ARCOVERDE-MELLO et al., 2025).
A própria relação entre lactato e mitocôndria tornou-se mais complexa. Evidências experimentais identificaram MCT1 associado às mitocôndrias de músculo cardíaco e esquelético, contribuindo para a formulação do modelo de intracellular lactate shuttle e do chamado mitochondrial lactate oxidation complex (BROOKS et al., 1999). Nesse modelo, proteínas relacionadas ao transporte e metabolismo do lactato encontram-se organizadas em proximidade funcional com componentes mitocondriais, permitindo acoplamento eficiente entre lactato, piruvato e oxidação. Bartoloni et al. (2024) representam MCT1, lactato desidrogenase mitocondrial e citocromo-c oxidase (COX) associados a esse complexo. É crucial, contudo, interpretar corretamente essa representação: a COX não é um transportador de lactato. Sua presença representa associação funcional/estrutural proposta com o aparato respiratório; a COX permanece o complexo IV da cadeia transportadora de elétrons, responsável pela transferência de elétrons do citocromo c ao O₂ e pela redução final do oxigênio molecular. A translocação do monocarboxilato não é realizada pela COX.
A existência e a organização exata de um sistema de oxidação mitocondrial direta do lactato continuam sendo objeto de discussão mecanística, mas o ponto fisiológico mais amplo é menos controverso: o lactato constitui combustível oxidativo relevante e seu carbono pode alcançar o ciclo dos ácidos tricarboxílicos. Evidências recentes ampliam essa perspectiva ao indicar que o transporte mediado por MCT1 participa também de mecanismos associados à biogênese mitocondrial e ao aumento do fluxo pelo ciclo de Krebs (ZHANG et al., 2024). Desse modo, lactato deixa de ser interpretado apenas como consequência metabólica do exercício e passa a integrar o próprio sistema de adaptação à contração muscular.
Essa transição conceitual torna-se ainda mais evidente quando se considera a função sinalizadora do lactato. Além de combustível e precursor gluconeogênico, ele atua como molécula de sinalização, inclusive por mecanismos associados ao receptor HCAR1/GPR81, alterações redox e regulação da expressão gênica. A identificação da lactilação de proteínas, particularmente histonas, adicionou uma dimensão epigenética ao fenômeno. O lactato produzido em resposta ao aumento do fluxo glicolítico pode, portanto, conectar o estado metabólico celular à regulação da transcrição. Embora a relevância quantitativa desses mecanismos no músculo humano submetido a diferentes regimes de treinamento ainda necessite maior esclarecimento, eles tornam insustentável a concepção do lactato como simples resíduo metabólico (BARTOLONI et al., 2024).
A mitocôndria, por sua vez, não deve ser compreendida apenas em termos de “quantidade”. O treinamento promove remodelação do retículo mitocondrial envolvendo biogênese, síntese proteica, dinâmica de fusão e fissão e remoção seletiva de componentes disfuncionais por mitofagia. A qualidade mitocondrial resulta do equilíbrio entre produção, remodelamento e degradação, e não da simples multiplicação de organelas isoladas. Drake, Wilson e Yan (2016) ressaltam precisamente essa integração entre biogênese, dinâmica e mitofagia. O exercício repetido pode aumentar tanto a capacidade de resposta autofágica quanto a atividade basal de controle de qualidade, contribuindo para manutenção de uma população mitocondrial funcionalmente mais eficiente.
A contração muscular inicia essa adaptação porque perturba a homeostase energética e iônica. Alterações nas razões AMP/ATP e ADP/ATP, Ca²⁺ citosólico, espécies reativas de oxigênio, estado redox NAD⁺/NADH, glicogênio e outros sinais ativam redes de quinases e fatores transcricionais. AMPK, CaMK, p38 MAPK e outras vias convergem sobre reguladores como PGC-1α, coordenando a expressão de genes nucleares e mitocondriais envolvidos na expansão e remodelação do sistema oxidativo. Entretanto, o conhecimento atual mostra que essa sinalização é muito mais interconectada do que o modelo simplificado “AMPK → PGC-1α → mitocôndria”. Estudos fosfoproteômicos revelam extensa comunicação entre núcleo e mitocôndria e numerosas proteínas reguladas pelo exercício (REISMAN; HAWLEY; HOFFMAN, 2024).
Essa constatação é relevante para a discussão contemporânea sobre a chamada Zona 2. Em linguagem popular, Zona 2 frequentemente passou a designar uma intensidade relativamente baixa, próxima ao máximo de oxidação de gordura ou imediatamente abaixo do primeiro limiar de lactato. Entretanto, “Zona 2” não possui significado universal: depende do sistema de zonas utilizado. Em modelos de três zonas, a primeira zona compreende intensidades abaixo do primeiro limiar, a segunda encontra-se entre os dois limiares e a terceira acima do segundo. Em modelos de cinco ou mais zonas, a expressão Zona 2 frequentemente representa uma subdivisão do domínio moderado, abaixo de LT1/VT1. Confundir esses sistemas gera aparentes contradições na literatura e na prática.
A revisão de Storoschuk et al. (2025) é especialmente útil porque analisa criticamente a versão popularizada da Zona 2, definida predominantemente como exercício no domínio moderado, abaixo de LT1, frequentemente associado a lactatemia próxima de 1,7–2,0 mmol·L⁻¹, FATmax e capacidade de conversar confortavelmente. A intensidade absoluta correspondente a esse domínio varia enormemente entre indivíduos: o limite superior pode representar frações muito diferentes do VO₂máx conforme treinamento e condição fisiológica. Isso reforça a inadequação de prescrever Zona 2 exclusivamente por porcentagens universais da frequência cardíaca máxima ou do VO₂máx.
A elevada importância do treinamento de baixa intensidade no endurance de alto rendimento não implica, entretanto, que essa intensidade seja biologicamente superior às demais para todas as adaptações. A literatura reunida mostra que exercícios abaixo do primeiro limiar podem favorecer elevada duração, baixo custo autonômico e metabólico relativo, manutenção de grande volume semanal, utilização lipídica e exposição contrátil repetida. Entretanto, a evidência não sustenta que essa seja uma intensidade singularmente ótima para maximizar a biogênese mitocondrial. Storoschuk et al. (2025) encontraram respostas inconsistentes de AMPK e PGC-1α ao exercício especificamente caracterizado como Zona 2 e ressaltaram que respostas dependem, entre outros fatores, da duração e do estado de treinamento.
Esse resultado não reduz a importância do treinamento extensivo; ele redefine sua função. O estímulo adaptativo resulta da integração intensidade × duração × frequência × estado de treinamento. Uma sessão de baixa intensidade produz perturbação homeostática relativamente pequena por unidade de tempo, mas pode ser sustentada durante muito mais tempo e repetida frequentemente. Exercícios intensos geram perturbações maiores, porém apresentam custo fisiológico superior e menor volume tolerável. A organização eficiente do treinamento decorre justamente da combinação dessas propriedades, e não da eleição de uma intensidade isolada.
Tabela 3 — MCT1 e MCT4 no músculo esquelético
| Característica | MCT1 | MCT4 |
| Associação fenotípica | Fibras/tecidos mais oxidativos | Fibras com maior fluxo glicolítico |
| Afinidade relativa pelo lactato | Maior | Menor |
| Função frequente in vivo | Captação e utilização conforme gradientes | Exportação em alto fluxo glicolítico |
| Direcionalidade | Bidirecional; depende dos gradientes | Bidirecional; depende dos gradientes |
| Transporte | Cotransporte lactato⁻/H⁺ | Cotransporte lactato⁻/H⁺ |
6. Acidose metabólica: por que lactato e H⁺ não são sinônimos
A fisiologia do exercício de intensidade crescente não pode ser adequadamente explicada por uma sequência linear na qual recrutamento de fibras rápidas conduz à “produção de ácido lático”, que por sua vez provoca acidose, hiperventilação e fadiga. Esse modelo reúne fenômenos que estão efetivamente relacionados, mas atribui causalidade direta a processos que possuem mecanismos, compartimentos e cinéticas distintos. Uma interpretação contemporânea exige considerar simultaneamente a demanda de ressíntese de ATP, o recrutamento de unidades motoras, a produção e utilização de lactato, a homeostase de H⁺, a dinâmica de fosfocreatina (PCr) e fosfato inorgânico (Pi), os transportadores sarcolemais, a regulação ventilatória por mecanismos neurais e humorais e, em escala temporal mais longa, as vias moleculares responsáveis pelo remodelamento mitocondrial. Nesse contexto, lactato, H⁺, ventilação e fadiga deixam de constituir etapas obrigatórias de uma única cadeia e passam a representar componentes de uma rede homeostática integrada (ROBERGS; GHIASVAND; PARKER, 2004; JUEL, 2008; POOLE; JONES, 2012).
Lactato, prótons e o transporte intercelular de energia
A formação de lactato deve ser compreendida inicialmente como uma reação de equilíbrio redox. A lactato desidrogenase catalisa a reação piruvato + NADH + H⁺ ⇌ lactato⁻ + NAD⁺, permitindo regenerar NAD⁺ citosólico e, assim, sustentar o fluxo pela gliceraldeído-3-fosfato desidrogenase quando a glicólise está acelerada. A reação no sentido da formação de lactato consome H⁺, razão pela qual lactato não deve ser considerado a origem bioquímica direta da acidose muscular. Durante exercício intenso, lactato e H⁺ frequentemente aumentam paralelamente porque ambos estão associados à extraordinária aceleração do metabolismo energético, e não porque a formação do primeiro necessariamente produza o segundo. A acidificação resulta do balanço líquido entre processos produtores e consumidores de prótons, particularmente em condições nas quais a elevada taxa de turnover de ATP não é acompanhada proporcionalmente por processos capazes de manter a homeostase protonada (ROBERGS; GHIASVAND; PARKER, 2004; GLADDEN, 2004; BROOKS, 2018).
A exportação sarcolemal constitui um dos principais mecanismos pelos quais o músculo regula simultaneamente lactato e H⁺. Os transportadores de monocarboxilatos, particularmente MCT1 e MCT4, realizam cotransporte eletroneutro de lactato⁻ e H⁺, sendo a direção líquida determinada pelos gradientes transmembrana dos substratos e não por uma função absolutamente unidirecional de cada isoforma. MCT4 apresenta associação particularmente forte com fenótipos glicolíticos e elevados fluxos de exportação, enquanto MCT1 é abundantemente expresso em tecidos oxidativos e favorece, pelas condições cinéticas e metabólicas desses tecidos, elevada capacidade de utilização do lactato. O treinamento pode modificar esses sistemas de transporte, constituindo essa plasticidade parte da adaptação da regulação muscular do pH (JUEL, 1996; JUEL, 2008; THOMAS et al., 2012).
Consequentemente, lactato e H⁺ produzidos ou acumulados em uma fibra de maior fluxo glicolítico podem ser cotransportados para o interstício, mas isso não significa que permaneçam unidos como uma entidade molecular estável. Uma vez no compartimento extracelular, H⁺ participa rapidamente de equilíbrios envolvendo bicarbonato, proteínas e outros tampões, enquanto lactato pode ser captado por fibras musculares adjacentes, coração e outros tecidos. Uma fibra oxidativa rica em MCT1 pode, entretanto, cotransportar lactato⁻ e H⁺ para seu interior se os gradientes favorecerem esse sentido. O carbono do lactato pode então alimentar o metabolismo oxidativo, enquanto o H⁺ passa a integrar a complexa homeostase protonada celular. Assim, é biologicamente plausível que lactato e H⁺ deixem conjuntamente uma fibra e ingressem conjuntamente em outra, mas seria incorreto imaginar que o mesmo próton permanece obrigatoriamente associado à mesma molécula de lactato durante todo o cell-to-cell lactate shuttle (BROOKS, 2009; JUEL, 2008).
Há também evidências para a associação de MCT1, LDH e outras proteínas com a maquinaria mitocondrial, originando o conceito de mitochondrial lactate oxidation complex e do intracellular lactate shuttle. Segundo esse modelo, o lactato não precisa obrigatoriamente ser convertido em piruvato no citosol antes que seu carbono seja direcionado ao metabolismo mitocondrial. Entretanto, a localização precisa da LDH, do MCT1 e da oxidação do lactato em relação às membranas mitocondriais permanece objeto de discussão experimental. Portanto, a afirmação segura é que o lactato constitui importante combustível oxidativo e que existem evidências para uma organização subcelular facilitadora de sua utilização próxima ou associada à mitocôndria; é mais controverso afirmar que lactato e H⁺ simplesmente “entram juntos na matriz e são queimados” (HASHIMOTO; HUSSIEN; BROOKS, 2006; BROOKS, 2018).
Essa distinção é particularmente relevante porque a mitocôndria utiliza gradientes de prótons de maneira altamente compartimentalizada. A cadeia transportadora de elétrons bombeia H⁺ da matriz para o espaço intermembrana, estabelecendo a força próton-motriz que posteriormente impulsiona o retorno de H⁺ através da ATP sintase. Portanto, afirmar genericamente que “a mitocôndria consome prótons” oculta uma topologia bioenergética essencial. A elevada capacidade oxidativa contribui para a homeostase ácido-base global, mas não porque a mitocôndria funcione simplesmente como um depósito intracelular de H⁺; metabolismo redox, transporte de equivalentes redutores, consumo de O₂, produção de CO₂ e fosforilação de ADP estão acoplados por mecanismos espacialmente organizados (POOLE; JONES, 2012; BROOKS, 2018).
Tamponamento intracelular: carnosina, fosfato e fosfocreatina
A capacidade muscular de resistir à alteração do pH é determinada por um conjunto de tampões físico-químicos e processos metabólicos. Proteínas e resíduos de histidina, carnosina, fosfatos e outros constituintes participam da capacidade tampão não bicarbonato do músculo, enquanto MCTs, Na⁺/H⁺ exchange e sistemas dependentes de bicarbonato contribuem para a regulação dinâmica do pH. Essa distinção é fundamental: tamponar H⁺ significa reduzir transitoriamente a alteração de H⁺ livre; transportar H⁺ significa redistribuí-lo entre compartimentos; metabolizar processos associados ao H⁺ constitui ainda uma terceira dimensão. Treinamento intervalado intenso pode aumentar a capacidade tampão muscular, e estudos comparando treinamento acima e abaixo do limiar indicam que a intensidade da perturbação constitui importante determinante dessa adaptação (WESTON et al., 1997; EDGE; BISHOP; GOODMAN, 2006; JUEL, 2008).
A carnosina constitui um componente particularmente interessante desse sistema porque o anel imidazol da histidina apresenta propriedades químicas apropriadas para aceitar H⁺ dentro da faixa fisiológica de pH muscular. O treinamento de alta intensidade pode modificar a capacidade tampão e, em determinadas condições experimentais, o conteúdo muscular de carnosina, mas esse efeito é menos consistente e muito menor do que aquele produzido pela suplementação de β-alanina. A β-alanina constitui o precursor limitante para a síntese muscular de carnosina; por isso, sua suplementação aumenta de maneira muito mais previsível o pool intramuscular do dipeptídeo. Consequentemente, o aumento da capacidade tampão após treinamento não deve ser atribuído exclusivamente ao aumento de carnosina, pois proteínas, fosfatos, transporte transmembrana e outros mecanismos também se adaptam (HARRIS et al., 2006; DERAVE et al., 2007; JUEL, 2008). A literatura sobre estratégias nutricionais para tamponamento reconhece carnosina, NHE, transportadores de bicarbonato e MCTs como componentes complementares da defesa do pH muscular.
O fosfato inorgânico também participa diretamente do tamponamento pela reação HPO₄²⁻ + H⁺ ⇌ H₂PO₄⁻. Entretanto, não há fundamento para conceber a adaptação ao treinamento como formação deliberada de uma “reserva adicional de Pi” destinada a neutralizar prótons. O Pi muscular é parte de um pool metabólico extremamente dinâmico, cuja concentração aumenta substancialmente durante exercício intenso em associação à hidrólise de ATP e, sobretudo, à utilização do sistema PCr–creatina quinase. Não é necessário supor redução da excreção renal de fosfato ou armazenamento sistêmico adicional para explicar sua participação no tamponamento muscular durante exercício (SAHLIN, 1992; ROBERGS; GHIASVAND; PARKER, 2004).
A reação da creatina quinase acrescenta outra dimensão à relação entre bioenergética e equilíbrio ácido-base: PCr + ADP + H⁺ ⇌ ATP + creatina. Quando a reação ocorre no sentido da ressíntese rápida de ATP, um H⁺ é consumido. A PCr funciona, portanto, simultaneamente como tampão energético — estabilizando a razão ATP/ADP — e como componente indireto da defesa contra alterações do pH. À medida que PCr diminui durante exercício intenso, Pi aumenta, enquanto ATP permanece comparativamente preservado. A utilização de PCr e o aumento de Pi não são, portanto, processos independentes da regulação ácido-base; fazem parte da mesma reorganização bioenergética que ocorre quando a taxa de hidrólise de ATP aumenta abruptamente (SAHLIN, 1992; ROBERGS; GHIASVAND; PARKER, 2004).
Não seria correto, entretanto, afirmar que durante exercício submáximo prolongado a PCr é degradada exclusivamente para tamponar H⁺. O fluxo pela creatina quinase é determinado pelas concentrações e atividades químicas de ATP, ADP, PCr, creatina, H⁺ e Mg²⁺. Quando ATP é hidrolisado e ADP aumenta localmente, a reação da CK contribui para regenerar ATP e, concomitantemente, consome H⁺. Em exercício submáximo estável, PCr inicialmente diminui até um novo estado estacionário à medida que a fosforilação oxidativa aumenta sua contribuição. Assim, o consumo de H⁺ constitui uma consequência bioquímica importante da função da CK, mas não uma justificativa para interpretar a PCr como sendo mobilizada independentemente da necessidade de transferência de energia para simplesmente “neutralizar ácido” (SAHLIN, 1992; POOLE; JONES, 2012).
Surge então um aparente paradoxo: o mesmo Pi que participa do tamponamento também pode contribuir para fadiga. Não há contradição, porque tamponamento não significa eliminação irreversível da molécula. Quando HPO₄²⁻ aceita H⁺, forma-se H₂PO₄⁻; o fosfato continua presente e as duas espécies permanecem em equilíbrio reversível. Durante exercício intenso, a concentração total de Pi pode aumentar várias vezes, e Pi/H₂PO₄⁻ têm sido associados à redução da função das pontes cruzadas, à diminuição da sensibilidade miofibrilar ao Ca²⁺ e a alterações do acoplamento excitação-contração. Evidências recentes reforçam que acidose severa, particularmente nas fibras rápidas, pode contribuir para redução da força e potência e que sua interação com fosfato é mais informativa do que a antiga hipótese segundo a qual “ácido lático” isoladamente causaria fadiga (SAHLIN, 1992; ALLEN; LAMB; WESTERBLAD, 2008).
Essa relação ilustra uma propriedade geral da homeostase muscular: mecanismos defensivos não são necessariamente metabolicamente gratuitos. O fosfato pode participar do tamponamento enquanto sua acumulação compromete aspectos da função contrátil; MCTs removem lactato/H⁺ enquanto modificam gradientes transmembrana; SERCA restaura Ca²⁺ ao retículo sarcoplasmático consumindo ATP; e a Na⁺/K⁺-ATPase preserva a excitabilidade elétrica também às custas de ATP. A fadiga muscular deve, portanto, ser compreendida como resultado emergente da perturbação simultânea de energia, íons, metabólitos, Ca²⁺, estado redox e função contrátil, e não como consequência exclusiva de um metabólito isolado (ALLEN; LAMB; WESTERBLAD, 2008; ROBERGS; GHIASVAND; PARKER, 2004). A literatura atual enfatiza justamente a convergência entre Pi, acidose, alterações iônicas e feedback aferente, em vez de uma explicação monocausal da fadiga.
Extrusão de H⁺ sem lactato: NHE, bicarbonato e o custo energético da homeostase
O cotransporte lactato/H⁺ não constitui a única maneira pela qual a fibra muscular regula seu pH. O Na⁺/H⁺ exchanger, particularmente NHE1, utiliza o gradiente eletroquímico de Na⁺ para promover entrada de Na⁺ e extrusão de H⁺, permitindo que prótons sejam removidos independentemente do lactato. Sistemas dependentes de bicarbonato, incluindo cotransporte Na⁺–HCO₃⁻, também contribuem para a regulação do pH. Em repouso, NHE e mecanismos bicarbonato-dependentes desempenham papel particularmente relevante; durante exercício de elevada demanda metabólica, o cotransporte lactato/H⁺ pode adquirir grande importância devido ao aumento simultâneo das concentrações intracelulares de lactato e H⁺ (JUEL, 1996; JUEL, 2008).
O NHE possui, entretanto, um custo energético indireto que merece consideração. A troca Na⁺out/H⁺in → Na⁺in/H⁺out não hidrolisa ATP diretamente, mas dissipa parcialmente o gradiente de Na⁺ que precisa ser posteriormente restaurado pela Na⁺/K⁺-ATPase. Esta extrude três Na⁺ e introduz dois K⁺ por ATP hidrolisado. Assim, a defesa do pH por NHE transfere parte do custo homeostático para a manutenção dos gradientes Na⁺/K⁺. Durante exercício intenso, isso ocorre simultaneamente ao elevado consumo de ATP pela miosina ATPase, pela SERCA e por outras ATPases. Portanto, a demanda energética do exercício não corresponde apenas ao custo de produzir força: uma fração substancial da energia é necessária para reconstruir continuamente o ambiente iônico que permite à fibra continuar excitável e contrátil (JUEL, 2008; ALLEN; LAMB; WESTERBLAD, 2008).
A entrada de Na⁺ através do NHE também acrescenta partículas osmoticamente ativas ao compartimento intracelular e pode, em princípio, favorecer entrada de água. Contudo, a fibra não constitui um compartimento fechado no qual Na⁺ simplesmente se acumula. A Na⁺/K⁺-ATPase remove continuamente Na⁺ do citosol, e múltiplos canais e transportadores participam da homeostase osmótica. Por isso, não há fundamento para atribuir diretamente ao NHE um edema celular suficiente para constituir mecanismo primário de fadiga durante exercício normal. O fenômeno mais relevante é a elevação do turnover iônico e do custo energético necessário para manter os gradientes, particularmente quando a frequência de potenciais de ação e a perturbação de K⁺ e Na⁺ aumentam intensamente (ALLEN; LAMB; WESTERBLAD, 2008; JUEL, 2008).
É igualmente necessário distinguir redistribuição corporal de Na⁺ de perda corporal de Na⁺. O NHE desloca temporariamente Na⁺ do espaço extracelular para o intracelular, mas esse Na⁺ permanece no organismo e pode retornar ao compartimento extracelular por ação da Na⁺/K⁺-ATPase. A sudorese, ao contrário, remove Na⁺ efetivamente do organismo. Em exercício prolongado, portanto, podem ocorrer simultaneamente redistribuição de Na⁺ para tecidos metabolicamente ativos e perda de Na⁺ pelo suor, mas esses fluxos não devem ser somados como se ambos representassem perda sistêmica. Além disso, a concentração plasmática de Na⁺ depende da relação entre água e solutos corporais; por isso, hiponatremia associada ao exercício é frequentemente determinada por excesso relativo de água e retenção hídrica, e não simplesmente pela quantidade absoluta de Na⁺ perdida no suor (HEW-BUTLER et al., 2015).
Caso a concentração extracelular de Na⁺ diminua suficientemente, o gradiente eletroquímico para entrada de Na⁺ através dos canais Nav1.4 é reduzido e a excitabilidade pode ser afetada. Entretanto, na fadiga aguda do exercício intenso, alterações locais de K⁺ constituem mecanismo particularmente importante. A saída repetitiva de K⁺ durante potenciais de ação eleva [K⁺] no interstício e nos túbulos T, reduz o gradiente transmembrana de K⁺ e pode provocar despolarização sustentada, inativação parcial dos canais rápidos de Na⁺ e comprometimento da propagação do potencial de ação. A Na⁺/K⁺-ATPase trabalha, portanto, não apenas para corrigir Na⁺ introduzido pelo NHE, mas para preservar globalmente os gradientes Na⁺/K⁺ necessários à excitabilidade durante milhares de ciclos de despolarização (ALLEN; LAMB; WESTERBLAD, 2008).
Os mecanismos dependentes de bicarbonato acrescentam outra conexão entre músculo e ventilação. Bicarbonato pode contribuir direta ou indiretamente para a remoção de equivalentes ácidos intracelulares, enquanto H⁺ exportado para o interstício e sangue encontra um grande pool extracelular de HCO₃⁻. A reação H⁺ + HCO₃⁻ ⇌ H₂CO₃ ⇌ CO₂ + H₂O reduz H⁺ livre ao custo de consumir bicarbonato e produzir CO₂. Em exercício de intensidade crescente, portanto, parte da redução do bicarbonato sanguíneo está relacionada ao tamponamento da carga ácida. Esse mecanismo não deve ser confundido com o CO₂ produzido diretamente no metabolismo oxidativo: o CO₂ adicional derivado do tamponamento constitui uma importante conexão entre metabolismo muscular e resposta das trocas gasosas (BEAVER; WASSERMAN; WHIPP, 1986; WASSERMAN et al., 1990).
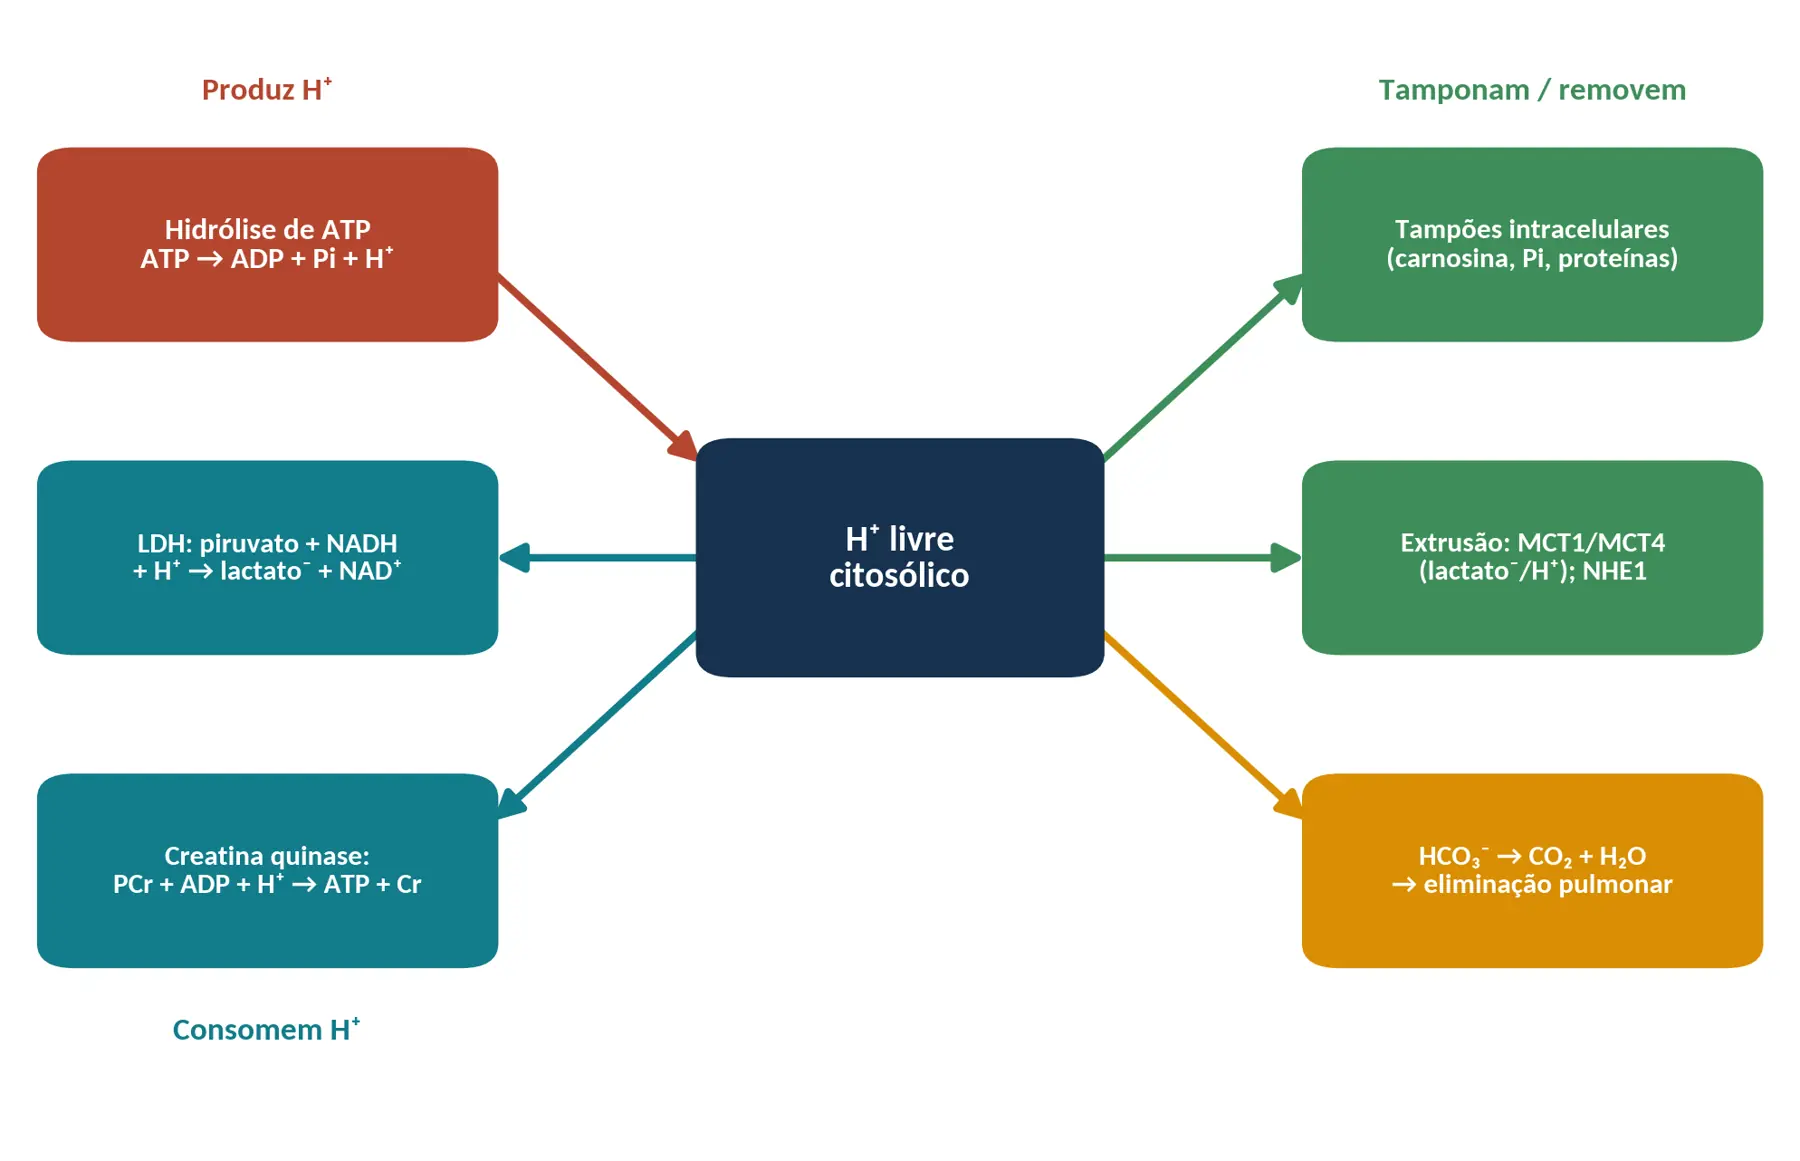
Figura complementar 5 — Balanço de prótons no músculo em exercício: a hidrólise de ATP é a principal fonte de H⁺; LDH e creatina quinase consomem H⁺; tampões, transportadores e o sistema bicarbonato redistribuem a carga ácida. Fonte: elaborada com base em Robergs, Ghiasvand e Parker (2004) e Juel (2008).
Tabela 4 — Sistemas relevantes para a homeostase ácido-base muscular
| Sistema | Mecanismo | Relevância durante exercício |
| LDH | Piruvato + NADH + H⁺ ⇌ lactato⁻ + NAD⁺ | Regenera NAD⁺ e, no sentido de formação de lactato, consome H⁺ |
| Bicarbonato | Tamponamento extracelular com geração de CO₂ | Conecta perturbação ácido-base e ventilação |
| Fosfato/PCr | Tamponamento intracelular e integração à bioenergética | Contribui para limitar variações de pH |
| MCT1/MCT4 | Cotransporte de lactato⁻ e H⁺ | Redistribuição entre fibra, interstício e tecidos |
| NHE/bicarbonato | Extrusão/controle de H⁺ independente do lactato | Complementa a regulação sarcolemal do pH |
7. Do músculo ao pulmão: controle ventilatório e limiares
Se CO₂ é produzido no interior da fibra durante processos associados ao bicarbonato, não permanece necessariamente sequestrado naquele compartimento. CO₂ possui elevada difusibilidade através das membranas biológicas e alcança rapidamente o interstício e a circulação. No sangue, carbono circula como CO₂ dissolvido, bicarbonato e compostos carbamino, com interconversões aceleradas pela anidrase carbônica eritrocitária; nos capilares pulmonares, essas reações são direcionadas para regeneração de CO₂, que difunde para os alvéolos e é eliminado. Portanto, para o CO₂ produzido pelo tamponamento durante exercício, o destino fisiológico final relevante é efetivamente a eliminação pulmonar, embora entre sua produção muscular e sua expiração exista intensa interconversão química e transporte entre compartimentos (WASSERMAN et al., 1990).
Da perturbação muscular à ventilação: comando central, aferências III/IV e quimiorreflexo
A ventilação minuto aumenta desde o início do exercício segundo V̇E = VT × fR, mas seria incorreto atribuir esse aumento exclusivamente à elevação de CO₂ sanguíneo. Durante exercício submáximo estável, V̇E acompanha extraordinariamente bem V̇CO₂ enquanto PaCO₂ permanece relativamente constante. Isso produz um problema conceitual importante: se PaCO₂ está sendo eficazmente controlada, ela não oferece um grande “sinal de erro” capaz de explicar sozinha a hiperpneia. O controle ventilatório do exercício deve, portanto, ser entendido como resultado da integração entre mecanismos feedforward, particularmente comando central, e mecanismos feedback, incluindo aferências musculares e quimiorreflexos periféricos e centrais (FORSTER et al., 2012; AFSHAR et al., 2019). A literatura enfatiza que a hiperpneia submáxima é imediata e proporcional à demanda metabólica apesar da manutenção aproximada da isocapnia.
O comando central representa um componente antecipatório desse controle. Ao aumentar o comando motor descendente necessário para produzir determinada força ou potência, estruturas supramedulares enviam paralelamente sinais para centros cardiorrespiratórios. Essa corollary discharge permite que ventilação e circulação aumentem imediatamente quando o exercício começa, antes que alterações relevantes de lactato, pH ou PaCO₂ tenham se desenvolvido no sangue arterial. À medida que aumenta a intensidade e se eleva o comando motor necessário para recrutar e ativar mais unidades motoras, esse componente feedforward pode contribuir para a progressão da ventilação, embora sua magnitude não possa ser isolada de maneira simples em seres humanos intactos (FORSTER et al., 2012; AFSHAR et al., 2019).
Os quimiorreceptores centrais respondem predominantemente às alterações relacionadas a CO₂/H⁺ no ambiente do sistema nervoso central. Como CO₂ atravessa a barreira hematoencefálica, alterações da PaCO₂ modificam a química ácido-base do líquido extracelular cerebral e influenciam o drive respiratório. Os corpos carotídeos, principais quimiorreceptores periféricos, são sensíveis à PaO₂, mas também a H⁺/pH e CO₂. Em exercício intenso, quando o equilíbrio ácido-base se modifica de maneira mais pronunciada, a contribuição quimiorreflexa torna-se particularmente relevante. Isso não significa que quimiorreceptores “detectem lactato”; eles respondem às variáveis físico-químicas e moleculares às quais são sensíveis, enquanto lactato constitui parte do contexto metabólico que acompanha essas alterações (FORSTER et al., 2012; WASSERMAN et al., 1990).
As aferências musculares dos grupos III e IV fornecem uma terceira via de comunicação entre músculo e centros cardiorrespiratórios. Didaticamente, fibras do grupo III apresentam maior componente mecanossensível, enquanto fibras do grupo IV apresentam forte componente metabossensível, embora exista sobreposição funcional importante. Deformação mecânica, alterações de K⁺, H⁺, ATP e outros mediadores produzidos durante contração podem ativar ou sensibilizar essas terminações, gerando sinais aferentes capazes de modificar ventilação, atividade simpática, pressão arterial e percepção associada ao esforço. Dessa forma, o sistema nervoso central recebe informação sobre a perturbação muscular antes que todos os metabólitos envolvidos precisem alcançar sistemicamente os quimiorreceptores (AMANN et al., 2010; AFSHAR et al., 2019).
A demonstração experimental dessa contribuição em humanos é particularmente relevante. Amann et al. (2010) utilizaram fentanil intratecal para reduzir a projeção central de aferentes musculares sensíveis a opioides durante exercício e observaram alterações nas respostas ventilatórias, cardiovasculares e perceptuais. Esses resultados demonstram que o feedback muscular dos grupos III/IV contribui efetivamente para o controle cardiorrespiratório durante exercício rítmico e não constitui apenas uma construção teórica. Entretanto, comando central, feedback muscular e quimiorreflexos não devem ser considerados sistemas independentes que simplesmente somam suas contribuições; eles interagem no SNC e podem modificar reciprocamente sua influência sobre o drive respiratório (AMANN et al., 2010; AFSHAR et al., 2019).
Essa integração modifica a interpretação dos limiares ventilatórios. O aumento desproporcional de V̇CO₂ decorrente do tamponamento por bicarbonato constitui componente importante da transição detectada pelo método V-slope, mas o aumento de V̇E não decorre exclusivamente desse CO₂ adicional. Comando central, aferências musculares, quimiorreflexos e estado ácido-base modulam conjuntamente a ventilação. Assim, um limiar ventilatório constitui uma manifestação integrada do controle respiratório diante de uma crescente perturbação metabólica, e não um detector pulmonar de lactato ou uma consequência obrigatória de uma determinada concentração sanguínea desse metabólito (BEAVER; WASSERMAN; WHIPP, 1986; AFSHAR et al., 2019).
Por que limiar de lactato e limiar ventilatório podem divergir
Essa arquitetura fisiológica explica por que LT e VT podem ocorrer próximos sem necessariamente coincidir. A lactatemia é determinada pelo balanço entre taxa de aparecimento e taxa de desaparecimento do lactato no compartimento sanguíneo, enquanto a ventilação é determinada por uma rede de controle que incorpora V̇CO₂, estado ácido-base, quimiorreflexos, comando central, feedback muscular e mecânica ventilatória. Portanto, dois indivíduos com lactatemia semelhante podem apresentar respostas ventilatórias distintas, assim como alterações no treinamento podem deslocar uma dessas respostas em magnitude diferente da outra. A proximidade frequentemente observada entre LT1 e VT1 decorre do forte acoplamento entre os fenômenos que emergem com a elevação da intensidade, não de identidade mecanística entre eles (BEAVER; WASSERMAN; WHIPP, 1986; JAMNICK et al., 2020).
Para o treinador, a discrepância não deve ser automaticamente eliminada escolhendo o marcador que “parece correto”. Quando lactato e trocas gasosas são medidos adequadamente, sua divergência pode conter informação. Um deslocamento favorável da curva de lactato pode refletir alterações na produção, distribuição e principalmente utilização do lactato, enquanto alterações ventilatórias podem refletir adicionalmente controle respiratório, estado ácido-base e feedback neural. A interpretação deve considerar protocolo, duração dos estágios, cinética das variáveis, modalidade de exercício e reprodutibilidade. O objetivo da avaliação não deveria ser obrigar LT e VT a fornecer a mesma intensidade, mas compreender qual processo fisiológico cada medida está informando (JAMNICK et al., 2020).
Da mesma maneira, treinamento muscular inspiratório e treinamento periférico de alta intensidade atuam sobre componentes diferentes do sistema. O treinamento dos músculos respiratórios pode aumentar força e resistência inspiratória e reduzir o custo relativo imposto pela ventilação em situações de elevada demanda, mas não elimina a necessidade ventilatória determinada pela produção de CO₂ e pelo controle ácido-base. O treinamento de alta intensidade, por outro lado, pode aumentar capacidade tampão muscular, modificar sistemas de transporte de H⁺/lactato e promover adaptações oxidativas. Portanto, um VT elevado não deve ser interpretado exclusivamente como deficiência dos músculos respiratórios, assim como lactato elevado não constitui diagnóstico automático de baixa capacidade mitocondrial (WESTON et al., 1997; JUEL, 2008).
Lactatemia, recrutamento de fibras e a falsa fronteira entre fibras I e II
A concentração sanguínea de lactato também não permite inferir diretamente que o indivíduo possui “poucas mitocôndrias”. Em termos de fluxo, [lactato] sanguíneo resulta do balanço entre aparecimento e desaparecimento. Uma elevação pode decorrer de maior produção, menor utilização, ou de ambas, e o desaparecimento depende de capacidade oxidativa muscular, transporte por MCTs, perfusão, recrutamento muscular, oxidação cardíaca e muscular e conversão de carbono do lactato em glicose, entre outros destinos. Portanto, elevada lactatemia durante determinada intensidade pode sugerir uma alteração do balanço produção–utilização, mas não identifica isoladamente o mecanismo responsável (BROOKS, 2018; GLADDEN, 2004).
Isso se torna particularmente importante ao relacionar LT1 ao recrutamento de fibras tipo II. Abaixo do primeiro limiar existe predominância de unidades motoras de menor limiar em muitas tarefas de endurance, mas isso não significa recrutamento exclusivo de fibras tipo I. O recrutamento constitui um continuum dependente de força por contração, cadência, modalidade, arquitetura muscular, estado de treinamento e fadiga. Unidades contendo fibras IIa podem participar do exercício abaixo de LT1, e sua participação pode aumentar progressivamente muito antes que seja observada elevação sustentada da lactatemia. Consequentemente, LT1 não pode ser definido como o instante em que “começam a ser recrutadas fibras II” (HODSON-TOLE; WAKELING, 2009; SCHIAFFINO; REGGIANI, 2011).
A participação de fibras IIa abaixo de LT1 tampouco cria um paradoxo metabólico. Fibras II não são unidades anaeróbias. Fibras IIa possuem capacidade oxidativa considerável e podem simultaneamente produzir e oxidar lactato. Além disso, lactato exportado por uma fibra pode ser captado por fibras oxidativas adjacentes através do cell-to-cell lactate shuttle, alcançar o coração ou outros músculos pela circulação ou fornecer carbono para gliconeogênese hepática e renal. Assim, produção local de lactato pode aumentar sem produzir elevação mensurável da concentração sanguínea quando a capacidade de utilização acompanha o aparecimento (BROOKS, 2009; SCHIAFFINO; REGGIANI, 2011).
As fibras tipo I constituem, portanto, um importante sink oxidativo para lactato, mas não o único. O modelo didático mais correto não é “fibra II produz → fibra I remove”, mas uma rede de produção, transporte e utilização na qual diferentes células podem desempenhar simultaneamente funções produtoras e consumidoras. O lactato constitui um intermediário de distribuição de carbono e energia entre compartimentos. Dados recentes reforçam a conexão entre transporte de lactato por MCT1, fluxo pelo ciclo dos ácidos tricarboxílicos e regulação do fenótipo mitocondrial, demonstrando que o lactate shuttle possui implicações que ultrapassam a simples remoção de um metabólito (BROOKS, 2018; CHEN et al., 2024).
Nesse contexto, uma interpretação mais precisa de LT1 é considerá-lo uma região na qual a combinação entre maior demanda energética, ampliação progressiva do recrutamento, aceleração do fluxo glicolítico e capacidade sistêmica de utilização de lactato começa a produzir alteração detectável e sustentada da lactatemia. Antes dessa transição pode haver produção substancial de lactato, mas aparecimento e desaparecimento permanecem suficientemente equilibrados para impedir acúmulo sanguíneo progressivo. LT1 é, portanto, uma propriedade emergente de um sistema distribuído, e não um interruptor que indica a entrada de um novo tipo de fibra ou o início de um metabolismo até então ausente (BROOKS, 2018; JAMNICK et al., 2020).
Intensidade, recrutamento e biogênese mitocondrial: por que volume e intensidade não produzem adaptações idênticas
A adaptação mitocondrial também deve ser retirada de uma interpretação binária das zonas. Tanto exercício contínuo de intensidade baixa/moderada quanto treinamento intervalado intenso podem aumentar conteúdo e função mitocondrial. Entretanto, intensidade e volume modificam de maneira diferente a magnitude, a duração e a distribuição celular dos sinais. Revisões da literatura sugerem que o volume apresenta associação particularmente importante com aumentos do conteúdo mitocondrial, enquanto a intensidade pode exercer influência acentuada sobre determinadas medidas de função respiratória mitocondrial. Essa distinção representa uma tendência experimental e não uma regra segundo a qual “treino leve aumenta quantidade e HIIT aumenta função” (BISHOP; GRANATA; EYNON, 2014).
Durante exercício prolongado, milhares de ciclos de contração produzem repetidos transientes de Ca²⁺. O Ca²⁺ não constitui apenas o sinal que permite a interação actina–miosina; atua também como mensageiro intracelular capaz de influenciar CaMK, calcineurina e outras proteínas envolvidas no fenótipo oxidativo. Simultaneamente, a utilização sustentada de ATP altera o estado energético e pode ativar AMPK, enquanto espécies reativas e alterações redox modulam outras redes de sinalização. Portanto, não é correto estabelecer a dicotomia “treinamento leve = Ca²⁺” e “treinamento intenso = AMPK”. Ambos os sinais existem em diferentes modalidades; o que muda é sua magnitude, frequência, duração e localização nas fibras recrutadas (HOOD, 2001; GRANATA; JAMNICK; BISHOP, 2018; THIRKETTLE-WATTS et al., 2020). A sinalização redox também participa de adaptações como biogênese mitocondrial e angiogênese.
O treinamento de alta intensidade acrescenta uma característica decisiva: maior turnover de ATP por unidade de tempo, maior perturbação de PCr/Pi e ADP/AMP, maior cycling de Ca²⁺ e, sobretudo, recrutamento mais amplo de unidades motoras de maior limiar. Assim, fibras IIa — e, dependendo da intensidade, tarefa e fadiga, populações de limiar ainda maior — recebem uma dose contrátil e metabólica que pode ser muito menor durante exercício leve. Esse princípio explica por que intensidade pode modificar qualitativamente a distribuição do estímulo mitocondrial entre fibras e por que aumentar intensidade constitui uma maneira eficiente de promover remodelamento oxidativo em populações musculares de maior limiar (GRANATA et al., 2016; GRANATA; JAMNICK; BISHOP, 2018). Em humanos, a intensidade do treinamento modulou PGC-1α, p53 e respiração mitocondrial sem produzir a mesma dependência para marcadores de conteúdo mitocondrial.
Entretanto, intensidade não é a única maneira de recrutar progressivamente unidades adicionais. Durante exercício prolongado, a fadiga das unidades inicialmente ativas pode exigir recrutamento compensatório de unidades de maior limiar para manter a potência ou velocidade externa. Isso explica por que intensidade e duração devem ser consideradas conjuntamente. Uma sessão relativamente leve, mas muito longa, não constitui simplesmente uma versão ampliada dos primeiros minutos de exercício: a distribuição do recrutamento e a perturbação energética podem mudar ao longo do tempo. A dose adaptativa deve, portanto, ser concebida como função da intensidade relativa, duração, recrutamento, estado energético, disponibilidade de substratos, histórico de treinamento e recuperação (GRANATA; JAMNICK; BISHOP, 2018).
A PGC-1α ocupa posição central nessa integração, mas tampouco deve ser concebida como um simples interruptor molecular. Exercício pode modificar rapidamente atividade, localização subcelular e posteriormente expressão de PGC-1α, coordenando programas transcricionais relacionados à biogênese mitocondrial. AMPK, p38 MAPK, Ca²⁺-dependência e sinalização redox convergem direta ou indiretamente sobre essa rede. Importante, evidências demonstram que eventos iniciais de biogênese mitocondrial podem preceder o aumento mensurável da quantidade total de proteína PGC-1α, reforçando a importância de sua ativação e localização, e não apenas de sua expressão absoluta (WRIGHT et al., 2007; GRANATA; JAMNICK; BISHOP, 2018).
O primeiro limiar ventilatório/GET e o ponto de compensação respiratória não devem ser tratados como simples reflexos de uma única concentração de lactato. O controle ventilatório integra comando central, aferências musculares, quimiorreflexos, CO₂ metabólico e CO₂ adicional proveniente do tamponamento por bicarbonato. Por isso, LT e VT frequentemente ocorrem em regiões próximas, mas podem dissociar-se e dependem do método de determinação (WASSERMAN; BEAVER; WHIPP, 1990; JAMNICK et al., 2020).
Figura complementar 6 — Critérios ventilatórios clássicos para GET/VT1 e RCP/VT2: (a) V-slope; (b) equivalentes ventilatórios; (c) pressões expiratórias de O₂ e CO₂. Os critérios dependentes de CO₂ exigem analisador de O₂ e CO₂. Curvas esquemáticas. Fonte: elaborada com base em Beaver, Wasserman e Whipp (1986) e Wasserman, Beaver e Whipp (1990).
Tabela 5 — Critérios para identificação de transições fisiológicas por diferentes métodos
| Sistema/metodologia | Primeiro limiar: o que comparar com o quê? | Como reconhecer o primeiro ponto de inflexão | Segundo limiar: o que comparar com o quê? | Como reconhecer o segundo ponto de inflexão | Interpretação e limitações |
| Analisador completo O₂ + CO₂ — V-slope | VCO₂ × VO₂ durante o teste incremental | Mudança de inclinação em que VCO₂ passa a aumentar desproporcionalmente em relação ao VO₂ → GET/VT1 | O V-slope não é, isoladamente, o método principal para RCP | Utilizam-se principalmente os critérios ventilatórios de compensação respiratória descritos abaixo | É um dos critérios clássicos mais robustos para GET porque utiliza diretamente a relação entre eliminação de CO₂ e consumo de O₂ |
| Analisador completo O₂ + CO₂ — equivalentes ventilatórios | VE/VO₂ × intensidade conjuntamente com VE/VCO₂ × intensidade | VE/VO₂ atinge nadir e começa a subir enquanto VE/VCO₂ permanece aproximadamente estável → VT1/GET | VE/VCO₂ × intensidade, juntamente com VE/VO₂ | VE/VCO₂ também passa a aumentar de forma sustentada → VT2/RCP | A combinação de critérios é superior à utilização de uma única curva |
| Analisador completo O₂ + CO₂ — pressões expiratórias | PETO₂ × intensidade e PETCO₂ × intensidade | PETO₂ começa a aumentar sem queda concomitante de PETCO₂ | Principalmente PETCO₂ × intensidade | PETCO₂ atinge máximo/platô e passa a cair → RCP | Critério confirmatório importante; depende da qualidade da amostragem respiratória |
| VO₂ Master — primeiro limiar | Principalmente VE/VO₂ (EqO₂) × velocidade/potência; complementarmente VE, Rf, VT e FeO₂ × intensidade | Procurar nadir seguido de elevação sustentada de VE/VO₂, associado a mudança coerente no padrão ventilatório | — | — | É possível estimar uma primeira transição ventilatória porque VO₂ e VE são medidos. Não é possível executar V-slope, pois VCO₂ não é medido |
| VO₂ Master — segundo limiar | — | — | VE × intensidade, Rf × intensidade, eventualmente VT e demais variáveis ventilatórias; idealmente integrar lactato e/ou SmO₂ | Procurar segunda aceleração ventilatória/desproporcionalidade e mudança coordenada de Rf/VE; corroborar externamente | Não chamar automaticamente de RCP medido. Sem VCO₂ não existem VE/VCO₂ nem PETCO₂, portanto faltam os critérios canônicos de compensação respiratória |
| Moxy/NIRS — MOT1 | SmO₂ × potência/velocidade — ou SmO₂ × tempo quando a carga aumenta continuamente com o tempo | Primeira mudança consistente de inclinação da curva de SmO₂; preferencialmente regressão linear segmentada/change-point | — | — | Evidência menos robusta para MOT1; meta-análise encontrou ICC ≈0,53 contra LT1/VT1. Não assumir equivalência automática |
| Moxy/NIRS — MOT2 | — | — | SmO₂ × potência/velocidade | Segunda alteração de inclinação, quebra/acentuação ou mudança do padrão de desoxigenação, dependendo do protocolo; regressão linear dupla foi o método mais frequente na literatura analisada | Evidência de concordância melhor que para MOT1; ICC agregado ≈0,80 contra LT2/VT2, porém com heterogeneidade elevada |
| Moxy/NIRS — Dmax/mDmax | Curva de SmO₂ × intensidade e distância máxima entre a curva ajustada e uma linha de referência | O ponto matemático de maior distância é tomado como breakpoint | A mesma lógica pode ser aplicada conforme protocolo | Breakpoint matemático da curva | Não deve ser empregado de maneira acrítica: Cayot et al. encontraram boa confiabilidade da StO₂, mas baixa confiabilidade teste-reteste dos limiares Dmax/mDmax |
| Lactato — LT1 | [La⁻] sanguíneo × potência/velocidade | Primeiro aumento sustentado acima do basal ou outro algoritmo previamente definido | — | — | O método precisa ser explicitado; valores fixos e métodos individualizados não são intercambiáveis |
| Lactato — LT2 | — | — | [La⁻] × potência/velocidade | Segunda aceleração da curva por método definido, como Dmax/mDmax, limiar individual ou outro critério validado | 4 mmol·L⁻¹ não constitui uma constante biológica universal; protocolo, duração dos estágios e indivíduo alteram a correspondência |
| Integração VO₂ Master + Moxy + lactato | EqO₂/VE + SmO₂ + [La⁻], todos referenciados à mesma velocidade/potência | Procurar convergência temporal/intensidade entre primeira mudança ventilatória, primeira alteração muscular e LT1 | VE/Rf + SmO₂ + [La⁻], referenciados à intensidade | Procurar convergência entre segunda transição ventilatória estimada, MOT2 e LT2 | Particularmente útil quando não há CO₂. A convergência aumenta a confiança; a divergência deve ser reportada, não artificialmente eliminada |
PARTE III — DA CONTRAÇÃO À PLASTICIDADE MITOCONDRIAL E MICROVASCULAR
8. A contração como evento de sinalização
O músculo esquelético constitui um tecido extraordinariamente plástico, capaz de modificar sua arquitetura vascular, capacidade de transporte de substratos, densidade e função mitocondrial e perfil metabólico em resposta às características do estímulo contrátil. Essa plasticidade não resulta de uma única via de sinalização, mas da integração entre perturbações energéticas, iônicas, redox e hemodinâmicas produzidas durante o exercício. A elevação transitória do Ca²⁺ intracelular, o aumento do turnover de ATP e das razões AMP/ATP e ADP/ATP, as alterações do estado redox celular, incluindo NAD⁺/NADH, e a produção controlada de espécies reativas de oxigênio (ROS) constituem sinais precoces capazes de transformar a contração muscular aguda em respostas transcricionais e, quando repetidos sistematicamente, em remodelamento estrutural e funcional do músculo (HUERTAS et al., 2019; REISMAN; HAWLEY; HOFFMAN, 2024).
Essa perspectiva modifica a interpretação tradicional do treinamento de endurance. A adaptação não deve ser entendida simplesmente como consequência de um aumento genérico do metabolismo aeróbico, mas como produto da repetição de perturbações celulares específicas. A natureza, magnitude e duração dessas perturbações variam com intensidade, duração, padrão de recrutamento muscular, disponibilidade de substratos e estado prévio de treinamento. Por essa razão, diferentes intensidades de exercício podem produzir adaptações parcialmente convergentes, porém por combinações distintas de sinais moleculares.
A contração muscular eleva repetidamente a concentração citosólica de Ca²⁺, sobretudo pela liberação a partir do retículo sarcoplasmático. Além de sua função indispensável no acoplamento excitação-contração, o Ca²⁺ funciona como mensageiro metabólico. A ativação de proteínas sensíveis ao complexo Ca²⁺-calmodulina, particularmente as Ca²⁺/calmodulina-dependent protein kinases (CaMK), estabelece uma conexão entre frequência e duração das contrações e regulação da expressão gênica. Paralelamente, a aceleração da hidrólise de ATP durante o exercício aumenta o fluxo pelo sistema adenilato-quinase e modifica o estado energético celular, favorecendo a ativação da AMP-activated protein kinase (AMPK). Assim, Ca²⁺ informa à célula que a maquinaria contrátil está sendo repetidamente recrutada, enquanto AMP e ADP sinalizam que esse recrutamento está impondo demanda energética elevada (HUERTAS et al., 2019; REISMAN; HAWLEY; HOFFMAN, 2024).
As ROS integram esse sistema não apenas como potenciais agentes de dano oxidativo, mas também como moléculas sinalizadoras. Em concentrações fisiológicas e espacialmente controladas, modificações redox reversíveis de proteínas reguladoras participam da resposta adaptativa ao exercício. Dessa forma, Ca²⁺, AMPK, MAPKs sensíveis ao estado metabólico e redox, além de alterações em NAD⁺/NADH e outras redes regulatórias, convergem sobre fatores de transcrição e coativadores envolvidos na remodelação do fenótipo oxidativo. Entre eles, destaca-se o peroxisome proliferator-activated receptor gamma coactivator 1-alpha (PGC-1α), cuja atividade, localização subcelular e expressão são reguladas pelo exercício. PGC-1α participa da coordenação entre genomas nuclear e mitocondrial, interagindo com fatores como NRFs, ERRα e sistemas que regulam TFAM e a expressão de proteínas necessárias à expansão e remodelamento da rede mitocondrial (REISMAN; HAWLEY; HOFFMAN, 2024).
O conceito de remodelamento mitocondrial é, portanto, mais abrangente do que a expressão “biogênese mitocondrial” pode sugerir. O treinamento modifica conteúdo proteico, densidade das cristas, capacidade respiratória, organização da rede mitocondrial, dinâmica de fusão e fissão, turnover de organelas por mitofagia e composição dos complexos respiratórios. A adaptação crônica representa a integração temporal de sucessivos sinais agudos. Uma sessão de exercício não precisa, por si só, produzir grande alteração estrutural; ela desencadeia sinalização e expressão gênica que, quando reiteradas ao longo de semanas e meses, alteram o fenótipo muscular (HUERTAS et al., 2019; REISMAN; HAWLEY; HOFFMAN, 2024).
Essa lógica ajuda a compreender por que intensidade e volume não devem ser tratados como estímulos intercambiáveis. Intensidades elevadas podem produzir grandes perturbações energéticas e forte sinalização molecular por unidade de tempo. Entretanto, sessões prolongadas em intensidades baixas ou moderadas permitem acumular grande duração de contração, elevado fluxo oxidativo e repetida ativação metabólica com menor custo glicolítico, autonômico e neuromuscular relativo. Portanto, a magnitude instantânea de um sinal não necessariamente prediz a magnitude da adaptação crônica. A dose fisiológica resulta da interação entre intensidade, duração, frequência das sessões e capacidade de recuperação.
Remodelamento vascular e o papel do exercício contínuo de baixa a moderada intensidade
A adaptação ao endurance não ocorre apenas dentro da fibra muscular. Para que maior capacidade mitocondrial possa ser efetivamente utilizada, o músculo necessita de uma rede microvascular capaz de fornecer O₂ e substratos e remover ou redistribuir metabólitos. A angiogênese muscular constitui, assim, componente estrutural essencial do fenótipo oxidativo. O treinamento aumenta a razão capilar:fibra e outros índices de capilarização, reduzindo as distâncias de difusão e aumentando a superfície disponível para trocas entre sangue e tecido.
O vascular endothelial growth factor (VEGF) ocupa posição central nesse processo. A contração muscular altera o fluxo sanguíneo, o shear stress endotelial, a disponibilidade local de O₂, o estado energético e diferentes sinais produzidos pelas fibras e pelo endotélio. O resultado é uma modulação coordenada de fatores pró-angiogênicos e angiostáticos. A resposta vascular não deve, portanto, ser reduzida a uma relação linear segundo a qual maior intensidade produz necessariamente maior angiogênese.
Essa distinção é particularmente importante quando se discute o treinamento convencionalmente denominado “Zona 2”. O termo Zona 2 não possui definição uniforme entre modelos de três, cinco ou mais zonas e, por isso, não pode ser simplesmente transposto para estudos que prescrevem intensidade como percentual do VO₂max. Ainda assim, existe evidência consistente de que treinamento contínuo de intensidade baixa a moderada, sobretudo quando associado a elevado volume, constitui estímulo robusto para aumento da capilarização. Meta-análise de Liu et al. (2022), envolvendo diferentes protocolos de treinamento, confirmou que exercício contínuo e intervalado podem aumentar a capilarização muscular e demonstrou que intensidade e duração modulam essa resposta. Portanto, é cientificamente mais apropriado afirmar que o treinamento contínuo submáximo de elevado volume representa importante estímulo angiogênico do que atribuir exclusividade da angiogênese a uma determinada “zona” de treinamento.
Um achado experimental particularmente elucidativo foi apresentado por Hoier et al. (2013). Ao compararem exercício moderado com exercício intervalado intenso em homens previamente condicionados, os autores observaram que o exercício intenso produziu aumento aproximadamente 60% menor do VEGF intersticial. Além disso, o fluido intersticial coletado durante exercício moderado induziu maior proliferação endotelial in vitro que aquele obtido durante exercício intenso. Quatro semanas adicionais de treinamento intervalado intenso não aumentaram a capilarização do músculo previamente condicionado pelo treinamento moderado. Esses resultados demonstram que maior estresse metabólico instantâneo não implica obrigatoriamente maior estímulo angiogênico.
Isso não significa que o exercício de alta intensidade seja incapaz de induzir angiogênese. Jensen, Bangsbo e Hellsten (2004) demonstraram aumento significativo da razão capilar:fibra após quatro semanas de treinamento intervalado intenso, acompanhado por proliferação transitória de células endoteliais. O resultado evidencia a importância do estado inicial de treinamento e do contexto experimental: indivíduos não adaptados podem responder angiogenicamente a diferentes modalidades, enquanto músculo já extensamente condicionado por treinamento moderado pode apresentar menor espaço adaptativo adicional diante de um estímulo intenso (JENSEN; BANGSBO; HELLSTEN, 2004).
A elevada eficácia fisiológica do treinamento contínuo prolongado pode, portanto, ser compreendida como consequência de uma dose integrada. Durante períodos prolongados, o músculo permanece submetido a aumento do fluxo sanguíneo, shear stress, consumo de O₂, recrutamento de fibras oxidativas e sinalização angiogênica. Uma intensidade que possa ser sustentada por longo período e repetida frequentemente permite acumular uma grande exposição semanal a esses estímulos. Isso fornece uma base fisiológica para compreender por que atletas de endurance realizam grande proporção do treinamento em intensidades abaixo ou próximas ao primeiro limiar, sem que seja necessário assumir que exista uma “zona molecular” exclusiva para angiogênese.
Lactato como intermediário energético e veículo de transferência de carbono
A adaptação oxidativa do músculo exige também reconsiderar o papel do lactato. A interpretação histórica do lactato como produto terminal da glicólise anaeróbia e simples resíduo metabólico tornou-se incompatível com a evidência acumulada. O lactato é continuamente produzido e consumido, inclusive em condições plenamente aeróbicas, funcionando simultaneamente como intermediário energético, precursor gliconeogênico, molécula de sinalização e veículo para transferência de carbono entre células e tecidos. Revisões contemporâneas acrescentam ainda funções regulatórias relacionadas à sinalização celular e à lactilação de proteínas, ampliando substancialmente seu significado biológico (BARTOLONI et al., 2024).
A reação catalisada pela lactato desidrogenase (LDH) é reversível. Piruvato, NADH e H⁺ podem formar lactato e NAD⁺, enquanto lactato pode ser oxidado a piruvato com redução de NAD⁺ a NADH. A produção de lactato durante exercício não constitui, portanto, uma via sem retorno. Ao contrário, o lactato pode deixar a célula produtora, ser captado por outra fibra muscular ou outro tecido e fornecer carbono para oxidação. Essa concepção fundamenta a hipótese dos lactate shuttles, segundo a qual produção e utilização de lactato podem ocorrer simultaneamente em diferentes compartimentos.
Os monocarboxylate transporters MCT1 e MCT4 desempenham papel decisivo nessa dinâmica. Ambos realizam cotransporte de monocarboxilatos associado a H⁺, e o sentido líquido do transporte depende dos gradientes eletroquímicos e das concentrações dos substratos. Contudo, suas propriedades cinéticas e distribuição tecidual são diferentes. No músculo esquelético humano, MCT4 apresenta associação particularmente evidente com fibras tipo II e fenótipo glicolítico, enquanto MCT1 está relacionado mais fortemente ao fenótipo oxidativo em comparações entre músculos, embora diferenças entre tipos de fibra dentro do mesmo músculo possam ser menores do que representações didáticas simplificadas sugerem (PILEGAARD et al., 1999).
Essa organização oferece a base anatômica e molecular para o cell-to-cell lactate shuttle. Uma fibra com elevado fluxo glicolítico pode produzir lactato em alta velocidade e estabelecer gradiente favorável à sua saída, com participação importante do MCT4. O lactato alcança o compartimento intersticial e pode ser captado por fibras vizinhas dotadas de elevada capacidade oxidativa e MCT1. Assim, fibras musculares adjacentes podem constituir compartimentos metabólicos complementares: uma região predominantemente glicolítica fornece lactato e outra, predominantemente oxidativa, utiliza esse lactato como substrato.
A proximidade espacial entre essas fibras é fisiologicamente relevante. O lactato não precisa necessariamente ser lançado na circulação sistêmica, percorrer longas distâncias e posteriormente retornar ao músculo. Parte do carbono pode ser redistribuída localmente através do espaço intersticial. A rede capilar, nesse contexto, não representa apenas uma via de fornecimento de O₂, mas também integra a dinâmica de troca de substratos entre fibras, sangue e outros tecidos. Angiogênese, expressão de MCTs e expansão da capacidade mitocondrial tornam-se, assim, componentes funcionalmente interdependentes do fenótipo de endurance.
A adaptação ao treinamento reforça essa integração. Dubouchaud et al. (2000) demonstraram que nove semanas de treinamento de endurance a aproximadamente 75% do VO₂pico aumentaram em 75% a atividade da citrato sintase e elevaram o conteúdo de MCT1 em aproximadamente 90% no músculo total, 60% na fração enriquecida em sarcolema e 78% na fração enriquecida em mitocôndrias. MCT4 sarcolemal também aumentou, embora com maior variabilidade interindividual. Os autores interpretaram os resultados como suporte tanto ao cell-to-cell lactate shuttle quanto a um possível intracellular lactate shuttle associado ao MCT1 (DUBOUCHAUD et al., 2000).
Esses resultados são particularmente importantes porque demonstram que aumentar a capacidade oxidativa muscular não significa simplesmente reduzir a produção de lactato. O treinamento aprimora também a capacidade de transportar, redistribuir e utilizar lactato. Um músculo altamente treinado pode apresentar grande fluxo de lactato sem necessariamente apresentar grande acumulação de lactato, pois o aparecimento e o desaparecimento desse metabólito estão acelerados simultaneamente. A concentração sanguínea de lactato constitui apenas o resultado líquido desses processos e não mede diretamente sua taxa de produção.
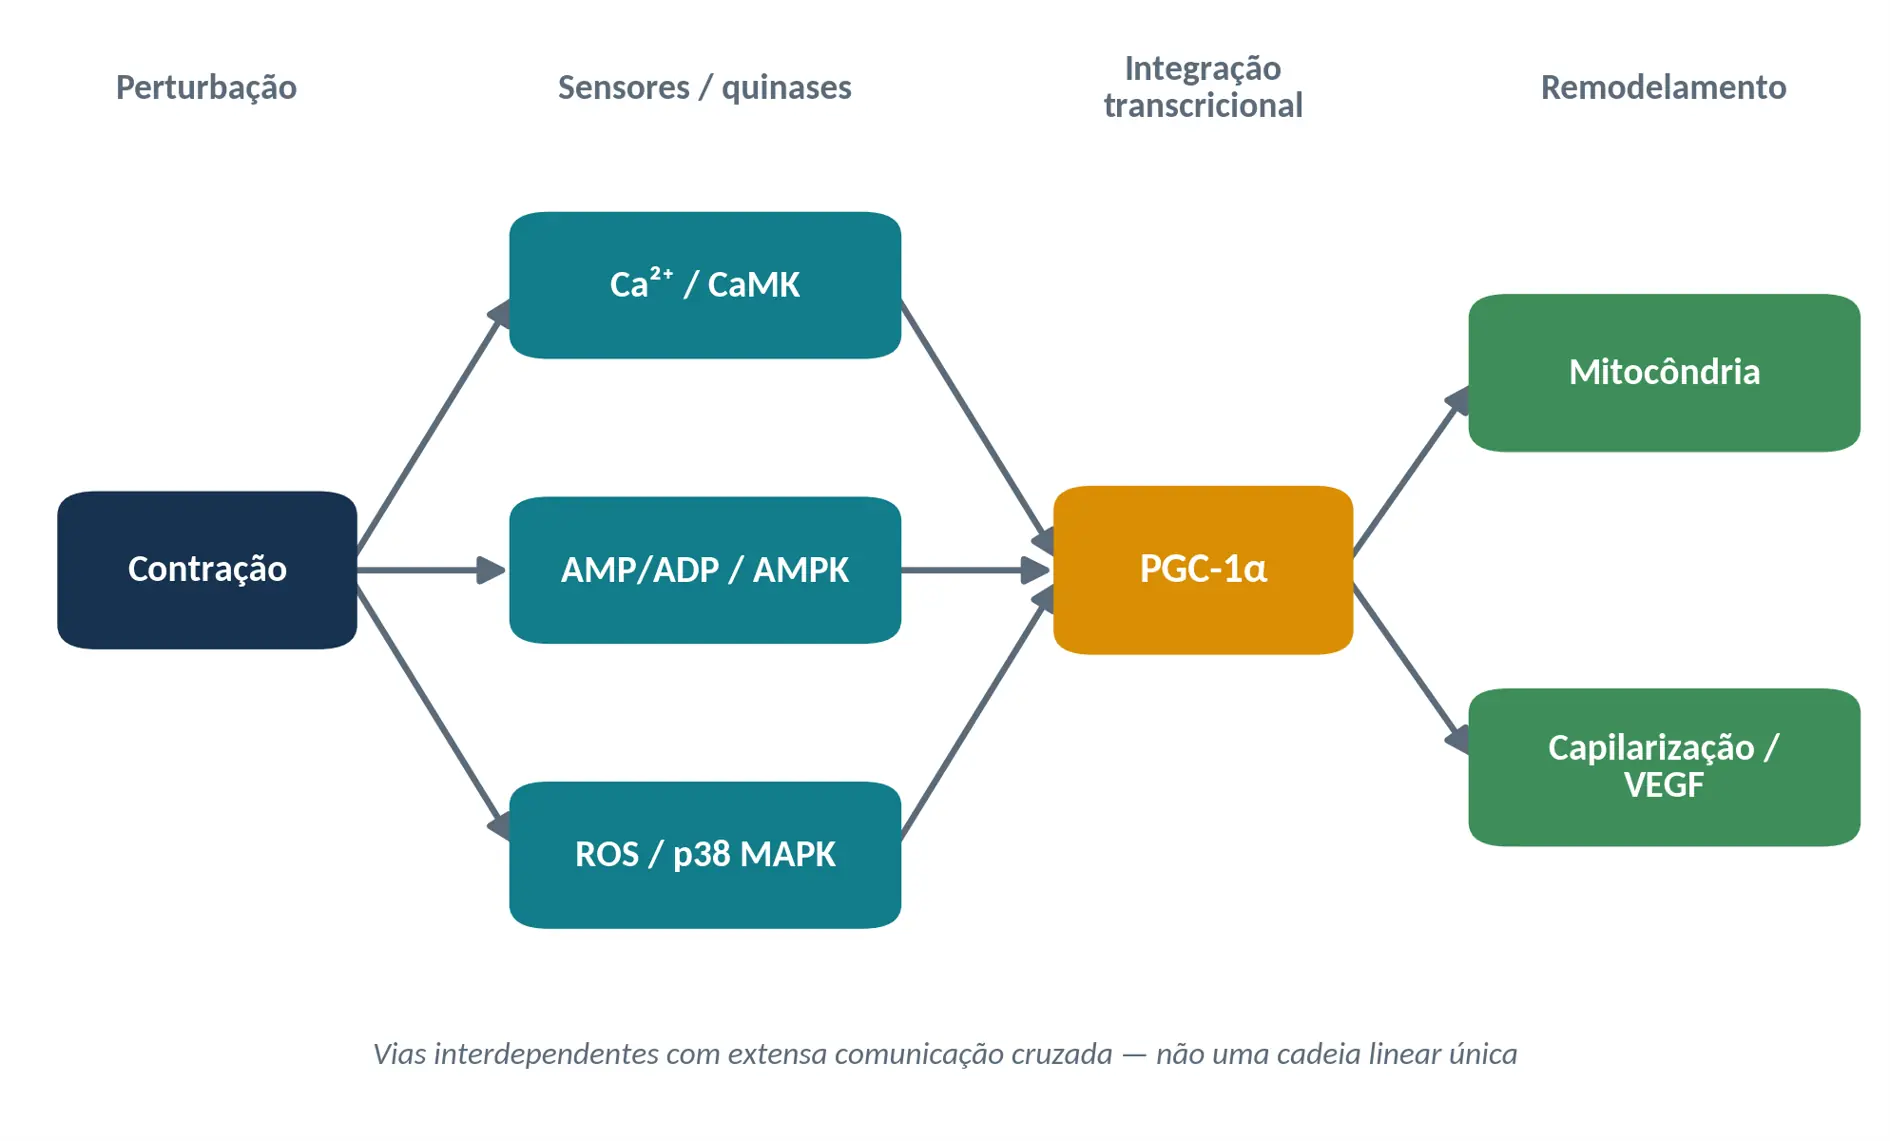
Figura 3 — Rede simplificada de sinalização que conecta perturbação contrátil, estado energético e redox ao remodelamento oxidativo. As vias apresentam extensa interdependência e não constituem uma cadeia linear única.
9. PGC-1α, biogênese, dinâmica e qualidade mitocondrial
Lactato como combustível e sinal: existe uma ligação com a biogênese mitocondrial?
O lactato acrescenta uma dimensão particularmente relevante a essa rede adaptativa. Além de combustível e intermediário de transferência de carbono, existem evidências experimentais de que ele participa de sinalização celular. Estudos em modelos musculares mostraram que exposição ao lactato pode modificar estado redox e expressão de genes relacionados ao metabolismo oxidativo, levando à proposição do lactato como molécula sinalizadora. Estudos mais recentes também demonstram relações entre transporte de lactato por MCT1, NAD⁺/SIRT1, PGC-1α e fenótipo mitocondrial. Assim, o lactate shuttle deve ser entendido não apenas como mecanismo de distribuição energética, mas potencialmente como componente da comunicação metabólica que participa do remodelamento celular (HASHIMOTO et al., 2007; BROOKS, 2018; CHEN et al., 2024).
Isso não autoriza, entretanto, concluir que lactato seja o sinal dominante ou necessário para a biogênese mitocondrial induzida pelo exercício. A adaptação emerge da integração entre Ca²⁺, AMPK, p38 MAPK, estado redox, NAD⁺/sirtuínas, disponibilidade de substratos, tensão contrátil e outros sinais. Lactato deve ser inserido nessa rede, e não substituir essa rede. O mesmo cuidado é ainda mais necessário para H⁺: alterações do pH modificam numerosas proteínas e reações celulares e podem participar direta ou indiretamente da sinalização, mas a evidência para uma cadeia simples “acidose → PGC-1α → biogênese mitocondrial” é muito menos estabelecida do que aquela existente para Ca²⁺, estado energético e sinalização redox (GRANATA; JAMNICK; BISHOP, 2018; THIRKETTLE-WATTS et al., 2020).
A acidose deve ser compreendida principalmente como parte da perturbação homeostática produzida por elevado fluxo energético. Em níveis pronunciados, particularmente nas fibras rápidas, H⁺ e H₂PO₄⁻ podem contribuir para redução da atividade das pontes cruzadas, da sensibilidade ao Ca²⁺ e da potência contrátil; paralelamente, alterações extracelulares de H⁺, lactato e outros metabólitos participam da estimulação de aferentes musculares III/IV, influenciando respostas cardiorrespiratórias e perceptuais. Dessa maneira, a perturbação ácido-base conecta metabolismo, função contrátil e comunicação músculo–SNC, mas não precisa ser elevada ao status de principal sinalizador da biogênese mitocondrial para exercer papel fisiológico importante (ALLEN; LAMB; WESTERBLAD, 2008). Evidências atuais sustentam contribuição da acidose severa para fadiga de força/potência sem retornar ao antigo modelo monocausal do “ácido lático”.
Uma síntese biológica para interpretar zonas e limiares
A integração desses mecanismos permite reinterpretar a progressão da intensidade. Quando a intensidade aumenta, aumenta a taxa de hidrólise e ressíntese de ATP, ampliam-se o recrutamento de unidades motoras e a perturbação de PCr, Pi, ADP/AMP, Ca²⁺, estado redox e fluxos glicolítico e oxidativo. A formação e redistribuição de lactato aumentam; a homeostase de H⁺ passa a depender cada vez mais de tampões, MCTs, NHE e sistemas bicarbonato-dependentes; a restauração dos gradientes de Na⁺, K⁺ e Ca²⁺ exige ATP adicional; aferências III/IV transmitem ao SNC informações sobre o estado mecânico e metabólico muscular; comando central aumenta em paralelo à necessidade de ativação motora; e quimiorreflexos modulam a ventilação conforme se modifica o ambiente gasométrico e ácido-base. A ventilação observada externamente constitui, portanto, a expressão integrada de uma rede e não simplesmente a resposta pulmonar ao lactato (AMANN et al., 2010; JUEL, 2008; AFSHAR et al., 2019).
Por essa razão, LT1 não deve ser interpretado como início do recrutamento de fibras II e VT1 não deve ser interpretado como momento em que “o CO₂ do ácido lático” estimula a ventilação. O primeiro representa uma alteração detectável no balanço sistêmico de aparecimento e desaparecimento de lactato; o segundo representa uma mudança nas relações entre trocas gasosas e ventilação produzida dentro de uma rede de controle que integra componentes metabólicos e neurais. Ambos frequentemente aparecem próximos porque intensidade, recrutamento, glicólise, lactato, H⁺, bicarbonato, CO₂, aferências musculares e comando motor mudam de maneira fortemente acoplada. Contudo, são marcadores diferentes de uma reorganização sistêmica comum, e sua eventual dissociação pode fornecer informação fisiológica em vez de simplesmente representar erro de medida (BEAVER; WASSERMAN; WHIPP, 1986; JAMNICK et al., 2020).
Finalmente, a consequência para a prescrição é que não existe uma zona capaz de monopolizar determinada adaptação. Exercício prolongado de menor intensidade proporciona enorme tempo acumulado de contração e sinalização em unidades de baixo limiar; intensidades maiores ampliam a perturbação energética por unidade de tempo e recrutam mais intensamente populações de maior limiar; treinamento intervalado intenso pode aumentar capacidade tampão e remodelar mecanismos de regulação do pH; e ambas as estratégias podem estimular biogênese mitocondrial, embora distribuam a dose de maneira diferente entre fibras e vias moleculares. O treinamento deve, portanto, ser prescrito não pela crença de que “Zona 2 produz mitocôndrias” ou “alta intensidade produz lactato”, mas pela identificação da população celular que se pretende recrutar, da magnitude da perturbação que se pretende impor, do tempo durante o qual ela será sustentada e da adaptação que se deseja acumular ao longo de repetidas sessões (BISHOP; GRANATA; EYNON, 2014; GRANATA et al., 2016; GRANATA; JAMNICK; BISHOP, 2018).
A meta-regressão de Mølmen, Almquist e Skattebo (2025), abrangendo milhares de participantes, ilustra esse princípio. Após ajuste para covariáveis, o conteúdo mitocondrial aumentou aproximadamente 23% com treinamento contínuo de baixa/moderada intensidade, 27% com treinamento de alta intensidade e 27% com sprint interval training, sem diferença estatisticamente significativa entre modalidades. Entretanto, quando a resposta foi expressa por hora de exercício, SIT foi aproximadamente 2,3 vezes mais eficiente que HIT e 3,9 vezes mais eficiente que treinamento contínuo, enquanto HIT foi aproximadamente 1,7 vez mais eficiente que o treinamento contínuo. Frequências semanais maiores também estiveram associadas a maiores incrementos mitocondriais. A conclusão fisiológica não é que baixa intensidade seja irrelevante, mas que intensidade e volume representam diferentes maneiras de acumular estímulo adaptativo.
Figura complementar 7 — Aumento do conteúdo mitocondrial por modalidade de treinamento (a) e eficiência relativa por hora de exercício (b), segundo os valores aproximados descritos no texto. Fonte: elaborada com base em Mølmen, Almquist e Skattebo (2025) e MacInnis e Gibala (2017).
A mesma lógica aplica-se à oxidação lipídica. Exercícios realizados no domínio moderado favorecem elevada contribuição relativa dos lipídios e podem aumentar FATmax e capacidade de oxidação de ácidos graxos, particularmente em indivíduos destreinados ou metabolicamente comprometidos. Contudo, FATmax não é sinônimo universal de Zona 2 e pode situar-se em posições distintas relativamente ao LT1 dependendo da população. Além disso, treinamento em intensidades superiores também pode aumentar a capacidade oxidativa lipídica. Assim, a predominância aguda de determinado substrato durante uma sessão não deve ser confundida com a magnitude da adaptação crônica produzida pelo treinamento.
Paralelamente à remodelação mitocondrial ocorre remodelação microvascular. O aumento da densidade capilar reduz a distância efetiva de difusão entre eritrócitos e fibras musculares, amplia a superfície de troca e favorece a extração periférica de O₂, o transporte de substratos e a remoção de metabólitos. A angiogênese induzida pelo exercício envolve sinais mecânicos e metabólicos, incluindo aumento do fluxo e do shear stress, óxido nítrico, VEGF, fatores relacionados à hipóxia, mediadores celulares e comunicação parácrina (ROSS et al., 2023).
A resposta angiogênica também não é exclusividade do treinamento de baixa intensidade. A meta-análise de Liu et al. (2022) mostrou que a intensidade e a duração do treinamento influenciam a capilarização e que os efeitos dependem do estado inicial do indivíduo. A síntese mais abrangente de Mølmen, Almquist e Skattebo (2025) encontrou aumento de capilares por fibra após treinamento contínuo, HIT e SIT, embora medidas de densidade capilar por área e as relações com hipertrofia das fibras introduzam diferenças entre protocolos. Os ganhos parecem ocorrer especialmente nas primeiras semanas e são menores em indivíduos já altamente treinados. Ross et al. (2023) chegam a caracterizar a angiogênese como resposta relativamente precoce a um novo estímulo, com progressão posterior mais difícil em musculatura previamente adaptada.
A integração entre capilares e mitocôndrias é fundamental. A expansão mitocondrial sem adequada oferta de O₂ criaria limitação de transporte; a expansão capilar sem capacidade oxidativa correspondente teria utilidade funcional limitada. O treinamento de endurance coordena, em graus diferentes, ambos os componentes. A melhora da aptidão aeróbica emerge, portanto, de uma cadeia que se estende da ventilação pulmonar e débito cardíaco à microcirculação, difusão e utilização mitocondrial do oxigênio.
É precisamente nessa interface entre oferta e utilização de O₂ que a espectroscopia no infravermelho próximo, NIRS, oferece informação complementar. Equipamentos portáteis como o Moxy Monitor estimam a saturação muscular de oxigênio (SmO₂), refletindo o equilíbrio local entre fornecimento e utilização de oxigênio na região interrogada. A SmO₂ deriva da relação entre cromóforos oxigenados e desoxigenados detectados opticamente; NIRS não distingue completamente hemoglobina de mioglobina. Portanto, SmO₂ não é uma medida direta de VO₂ muscular, fluxo sanguíneo ou atividade mitocondrial. É uma variável integrada, local e dependente simultaneamente de oferta e extração.
Durante exercício incremental, o aumento da intensidade geralmente promove maior extração de O₂ e redução progressiva da SmO₂. Alterações na inclinação dessa relação podem produzir pontos de quebra denominados muscle oxygenation thresholds (MOT). A questão metodológica central é compreender que o limiar NIRS é determinado essencialmente examinando SmO₂ em função da intensidade externa — velocidade ou potência — ou do tempo quando este representa diretamente a progressão da carga, procurando mudança estatisticamente ou visualmente identificável na inclinação da curva. Não se trata simplesmente de comparar SmO₂ de um músculo com outro.
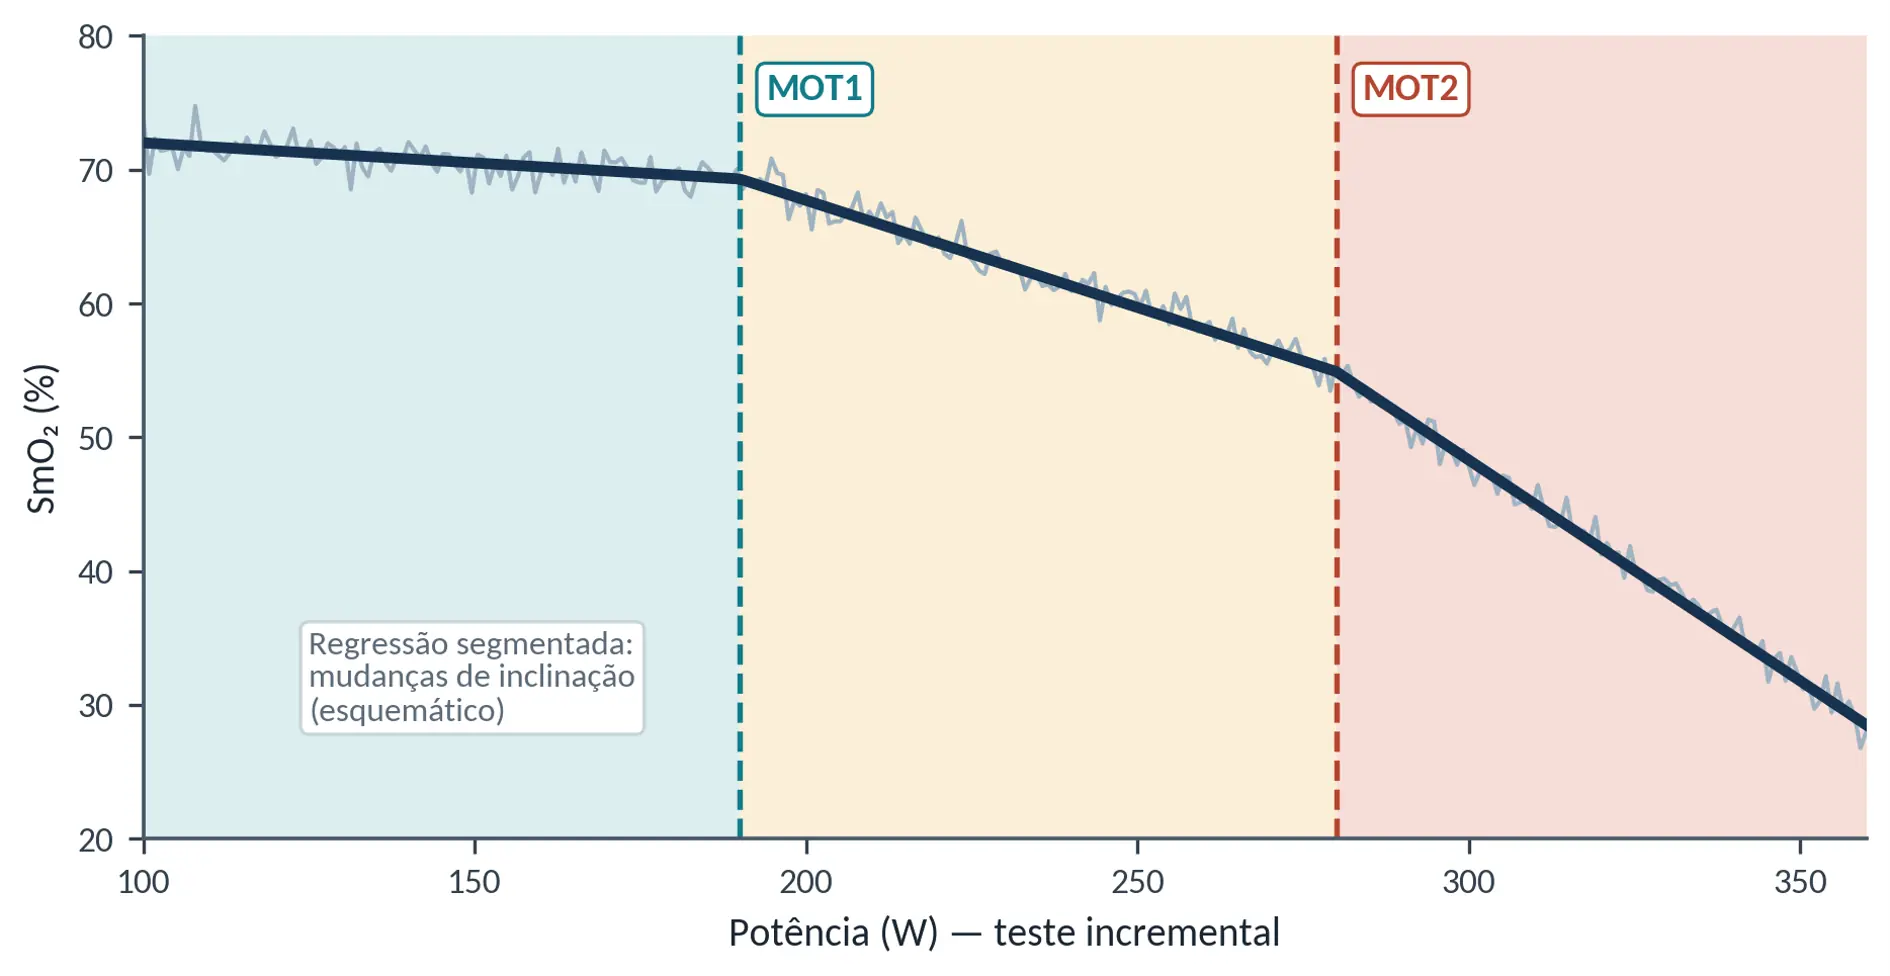
Figura complementar 8 — Comportamento esquemático da SmO₂ (NIRS) em teste incremental, com identificação de MOT1 e MOT2 por mudanças de inclinação da relação SmO₂–potência. Fonte: elaborada com base em Perrey e Ferrari (2018) e Grassi e Quaresima (2016).
A literatura reunida mostra heterogeneidade substancial nos algoritmos. Na revisão sistemática de 2023, 46% dos estudos utilizaram regressão linear dupla, 20% métodos de identificação visual e outros utilizaram métodos específicos, incluindo Dmax/mDmax. A concordância com métodos de referência foi mais consistente para o segundo limiar: a meta-análise encontrou ICC médio de aproximadamente 0,53 para MOT1 comparado a LT1/VT1, mas 0,80 para MOT2 comparado a LT2/VT2. Isso recomenda maior cautela na identificação de um primeiro limiar exclusivamente por NIRS.
A confiabilidade da própria curva de SmO₂ não significa necessariamente confiabilidade do ponto matemático extraído dela. Cayot et al. (2021), por exemplo, encontraram boa reprodutibilidade da StO₂ durante exercício, mas baixa reprodutibilidade teste-reteste dos limiares derivados por Dmax e mDmax. O Dmax apresentou correlação moderada com LT, enquanto mDmax não apresentou relação significativa; os autores, portanto, advertiram contra a utilização isolada desses algoritmos para estimar LT. Essa observação é metodologicamente importante para o uso do Moxy: o sinal fisiológico pode ser confiável, enquanto a transformação de uma curva contínua em um único “limiar” introduz incerteza adicional.
O mesmo cuidado deve ser aplicado aos limiares ventilatórios. Historicamente, a proximidade entre elevação da lactatemia e alterações ventilatórias levou à formulação do chamado “limiar anaeróbio”. Entretanto, os fenômenos não são equivalentes. Loat e Rhodes (1993) já destacavam que a relação entre limiar de lactato e limiar ventilatório não era conclusiva e apresentavam evidências de dissociação entre lactatemia e ventilação. Casos em que a ventilação se altera sem produção normal de lactato, bem como manipulações que deslocam uma variável sem deslocamento proporcional da outra, demonstram que coincidência temporal não implica identidade mecanística.
Em analisadores metabólicos completos, que medem simultaneamente O₂ e CO₂, o primeiro limiar ventilatório pode ser determinado pelo método V-slope, no qual VCO₂ é plotado contra VO₂. Enquanto ambos aumentam aproximadamente de maneira proporcional, a relação permanece relativamente linear; quando a produção de CO₂ aumenta desproporcionalmente em relação ao VO₂, surge mudança de inclinação interpretada como GET/gas exchange threshold. A determinação deve ser confirmada por critérios auxiliares: aumento de VE/VO₂ sem aumento concomitante de VE/VCO₂ e aumento de PETO₂ sem queda correspondente de PETCO₂.
O segundo limiar ventilatório, frequentemente denominado VT2 ou ponto de compensação respiratória (RCP), representa uma resposta ventilatória distinta. Nesse estágio, a hiperventilação compensatória torna-se suficientemente pronunciada para que VE/VCO₂ também aumente, enquanto PETCO₂ diminui. Portanto, o RCP não deve ser identificado simplesmente pelo fato de a frequência respiratória aumentar: Rf aumenta progressivamente ao longo do exercício e sua aceleração pode oferecer informação auxiliar, mas não constitui, isoladamente, o critério canônico de RCP.
Essa distinção é decisiva quando se utiliza o VO₂ Master, porque o equipamento mede O₂ e variáveis ventilatórias, mas não CO₂. A ausência de VCO₂ impede aplicar diretamente o V-slope, e também impede calcular VE/VCO₂ ou PETCO₂. Isso não invalida a identificação de transições fisiológicas, mas altera o grau de inferência permitido. O primeiro limiar pode ser estimado a partir da resposta de VE/VO₂ — denominada EqO₂ no sistema — procurando o nadir seguido de elevação sustentada, simultaneamente à inspeção da ventilação, VO₂, frequência respiratória e, quando disponível, comportamento do O₂ expirado. Já a identificação do segundo limiar requer maior prudência, porque os critérios clássicos dependentes de CO₂ não existem no aparelho. Mudanças acentuadas na inclinação de VE, Rf e outros parâmetros ventilatórios podem indicar uma segunda transição, mas devem ser denominadas estimativas ventilatórias do segundo limiar, preferencialmente corroboradas por lactato, NIRS, percepção de esforço e comportamento da intensidade externa, em vez de serem apresentadas como RCP diretamente medido.
Essa abordagem multiparamétrica é fisiologicamente mais defensável porque nenhum limiar é um “interruptor” metabólico. O exercício transita entre domínios nos quais múltiplos sistemas modificam progressivamente sua dinâmica. Abaixo do primeiro limiar, no domínio moderado, VO₂ e metabolismo oxidativo podem atingir estado estável com perturbação relativamente pequena. Entre o primeiro limiar e a fronteira superior do domínio pesado, o organismo ainda pode atingir estado estável, porém com maior lactatemia, ventilação e recrutamento muscular. Acima da potência crítica/velocidade crítica, no domínio severo, não existe verdadeiro estado estável metabólico; ocorre desenvolvimento progressivo do componente lento do VO₂, perturbação da homeostase e aproximação do VO₂máx até a intolerância ao exercício. Jones et al. (2011) destacam que o componente lento pode tornar-se muito grande no domínio severo e está intimamente relacionado à perda progressiva da homeostase muscular.
10. Angiogênese, VEGF e interface microvascular
O lactato e a mitocôndria: o modelo do mitochondrial lactate oxidation complex
A relação entre lactato e mitocôndria introduz uma questão mais controversa. Evidências obtidas por Dubouchaud et al. (2000) identificaram MCT1 em frações enriquecidas em mitocôndrias, e Hashimoto, Hussien e Brooks (2006), utilizando células musculares L6, descreveram colocalização de MCT1, CD147 e LDH associada à membrana mitocondrial interna. Esses resultados contribuíram para a formulação do mitochondrial lactate oxidation complex (mLOC), modelo no qual proteínas envolvidas no transporte e oxidação do lactato estariam espacialmente organizadas junto à maquinaria respiratória mitocondrial (HASHIMOTO; HUSSIEN; BROOKS, 2006).
Na representação retomada por Bartoloni et al. (2024), o lactato alcançaria o compartimento mitocondrial e seria convertido a piruvato por uma LDH associada à mitocôndria, enquanto MCT1 participaria da transferência do monocarboxilato através da membrana mitocondrial interna. O complexo proposto inclui associação funcional entre MCT1, LDH e componentes da cadeia respiratória, incluindo a citocromo-c oxidase (COX). Entretanto, é fundamental compreender corretamente o papel da COX: ela não constitui um transportador de lactato ou piruvato. Como Complexo IV da cadeia transportadora de elétrons, sua função é receber elétrons do citocromo c e promover a redução terminal do O₂ a H₂O, contribuindo para a manutenção da força próton-motriz necessária à fosforilação oxidativa. Sua inclusão no mLOC representa, portanto, uma proposta de proximidade e acoplamento funcional entre a oxidação do substrato derivado do lactato e a respiração mitocondrial, e não transporte físico de lactato pela COX (BARTOLONI et al., 2024; HASHIMOTO; HUSSIEN; BROOKS, 2006).
Essa distinção é fundamental para evitar uma interpretação mecanisticamente incorreta. O carbono proveniente do lactato somente pode entrar no ciclo dos ácidos tricarboxílicos depois de convertido a piruvato e, subsequentemente, a acetil-CoA pela pyruvate dehydrogenase (PDH). A controvérsia reside em determinar exatamente onde ocorre a conversão lactato-piruvato e qual sistema transporta o substrato através da membrana mitocondrial interna.
O modelo de uma LDH intramitocondrial encontrou oposição experimental importante. Rasmussen, van Hall e Rasmussen (2002) estudaram mitocôndrias isoladas de músculo vasto lateral humano e murino e não detectaram atividade significativa de LDH na fração mitocondrial. Além disso, lactato não estimulou a respiração nessas preparações. Os autores concluíram que a LDH se comportava como enzima citosólica e que suas observações não sustentavam a existência de oxidação intramitocondrial direta do lactato (RASMUSSEN; VAN HALL; RASMUSSEN, 2002).
Entretanto, o problema experimental é complexo porque o isolamento de mitocôndrias rompe parte da arquitetura celular e pode eliminar interações proteicas ou compartimentos necessários à transferência de substratos. Jacobs et al. (2013) abordaram essa limitação utilizando fibras musculares humanas permeabilizadas, preservando melhor o retículo mitocondrial e suas interações subcelulares. Nessas condições, lactato na presença de NAD⁺ estimulou a respiração mesmo sem adição de LDH exógena. Contudo, os próprios autores concluíram que os resultados não demonstravam oxidação direta do lactato dentro da matriz mitocondrial. O modelo compatível com seus experimentos previa conversão do lactato a piruvato no espaço intermembrana, seguida da entrada do piruvato na matriz, onde este poderia alimentar PDH e o ciclo dos ácidos tricarboxílicos (JACOBS et al., 2013).
Essa observação permite uma formulação mais rigorosa do fenômeno. Há evidência sólida de que o carbono transportado na forma de lactato pode alimentar a oxidação mitocondrial. Há também evidências de associação de MCT1 e LDH com estruturas ou frações mitocondriais e resultados funcionais compatíveis com conversão de lactato a piruvato em estreita proximidade com a mitocôndria. O que permanece menos estabelecido é a topologia molecular exata desse processo, particularmente a existência, orientação e relevância quantitativa de um complexo MCT1-LDH capaz de transportar lactato ou piruvato através da membrana mitocondrial interna em condições fisiológicas.
Consequentemente, deve-se evitar a afirmação categórica de que “MCT1 leva lactato para a matriz, onde ele é oxidado”. A formulação mais consistente com o conjunto das evidências é que o lactato pode ser direcionado à oxidação mitocondrial após sua conversão a piruvato em estreita associação espacial com a mitocôndria; o piruvato alcança então a matriz, onde PDH o converte a acetil-CoA. O mitochondrial pyruvate carrier (MPC) constitui uma via estabelecida para a entrada de piruvato na matriz. Modelos que atribuem ao MCT1 mitocondrial uma função adicional nesse processo são biologicamente plausíveis e sustentados por determinados conjuntos experimentais, mas ainda não devem ser tratados como substitutos definitivamente demonstrados do sistema clássico de transporte de piruvato.
Integração entre capilares, lactato e mitocôndrias no fenótipo oxidativo
Quando essas adaptações são consideradas em conjunto, emerge uma concepção mais integrada do músculo treinado. A angiogênese aumenta a interface entre circulação e fibra muscular; a expansão do MCT1 aumenta a capacidade de transferência de monocarboxilatos; a maior densidade e função mitocondrial ampliam a capacidade de oxidar o carbono proveniente de carboidratos, lipídios e lactato. O sistema passa a operar como uma rede de transferência de matéria, elétrons e energia, e não como um conjunto de vias independentes.
Nesse contexto, o lactato ocupa posição particularmente interessante. Uma fibra glicolítica pode converter rapidamente glicogênio ou glicose em piruvato e lactato, regenerando NAD⁺ e sustentando elevado fluxo glicolítico. O lactato pode então atravessar o sarcolema via MCTs, ser redistribuído para fibras mais oxidativas e ser convertido novamente a piruvato. O piruvato destinado à matriz é convertido pela PDH a acetil-CoA, que alimenta o ciclo dos ácidos tricarboxílicos. Os equivalentes redutores gerados por esse metabolismo fornecem elétrons à cadeia respiratória, cujo fluxo culmina na COX e na redução do oxigênio molecular. Portanto, lactato e metabolismo oxidativo não representam extremos metabólicos opostos; são componentes interligados de uma mesma rede bioenergética.
Essa integração também esclarece por que o treinamento de endurance modifica simultaneamente capilarização, transporte de lactato e capacidade mitocondrial. O aumento da densidade capilar melhora a oferta de O₂ e a transferência de substratos; a expressão e localização dos MCTs favorecem a redistribuição do lactato entre compartimentos; e a expansão da maquinaria mitocondrial cria um potente sink oxidativo para o piruvato derivado do lactato. O gradiente metabólico produzido pela utilização contínua desse carbono contribui, por sua vez, para sustentar sua transferência das regiões produtoras para as consumidoras.
Assim, a organização espacial do músculo deve ser considerada parte de sua organização metabólica. Fibras predominantemente glicolíticas e oxidativas, capilares, espaço intersticial e retículo mitocondrial formam uma unidade funcional. A proximidade física entre uma fibra produtora de lactato e uma fibra capaz de oxidá-lo reduz a distância necessária para a transferência de carbono e torna biologicamente plausível a ocorrência de lactate shuttling intramuscular em grande escala. A heterogeneidade das fibras musculares deixa, portanto, de representar apenas uma divisão entre fibras “aeróbicas” e “anaeróbicas” e passa a ser compreendida como uma rede cooperativa de produção, transporte e utilização de substratos.
Do ponto de vista do treinamento, esse modelo permite compreender por que grandes volumes de exercício contínuo submáximo podem produzir um fenótipo extremamente eficiente. O objetivo adaptativo não consiste simplesmente em reduzir a glicólise ou impedir a formação de lactato, mas em aumentar a capacidade de sustentar elevado fluxo energético com menor perturbação homeostática para uma determinada potência. Isso envolve maior capilarização, maior conteúdo mitocondrial, maior capacidade respiratória, maior transporte e oxidação de lactato e melhor coordenação entre produção e utilização de substratos.
A adaptação mitocondrial e a angiogênese, entretanto, não devem ser tratadas como respostas idênticas à intensidade. Sinais associados ao Ca²⁺, turnover de ATP, AMPK, ROS e outras redes podem tornar sessões intensas extremamente potentes para determinados componentes do remodelamento mitocondrial. Por outro lado, a exposição prolongada a fluxo sanguíneo elevado, shear stress e sinalização angiogênica ajuda a explicar a eficácia de grandes volumes de treinamento contínuo moderado para a expansão da rede capilar. Essa diferença oferece uma justificativa biológica para programas de endurance que combinam grande quantidade de treinamento de baixa a moderada intensidade com uma proporção menor de estímulos de alta intensidade, sem implicar que qualquer adaptação seja exclusiva de determinada zona.
O músculo esquelético treinado emerge, assim, como um sistema no qual sinalização e metabolismo são inseparáveis. Ca²⁺ informa a atividade contrátil; AMP e ADP refletem a pressão energética; NAD⁺/NADH e ROS informam alterações metabólicas e redox; shear stress e fatores derivados do músculo e endotélio regulam remodelamento vascular; MCT1 e MCT4 redistribuem monocarboxilatos entre compartimentos; e a rede mitocondrial constitui o principal destino oxidativo do carbono disponível. PGC-1α e outros reguladores transcricionais integram parte importante desses sinais, enquanto a repetição sistemática das sessões converte eventos moleculares transitórios em alterações estruturais duradouras.
A consequência conceitual é profunda: o lactato não deve ser compreendido como marcador de falência do metabolismo oxidativo, assim como ROS não devem ser entendidas exclusivamente como agentes lesivos e a mitocôndria não deve ser considerada apenas uma organela produtora de ATP. Lactato é simultaneamente substrato e sinal; ROS podem atuar como segundos mensageiros; mitocôndrias participam de redes de sinalização e remodelamento; e a microcirculação adapta sua arquitetura à demanda metabólica crônica. O treinamento de endurance explora precisamente essa plasticidade integrada, transformando sucessivas perturbações agudas da homeostase em um músculo mais vascularizado, metabolicamente flexível e dotado de maior capacidade para transportar, redistribuir e oxidar combustíveis.
A adaptação periférica do endurance não termina na mitocôndria. A elevação da capacidade oxidativa precisa ser acompanhada por transporte convectivo e difusivo de O₂ adequado. O remodelamento capilar modifica área de troca, distância de difusão e distribuição do fluxo, enquanto sinais relacionados a hipóxia relativa, tensão de cisalhamento, metabólitos e PGC-1α/VEGF participam da angiogênese. A coordenação entre capilarização e capacidade mitocondrial é central para sustentar fluxos oxidativos elevados durante exercício prolongado.
11. Intensidade, duração e recrutamento: por que a dose importa
Isso se torna particularmente importante ao relacionar LT1 ao recrutamento de fibras tipo II. Abaixo do primeiro limiar existe predominância de unidades motoras de menor limiar em muitas tarefas de endurance, mas isso não significa recrutamento exclusivo de fibras tipo I. O recrutamento constitui um continuum dependente de força por contração, cadência, modalidade, arquitetura muscular, estado de treinamento e fadiga. Unidades contendo fibras IIa podem participar do exercício abaixo de LT1, e sua participação pode aumentar progressivamente muito antes que seja observada elevação sustentada da lactatemia. Consequentemente, LT1 não pode ser definido como o instante em que “começam a ser recrutadas fibras II” (HODSON-TOLE; WAKELING, 2009; SCHIAFFINO; REGGIANI, 2011).
A participação de fibras IIa abaixo de LT1 tampouco cria um paradoxo metabólico. Fibras II não são unidades anaeróbias. Fibras IIa possuem capacidade oxidativa considerável e podem simultaneamente produzir e oxidar lactato. Além disso, lactato exportado por uma fibra pode ser captado por fibras oxidativas adjacentes através do cell-to-cell lactate shuttle, alcançar o coração ou outros músculos pela circulação ou fornecer carbono para gliconeogênese hepática e renal. Assim, produção local de lactato pode aumentar sem produzir elevação mensurável da concentração sanguínea quando a capacidade de utilização acompanha o aparecimento (BROOKS, 2009; SCHIAFFINO; REGGIANI, 2011).
As fibras tipo I constituem, portanto, um importante sink oxidativo para lactato, mas não o único. O modelo didático mais correto não é “fibra II produz → fibra I remove”, mas uma rede de produção, transporte e utilização na qual diferentes células podem desempenhar simultaneamente funções produtoras e consumidoras. O lactato constitui um intermediário de distribuição de carbono e energia entre compartimentos. Dados recentes reforçam a conexão entre transporte de lactato por MCT1, fluxo pelo ciclo dos ácidos tricarboxílicos e regulação do fenótipo mitocondrial, demonstrando que o lactate shuttle possui implicações que ultrapassam a simples remoção de um metabólito (BROOKS, 2018; CHEN et al., 2024).
Nesse contexto, uma interpretação mais precisa de LT1 é considerá-lo uma região na qual a combinação entre maior demanda energética, ampliação progressiva do recrutamento, aceleração do fluxo glicolítico e capacidade sistêmica de utilização de lactato começa a produzir alteração detectável e sustentada da lactatemia. Antes dessa transição pode haver produção substancial de lactato, mas aparecimento e desaparecimento permanecem suficientemente equilibrados para impedir acúmulo sanguíneo progressivo. LT1 é, portanto, uma propriedade emergente de um sistema distribuído, e não um interruptor que indica a entrada de um novo tipo de fibra ou o início de um metabolismo até então ausente (BROOKS, 2018; JAMNICK et al., 2020).
Intensidade, recrutamento e biogênese mitocondrial: por que volume e intensidade não produzem adaptações idênticas
A adaptação mitocondrial também deve ser retirada de uma interpretação binária das zonas. Tanto exercício contínuo de intensidade baixa/moderada quanto treinamento intervalado intenso podem aumentar conteúdo e função mitocondrial. Entretanto, intensidade e volume modificam de maneira diferente a magnitude, a duração e a distribuição celular dos sinais. Revisões da literatura sugerem que o volume apresenta associação particularmente importante com aumentos do conteúdo mitocondrial, enquanto a intensidade pode exercer influência acentuada sobre determinadas medidas de função respiratória mitocondrial. Essa distinção representa uma tendência experimental e não uma regra segundo a qual “treino leve aumenta quantidade e HIIT aumenta função” (BISHOP; GRANATA; EYNON, 2014).
Durante exercício prolongado, milhares de ciclos de contração produzem repetidos transientes de Ca²⁺. O Ca²⁺ não constitui apenas o sinal que permite a interação actina–miosina; atua também como mensageiro intracelular capaz de influenciar CaMK, calcineurina e outras proteínas envolvidas no fenótipo oxidativo. Simultaneamente, a utilização sustentada de ATP altera o estado energético e pode ativar AMPK, enquanto espécies reativas e alterações redox modulam outras redes de sinalização. Portanto, não é correto estabelecer a dicotomia “treinamento leve = Ca²⁺” e “treinamento intenso = AMPK”. Ambos os sinais existem em diferentes modalidades; o que muda é sua magnitude, frequência, duração e localização nas fibras recrutadas (HOOD, 2001; GRANATA; JAMNICK; BISHOP, 2018; THIRKETTLE-WATTS et al., 2020). A sinalização redox também participa de adaptações como biogênese mitocondrial e angiogênese.
O treinamento de alta intensidade acrescenta uma característica decisiva: maior turnover de ATP por unidade de tempo, maior perturbação de PCr/Pi e ADP/AMP, maior cycling de Ca²⁺ e, sobretudo, recrutamento mais amplo de unidades motoras de maior limiar. Assim, fibras IIa — e, dependendo da intensidade, tarefa e fadiga, populações de limiar ainda maior — recebem uma dose contrátil e metabólica que pode ser muito menor durante exercício leve. Esse princípio explica por que intensidade pode modificar qualitativamente a distribuição do estímulo mitocondrial entre fibras e por que aumentar intensidade constitui uma maneira eficiente de promover remodelamento oxidativo em populações musculares de maior limiar (GRANATA et al., 2016; GRANATA; JAMNICK; BISHOP, 2018). Em humanos, a intensidade do treinamento modulou PGC-1α, p53 e respiração mitocondrial sem produzir a mesma dependência para marcadores de conteúdo mitocondrial.
Entretanto, intensidade não é a única maneira de recrutar progressivamente unidades adicionais. Durante exercício prolongado, a fadiga das unidades inicialmente ativas pode exigir recrutamento compensatório de unidades de maior limiar para manter a potência ou velocidade externa. Isso explica por que intensidade e duração devem ser consideradas conjuntamente. Uma sessão relativamente leve, mas muito longa, não constitui simplesmente uma versão ampliada dos primeiros minutos de exercício: a distribuição do recrutamento e a perturbação energética podem mudar ao longo do tempo. A dose adaptativa deve, portanto, ser concebida como função da intensidade relativa, duração, recrutamento, estado energético, disponibilidade de substratos, histórico de treinamento e recuperação (GRANATA; JAMNICK; BISHOP, 2018).
A PGC-1α ocupa posição central nessa integração, mas tampouco deve ser concebida como um simples interruptor molecular. Exercício pode modificar rapidamente atividade, localização subcelular e posteriormente expressão de PGC-1α, coordenando programas transcricionais relacionados à biogênese mitocondrial. AMPK, p38 MAPK, Ca²⁺-dependência e sinalização redox convergem direta ou indiretamente sobre essa rede. Importante, evidências demonstram que eventos iniciais de biogênese mitocondrial podem preceder o aumento mensurável da quantidade total de proteína PGC-1α, reforçando a importância de sua ativação e localização, e não apenas de sua expressão absoluta (WRIGHT et al., 2007; GRANATA; JAMNICK; BISHOP, 2018).
Lactato como combustível e sinal: existe uma ligação com a biogênese mitocondrial?
O lactato acrescenta uma dimensão particularmente relevante a essa rede adaptativa. Além de combustível e intermediário de transferência de carbono, existem evidências experimentais de que ele participa de sinalização celular. Estudos em modelos musculares mostraram que exposição ao lactato pode modificar estado redox e expressão de genes relacionados ao metabolismo oxidativo, levando à proposição do lactato como molécula sinalizadora. Estudos mais recentes também demonstram relações entre transporte de lactato por MCT1, NAD⁺/SIRT1, PGC-1α e fenótipo mitocondrial. Assim, o lactate shuttle deve ser entendido não apenas como mecanismo de distribuição energética, mas potencialmente como componente da comunicação metabólica que participa do remodelamento celular (HASHIMOTO et al., 2007; BROOKS, 2018; CHEN et al., 2024).
Isso não autoriza, entretanto, concluir que lactato seja o sinal dominante ou necessário para a biogênese mitocondrial induzida pelo exercício. A adaptação emerge da integração entre Ca²⁺, AMPK, p38 MAPK, estado redox, NAD⁺/sirtuínas, disponibilidade de substratos, tensão contrátil e outros sinais. Lactato deve ser inserido nessa rede, e não substituir essa rede. O mesmo cuidado é ainda mais necessário para H⁺: alterações do pH modificam numerosas proteínas e reações celulares e podem participar direta ou indiretamente da sinalização, mas a evidência para uma cadeia simples “acidose → PGC-1α → biogênese mitocondrial” é muito menos estabelecida do que aquela existente para Ca²⁺, estado energético e sinalização redox (GRANATA; JAMNICK; BISHOP, 2018; THIRKETTLE-WATTS et al., 2020).
A acidose deve ser compreendida principalmente como parte da perturbação homeostática produzida por elevado fluxo energético. Em níveis pronunciados, particularmente nas fibras rápidas, H⁺ e H₂PO₄⁻ podem contribuir para redução da atividade das pontes cruzadas, da sensibilidade ao Ca²⁺ e da potência contrátil; paralelamente, alterações extracelulares de H⁺, lactato e outros metabólitos participam da estimulação de aferentes musculares III/IV, influenciando respostas cardiorrespiratórias e perceptuais. Dessa maneira, a perturbação ácido-base conecta metabolismo, função contrátil e comunicação músculo–SNC, mas não precisa ser elevada ao status de principal sinalizador da biogênese mitocondrial para exercer papel fisiológico importante (ALLEN; LAMB; WESTERBLAD, 2008). Evidências atuais sustentam contribuição da acidose severa para fadiga de força/potência sem retornar ao antigo modelo monocausal do “ácido lático”.
Uma síntese biológica para interpretar zonas e limiares
A integração desses mecanismos permite reinterpretar a progressão da intensidade. Quando a intensidade aumenta, aumenta a taxa de hidrólise e ressíntese de ATP, ampliam-se o recrutamento de unidades motoras e a perturbação de PCr, Pi, ADP/AMP, Ca²⁺, estado redox e fluxos glicolítico e oxidativo. A formação e redistribuição de lactato aumentam; a homeostase de H⁺ passa a depender cada vez mais de tampões, MCTs, NHE e sistemas bicarbonato-dependentes; a restauração dos gradientes de Na⁺, K⁺ e Ca²⁺ exige ATP adicional; aferências III/IV transmitem ao SNC informações sobre o estado mecânico e metabólico muscular; comando central aumenta em paralelo à necessidade de ativação motora; e quimiorreflexos modulam a ventilação conforme se modifica o ambiente gasométrico e ácido-base. A ventilação observada externamente constitui, portanto, a expressão integrada de uma rede e não simplesmente a resposta pulmonar ao lactato (AMANN et al., 2010; JUEL, 2008; AFSHAR et al., 2019).
Por essa razão, LT1 não deve ser interpretado como início do recrutamento de fibras II e VT1 não deve ser interpretado como momento em que “o CO₂ do ácido lático” estimula a ventilação. O primeiro representa uma alteração detectável no balanço sistêmico de aparecimento e desaparecimento de lactato; o segundo representa uma mudança nas relações entre trocas gasosas e ventilação produzida dentro de uma rede de controle que integra componentes metabólicos e neurais. Ambos frequentemente aparecem próximos porque intensidade, recrutamento, glicólise, lactato, H⁺, bicarbonato, CO₂, aferências musculares e comando motor mudam de maneira fortemente acoplada. Contudo, são marcadores diferentes de uma reorganização sistêmica comum, e sua eventual dissociação pode fornecer informação fisiológica em vez de simplesmente representar erro de medida (BEAVER; WASSERMAN; WHIPP, 1986; JAMNICK et al., 2020).
Finalmente, a consequência para a prescrição é que não existe uma zona capaz de monopolizar determinada adaptação. Exercício prolongado de menor intensidade proporciona enorme tempo acumulado de contração e sinalização em unidades de baixo limiar; intensidades maiores ampliam a perturbação energética por unidade de tempo e recrutam mais intensamente populações de maior limiar; treinamento intervalado intenso pode aumentar capacidade tampão e remodelar mecanismos de regulação do pH; e ambas as estratégias podem estimular biogênese mitocondrial, embora distribuam a dose de maneira diferente entre fibras e vias moleculares. O treinamento deve, portanto, ser prescrito não pela crença de que “Zona 2 produz mitocôndrias” ou “alta intensidade produz lactato”, mas pela identificação da população celular que se pretende recrutar, da magnitude da perturbação que se pretende impor, do tempo durante o qual ela será sustentada e da adaptação que se deseja acumular ao longo de repetidas sessões (BISHOP; GRANATA; EYNON, 2014; GRANATA et al., 2016; GRANATA; JAMNICK; BISHOP, 2018).
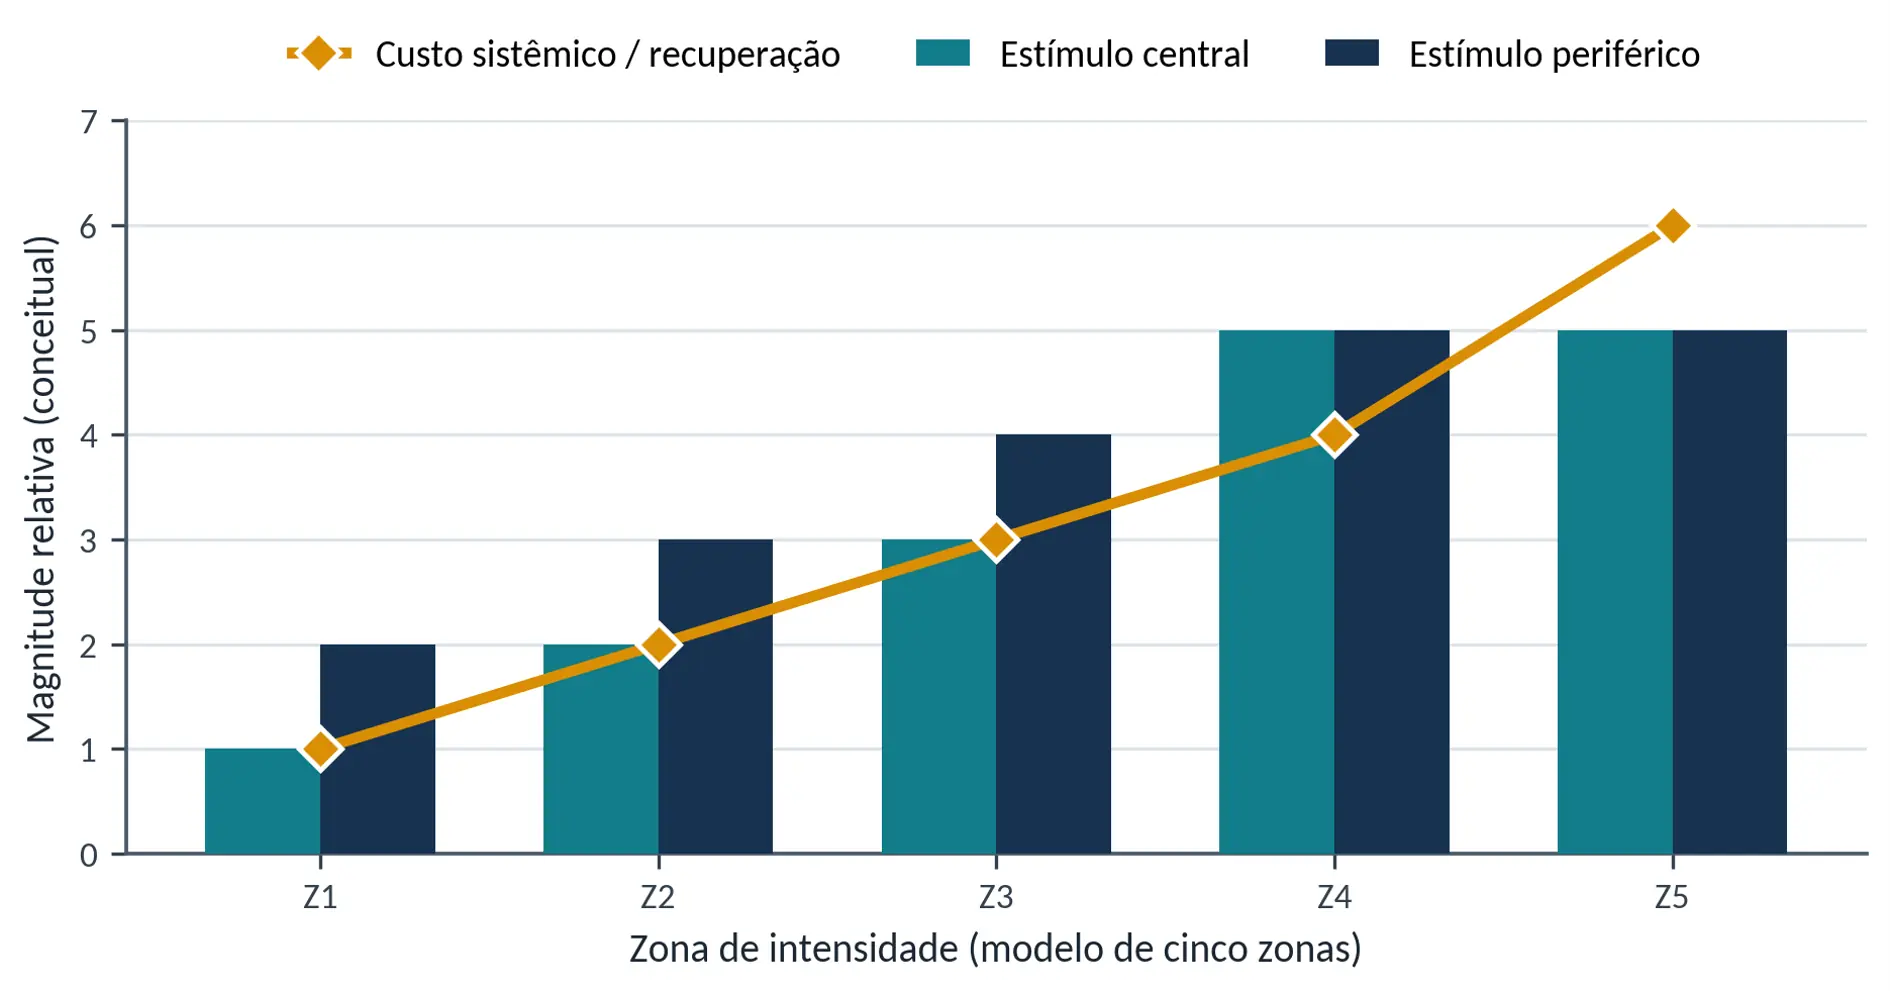
Figura 4 — Relação conceitual entre intensidade, magnitude do sinal central/periférico e custo sistêmico de recuperação. Não representa escala quantitativa universal.
PARTE IV — DISTRIBUIÇÃO DA INTENSIDADE, MONITORAMENTO E DURABILIDADE
12. Baixa intensidade: infraestrutura oxidativa, volume e repetibilidade
No modelo de três zonas, a Zona 1 situa-se abaixo do primeiro limiar de lactato ou do primeiro limiar ventilatório (LT1/VT1); a Zona 2 ocupa a faixa entre o primeiro e o segundo limiar; e a Zona 3 encontra-se acima do segundo limiar (LT2/VT2). A utilidade desse arranjo está em ancorar a prescrição em transições fisiológicas amplas, em vez de atribuir significado mecanístico rígido a numerosas subdivisões operacionais. Sistemas de cinco ou mais zonas podem ser pedagogicamente úteis, mas suas fronteiras adicionais não necessariamente correspondem a descontinuidades fisiológicas independentes.
A literatura observacional de atletas de endurance mostra que a maior fração do treinamento tende a ocorrer em baixa intensidade. Em esquiadores de endurance, Seiler e Kjerland observaram aproximadamente 75% das sessões em Zona 1, com menor participação da zona intermediária e uma fração relevante de trabalho de alta intensidade. Revisões posteriores confirmam predomínio de distribuições piramidais e, em determinados contextos, polarizadas, com grande volume abaixo de VT1.
Carga externa, carga interna e percepção
A interpretação fisiológica do treinamento pode ser organizada em três domínios complementares. A carga externa descreve o trabalho efetivamente produzido — potência no ciclismo ou remo, velocidade e ritmo na corrida. A carga interna corresponde ao custo orgânico necessário para gerar esse trabalho e pode ser representada por frequência cardíaca, lactato sanguíneo, consumo de oxigênio e outras respostas. O terceiro domínio é perceptivo: a integração central das aferências fisiológicas e do comando motor resulta em uma sensação de esforço que pode ser quantificada pela percepção subjetiva de esforço (RPE).
Estabilidade sub-limiar e a importância da duração
Em atletas de endurance muito treinados, uma intensidade claramente inferior ao primeiro limiar pode produzir respostas notavelmente estáveis durante períodos prolongados. No conjunto de orientistas de elite descrito no material-base, sessões de 60 e 120 minutos realizadas na mesma intensidade sub-LT1 não apresentaram diferenças relevantes no padrão fisiológico ou perceptivo: lactato e frequência cardíaca permaneceram estáveis e o esforço percebido pouco se modificou. O achado é importante porque demonstra que duração, isoladamente, não determina deterioração; a resposta depende da interação entre intensidade relativa, estado de treinamento e duração.
Durabilidade: resistência à deterioração fisiológica
Testes tradicionais de V̇O₂máx, limiares e economia são habitualmente realizados em condição descansada. Eles descrevem com precisão atributos importantes do sistema aeróbico, mas não informam integralmente quanto esses atributos resistem à passagem do tempo. A durabilidade amplia o fenótipo de endurance ao incorporar a magnitude e o momento de início da deterioração fisiológica durante esforço prolongado. Em termos aplicados, um atleta mais durável mantém determinada potência ou velocidade com menor elevação da frequência cardíaca, ventilação e RPE e com menor deterioração da economia ou de marcadores de desempenho.
Durabilidade de baixa intensidade e repetibilidade de alta intensidade
Duas propriedades complementares podem ser distinguidas. A durabilidade de baixa intensidade corresponde à capacidade de sustentar trabalho sub-limiar por longo período sem aumento substancial do custo interno ou perceptivo. A repetibilidade de alta intensidade descreve a capacidade de reproduzir esforços acima do segundo limiar, da potência crítica ou de outra referência de alta intensidade sem deterioração progressiva da potência, do ritmo ou da capacidade de recuperação. Conceitualmente, uma elevada durabilidade de base preserva recursos fisiológicos e pode favorecer a repetibilidade dos esforços decisivos realizados tardiamente em provas de endurance.
Deriva cardiovascular como manifestação de perda de durabilidade
A deriva cardiovascular caracteriza-se, em termos clássicos, pela elevação progressiva da frequência cardíaca acompanhada de redução do volume sistólico durante exercício prolongado de carga constante. Temperatura corporal, hidratação, volume plasmático, controle autonômico e duração do exercício modulam o fenômeno. Por isso, a deriva não deve ser interpretada como marcador puro de fadiga muscular; ela é uma resposta integrada e sensível ao ambiente e ao estado fisiológico.
Um exemplo longitudinal apresentado no material-base ilustra o conceito. Em dezembro de 2018, 205 W sustentados durante 3,5 h foram acompanhados por frequência cardíaca relativamente estável por aproximadamente 90 min, seguida de deriva progressiva. Cerca de seis meses depois, na mesma potência e duração e sob condições ambientais comparáveis, o início da deriva ocorreu mais tarde e sua magnitude foi menor. A interpretação fisiológica plausível é uma melhora da durabilidade de baixa intensidade.
Reserva de frequência cardíaca e necessidade de individualização
A reserva de frequência cardíaca (FCres) é calculada como FCmáx − FCrep. Sua utilidade reside em incorporar simultaneamente os extremos individualizados da resposta cronotrópica. No exemplo apresentado, uma atleta com FCrep de 37 bpm e FCmáx de 187 bpm possui FCres de 150 bpm. Em outro exemplo, FCrep de 36 bpm e FCmáx de 165 bpm produzem FCres de 129 bpm. A mesma frequência cardíaca absoluta pode, portanto, representar mobilizações cardiovasculares relativas muito diferentes.
Essa lógica também explica por que fórmulas populacionais de FCmáx ou prescrições baseadas exclusivamente em idade têm precisão limitada para indivíduos. Quando a frequência cardíaca é usada para controlar intensidade, valores medidos de FCmáx, FCrep e limiares são preferíveis a estimativas genéricas.
Figura complementar 9 — A mesma frequência cardíaca absoluta representa mobilizações relativas distintas conforme a reserva de frequência cardíaca (exemplos numéricos do texto). Fonte: elaborada com base em Karvonen e Vuorimaa (1988) e Mann, Lamberts e Lambert (2013).
Desacoplamento entre frequência cardíaca e potência
A durabilidade pode ser operacionalizada pela estabilidade da relação entre carga interna e externa. Em ciclismo de potência constante, uma elevação progressiva da frequência cardíaca sem aumento da potência representa desacoplamento. No material-base, a relação entre percentual da reserva de frequência cardíaca e percentual da potência máxima de seis minutos foi utilizada como índice normalizado. O valor absoluto inicial desse quociente pode variar entre atletas; por isso, a comparação exige uma linha de base individual, estabelecida após o aquecimento.
A duração altera de modo decisivo a interpretação. Em um exemplo individual, 195 W por 3 h produziram pouca deriva. A 220 W por 2 h, a relação interna/externa também permaneceu aproximadamente estável. Entretanto, ao prolongar 220 W para 4 h, surgiu dissociação após cerca de 2 h e o índice aumentou aproximadamente 20% na última hora. A mesma intensidade externa, portanto, pode pertencer a uma zona fisiologicamente sustentável em uma duração e tornar-se progressivamente onerosa em outra.
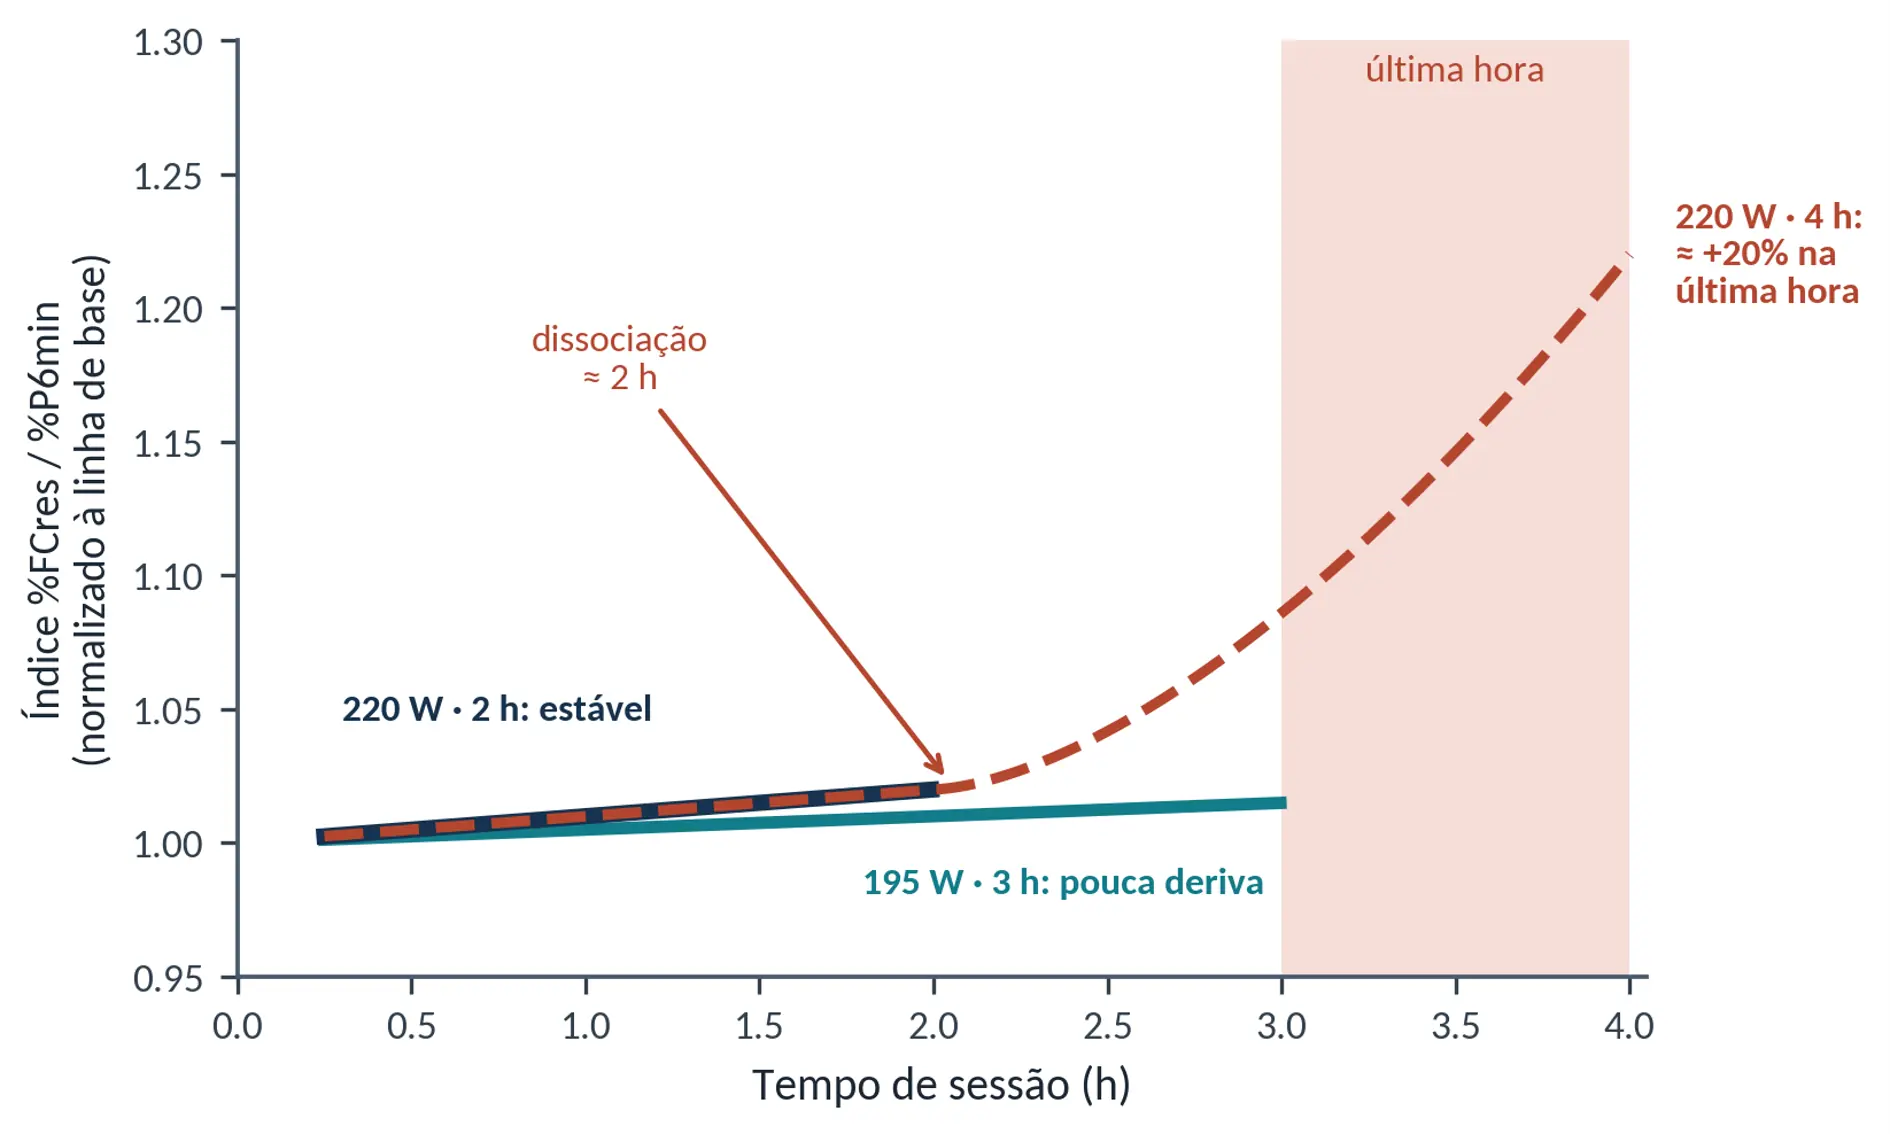
Figura complementar 10 — Reconstrução esquemática do índice de desacoplamento (%FCres/%P6min) em função da potência e da duração, conforme os exemplos individuais descritos no texto. Fonte: elaborada com base em Maunder et al. (2021) e Spragg, Leo e Swart (2023).
Dessa forma, LT1, VT1/GET e MOT1 podem ocorrer próximos porque respondem a uma transição metabólica comum, mas não medem o mesmo fenômeno. LT1 deriva do balanço sistêmico de lactato; VT1/GET deriva da troca gasosa pulmonar e do controle ventilatório; MOT1 deriva da relação local entre oferta e utilização de O₂ no músculo interrogado. Analogamente, LT2, VT2/RCP e MOT2 podem convergir em determinada faixa de intensidade sem serem fisiologicamente idênticos. A concordância deve ser investigada empiricamente em cada teste, e não pressuposta.
Esse princípio tem consequências diretas para a prescrição de treinamento. A utilização conjunta de VO₂, ventilação, SmO₂, lactato, frequência cardíaca e intensidade externa permite observar diferentes níveis do mesmo sistema fisiológico. Quando os marcadores convergem, a confiança na delimitação aumenta. Quando divergem, a divergência não deve ser automaticamente “corrigida”; pode representar fisiologia real. Estado de treinamento, disponibilidade de glicogênio, temperatura, hidratação, protocolo incremental, duração dos estágios, músculo monitorado pelo NIRS e erro analítico podem deslocar diferentemente cada marcador.
A própria utilização de lactato para controle do treinamento deve respeitar essa individualidade. Concentrações fixas de 2 e 4 mmol·L⁻¹ têm utilidade histórica e operacional, mas não representam fronteiras universais. Billat (1996) e Faude, Kindermann e Meyer (2009) demonstram a diversidade de conceitos de limiar e a dependência metodológica das intensidades resultantes. O treinamento guiado por lactato empregado em corredores de elite explora justamente o controle individualizado da intensidade, frequentemente mantendo sessões intervaladas em uma faixa metabólica controlada, em vez de transformar cada sessão em exercício máximo. Casado et al. (2023) descrevem essa estratégia dentro de uma organização caracterizada simultaneamente por grande volume de baixa intensidade.
Consequentemente, a elevada proporção de treinamento abaixo do primeiro limiar observada em atletas de endurance não significa que intensidades superiores sejam indesejáveis. A distribuição resulta da necessidade de compatibilizar estímulo e recuperação. Sessões intensas oferecem grande estímulo por unidade de tempo; sessões extensivas permitem acumular enorme quantidade de contrações, fluxo sanguíneo, sinalização metabólica e trabalho mecânico com custo recuperativo relativamente baixo. O treinamento eficaz não decorre da oposição entre “Zona 2” e alta intensidade, mas da distribuição racional das intensidades ao longo do tempo.
A síntese dos estudos de capilarização reforça essa interpretação. Treinamento contínuo, HIT e SIT podem induzir angiogênese, embora por combinações diferentes de duração, fluxo, hipóxia relativa, tensão de cisalhamento e perturbação metabólica. A revisão de Ross et al. (2023) descreve participação de VEGF, NO, células angiogênicas circulantes, vesículas extracelulares e múltiplos mecanismos parácrinos. A meta-regressão de Mølmen, Almquist e Skattebo (2025) demonstra que diferentes modalidades podem aumentar capilares por fibra e conteúdo mitocondrial, desaconselhando a atribuição de adaptações inteiras a uma única zona.
A mesma conclusão emerge no nível molecular. Exercícios de intensidade baixa a moderada podem produzir sinais persistentes pela duração e repetição, enquanto intensidades elevadas geram maior perturbação energética aguda. AMPK e CaMKII não constituem vias mutuamente exclusivas de “alta” e “baixa” intensidade. A hipótese popular segundo a qual Zona 2 estimularia mitocôndrias especificamente por Ca²⁺ enquanto alta intensidade atuaria exclusivamente por AMPK não encontra sustentação adequada: exercícios intensos também ativam sinalização dependente de Ca²⁺. A biologia adaptativa responde a redes de sinais superpostos.
O lactato integra elegantemente esses diferentes níveis. À medida que a intensidade aumenta, cresce o fluxo glicolítico e modifica-se a circulação de lactato entre compartimentos. O metabólito pode ser exportado por fibras de maior produção, captado por fibras mais oxidativas por MCT1, convertido a piruvato e oxidado; pode alcançar outros órgãos; e pode participar de processos sinalizadores. Com treinamento, aumento da capacidade oxidativa, remodelação mitocondrial, maior capilarização e alterações dos transportadores modificam todo esse circuito. A curva de lactato desloca-se não porque o organismo deixou de produzi-lo, mas porque mudou a cinética integrada de produção, distribuição, transporte e utilização.
A fisiologia contemporânea do endurance conduz, portanto, a uma interpretação menos dicotômica e mais sistêmica. Não existe uma passagem abrupta de “aeróbio” para “anaeróbio”, assim como não existe uma intensidade singular responsável por todas as adaptações mitocondriais. Os limiares são fronteiras operacionais úteis porque identificam mudanças na dinâmica do sistema, mas dependem da variável observada e do método empregado. Lactato informa sobre balanço metabólico sistêmico; análise de gases informa sobre integração pulmonar e metabólica; NIRS informa sobre oxigenação local; VO₂ informa sobre metabolismo oxidativo corporal; potência ou velocidade representam a carga externa. A força da avaliação fisiológica reside justamente na integração desses sinais.
Em termos aplicados, a estratégia mais robusta consiste em interpretar o teste incremental como um experimento multiparamétrico. A intensidade externa deve ocupar o eixo causal do protocolo e as respostas fisiológicas devem ser examinadas em função dela. Pontos de mudança podem ser identificados por inspeção criteriosa e, preferencialmente, por regressão segmentada ou métodos matemáticos apropriados, mas nenhuma transformação matemática elimina a necessidade de interpretação fisiológica. A identificação de um ponto de quebra deve responder a três perguntas: qual variável mudou, em relação a qual variável ela foi analisada e qual mecanismo fisiológico justifica chamar aquela mudança de limiar.
Essa última questão é particularmente relevante para o emprego combinado de VO₂ Master e Moxy Monitor. O primeiro fornece uma representação sistêmica da utilização de O₂ e da ventilação; o segundo fornece uma janela local para o balanço entre entrega e extração muscular de O₂. Quando acrescentado o lactato, obtém-se uma terceira dimensão, relacionada ao balanço entre aparecimento e desaparecimento desse metabólito. A coincidência aproximada entre alterações de EqO₂, VE, SmO₂ e lactatemia aumenta a robustez interpretativa; a ausência de coincidência, entretanto, deve ser documentada e estudada, pois pode revelar justamente a dissociação entre controle ventilatório, metabolismo sistêmico e metabolismo muscular local.
A evolução conceitual descrita pelos estudos reunidos conduz, finalmente, a uma mudança importante na própria definição do treinamento aeróbico. Treinar endurance não significa simplesmente aumentar VO₂máx nem permanecer longos períodos em uma intensidade denominada Zona 2. Significa provocar, em doses toleráveis e repetíveis, perturbações capazes de remodelar o transporte e a utilização de oxigênio, o retículo mitocondrial, a rede capilar, a utilização de substratos e os mecanismos de transporte e sinalização metabólica. Volume e intensidade constituem dimensões complementares desse estímulo. A fisiologia do atleta treinado emerge da integração dessas exposições ao longo de meses e anos.
13. Entre os limiares e alta intensidade: especificidade, fluxo e teto aeróbico
Z3: o problema não é a zona intermediária, mas a relação entre custo e especificidade
A crítica ao treinamento excessivo na zona intermediária precisa ser formulada cuidadosamente. Não há evidência suficiente para afirmar que Z3 seja intrinsecamente prejudicial ou que produza necessariamente mais ROS do que Z4 ou Z5. O argumento biologicamente mais plausível é que, dependendo de sua duração e frequência, a intensidade intermediária pode ocupar uma posição particularmente desfavorável entre estímulo e recuperação.
Ela é suficientemente intensa para produzir grande demanda metabólica e maior perturbação fisiológica do que a baixa intensidade, mas suficientemente sustentável para que o atleta possa acumular grandes quantidades de trabalho nessa intensidade. Se realizada de forma contínua e frequente, pode gerar elevado custo de recuperação sem necessariamente fornecer o estímulo máximo de alta intensidade ou o volume de baixa intensidade.
A expressão “cara demais para ser fácil e específica de menos para ser difícil” pode ser utilizada como síntese didática, desde que se compreenda que se trata de uma interpretação, não de uma lei fisiológica.
Há, entretanto, uma exceção decisiva: quando a intensidade intermediária corresponde ao ritmo específico da competição, ela deixa de ser genérica e passa a ser altamente específica. Isso é evidente em provas como meia maratona, maratona, triatlo de longa distância e Ironman. O atleta precisa aprender não apenas a produzir determinada velocidade ou potência, mas a sustentar essa demanda durante longo período, em estado progressivo de fadiga. Nesse contexto, Z3 pode ser indispensável.
A questão, portanto, não é eliminar a zona intermediária, mas evitar que ela seja ocupada indiscriminadamente por grande parte do treinamento.
Z4: alto fluxo glicolítico, oxidativo e lactato como elemento funcional
A zona próxima ou acima do segundo limiar representa uma condição diferente. A demanda energética aumenta, o recrutamento de unidades motoras de maior limiar é ampliado, a glicólise contribui mais intensamente para a ressíntese de ATP e o fluxo de lactato aumenta. Simultaneamente, a fosforilação oxidativa permanece altamente ativa. Não existe uma substituição abrupta da via aeróbia pela anaeróbia; há aumento da contribuição relativa das vias glicolíticas em um sistema que continua apresentando enorme fluxo oxidativo.
Esse domínio é particularmente interessante para desenvolver a capacidade de sustentar elevada taxa metabólica. A repetição de intervalos próximos ao limiar permite acumular tempo em uma intensidade alta sem necessariamente impor o custo de um esforço máximo contínuo. É exatamente nessa lógica que se pode compreender parte da estratégia norueguesa contemporânea: intervalos relativamente longos, progressivos e controlados, com monitoramento da resposta fisiológica e menor preocupação em levar cada repetição à exaustão (TØNNESSEN et al., 2024).
O lactato torna-se especialmente informativo nesse domínio. Ele pode ser utilizado como marcador da intensidade metabólica, mas sua interpretação deve considerar simultaneamente produção e remoção. Um atleta que apresenta determinado lactato em Z4 não necessariamente possui menor capacidade oxidativa do que outro atleta com lactato inferior. A diferença pode refletir produção maior, remoção menor ou combinações das duas.
Essa é uma razão para considerar o lactato como uma ferramenta para avaliar a competência metabólica do sistema, e não simplesmente como um marcador de “fadiga”. A evolução do lactato em uma determinada potência ou velocidade, associada ao VO₂ e à frequência cardíaca, pode mostrar se o atleta está se tornando mais capaz de sustentar a carga com menor perturbação metabólica.
Z5: elevar o teto cardiorrespiratório e recrutar as unidades motoras de maior limiar
O treinamento de intensidade muito alta tem uma função diferente. Ele aproxima o organismo de elevadas taxas de consumo de oxigênio, aumenta a demanda cardiovascular e respiratória, eleva o recrutamento de unidades motoras de maior limiar e expõe fibras tipo II a elevado turnover de ATP e grande demanda metabólica.
Isso não significa que Z5 seja a “zona das fibras II” de forma exclusiva, nem que Z2 seja a “zona das fibras I”. O recrutamento muscular ocorre em um continuum e depende da força necessária, da velocidade de contração, da fadiga e da modalidade. Entretanto, é fisiologicamente plausível que intensidades elevadas aumentem substancialmente a exposição das fibras de maior limiar a fluxos glicolíticos e oxidativos que elas não experimentariam na mesma magnitude durante baixa intensidade.
A importância de Z5 para o desempenho não está apenas no aumento do VO₂max. A alta intensidade pode melhorar a capacidade cardiorrespiratória central, a capacidade oxidativa periférica e determinados componentes neuromusculares e mecânicos. Entretanto, a eficiência mecânica e a economia específica da modalidade não são construídas exclusivamente em intensidades máximas. Elas dependem de exposição repetida ao padrão motor, grande volume de prática e capacidade de manter a mecânica sob fadiga.
Assim, uma formulação útil é considerar Z2 como grande construtora da plataforma oxidativa e da economia geral, Z4 como domínio particularmente eficiente para desenvolver a capacidade de sustentar elevada taxa metabólica e Z5 como exposição estratégica ao teto cardiorrespiratório e ao recrutamento de unidades motoras de maior limiar.
Essa divisão é um modelo didático de especialização relativa, não uma separação fisiológica absoluta.
Z4: alto fluxo glicolítico, oxidativo e lactato como elemento funcional
A zona próxima ou acima do segundo limiar representa uma condição diferente. A demanda energética aumenta, o recrutamento de unidades motoras de maior limiar é ampliado, a glicólise contribui mais intensamente para a ressíntese de ATP e o fluxo de lactato aumenta. Simultaneamente, a fosforilação oxidativa permanece altamente ativa. Não existe uma substituição abrupta da via aeróbia pela anaeróbia; há aumento da contribuição relativa das vias glicolíticas em um sistema que continua apresentando enorme fluxo oxidativo.
Esse domínio é particularmente interessante para desenvolver a capacidade de sustentar elevada taxa metabólica. A repetição de intervalos próximos ao limiar permite acumular tempo em uma intensidade alta sem necessariamente impor o custo de um esforço máximo contínuo. É exatamente nessa lógica que se pode compreender parte da estratégia norueguesa contemporânea: intervalos relativamente longos, progressivos e controlados, com monitoramento da resposta fisiológica e menor preocupação em levar cada repetição à exaustão (TØNNESSEN et al., 2024).
O lactato torna-se especialmente informativo nesse domínio. Ele pode ser utilizado como marcador da intensidade metabólica, mas sua interpretação deve considerar simultaneamente produção e remoção. Um atleta que apresenta determinado lactato em Z4 não necessariamente possui menor capacidade oxidativa do que outro atleta com lactato inferior. A diferença pode refletir produção maior, remoção menor ou combinações das duas.
Essa é uma razão para considerar o lactato como uma ferramenta para avaliar a competência metabólica do sistema, e não simplesmente como um marcador de “fadiga”. A evolução do lactato em uma determinada potência ou velocidade, associada ao VO₂ e à frequência cardíaca, pode mostrar se o atleta está se tornando mais capaz de sustentar a carga com menor perturbação metabólica.
Z5: elevar o teto cardiorrespiratório e recrutar as unidades motoras de maior limiar
O treinamento de intensidade muito alta tem uma função diferente. Ele aproxima o organismo de elevadas taxas de consumo de oxigênio, aumenta a demanda cardiovascular e respiratória, eleva o recrutamento de unidades motoras de maior limiar e expõe fibras tipo II a elevado turnover de ATP e grande demanda metabólica.
Isso não significa que Z5 seja a “zona das fibras II” de forma exclusiva, nem que Z2 seja a “zona das fibras I”. O recrutamento muscular ocorre em um continuum e depende da força necessária, da velocidade de contração, da fadiga e da modalidade. Entretanto, é fisiologicamente plausível que intensidades elevadas aumentem substancialmente a exposição das fibras de maior limiar a fluxos glicolíticos e oxidativos que elas não experimentariam na mesma magnitude durante baixa intensidade.
A importância de Z5 para o desempenho não está apenas no aumento do VO₂max. A alta intensidade pode melhorar a capacidade cardiorrespiratória central, a capacidade oxidativa periférica e determinados componentes neuromusculares e mecânicos. Entretanto, a eficiência mecânica e a economia específica da modalidade não são construídas exclusivamente em intensidades máximas. Elas dependem de exposição repetida ao padrão motor, grande volume de prática e capacidade de manter a mecânica sob fadiga.
Assim, uma formulação útil é considerar Z2 como grande construtora da plataforma oxidativa e da economia geral, Z4 como domínio particularmente eficiente para desenvolver a capacidade de sustentar elevada taxa metabólica e Z5 como exposição estratégica ao teto cardiorrespiratório e ao recrutamento de unidades motoras de maior limiar.
Essa divisão é um modelo didático de especialização relativa, não uma separação fisiológica absoluta.
Estresse oxidativo: intensidade, volume e hormese
A discussão sobre espécies reativas de oxigênio acrescenta uma camada fundamental à compreensão do custo e do benefício de diferentes intensidades. Durante o exercício, ROS podem ser produzidas por múltiplas fontes. A mitocôndria é uma delas, mas não a única. NADPH oxidases, especialmente NOX, xantina oxidase, fosfolipase A₂ e outros mecanismos relacionados à contração e ao metabolismo contribuem para a formação de espécies reativas. Em músculo esquelético, revisões modernas destacam particularmente a participação de NOX, xantina oxidase e mitocôndrias (GOMES et al., 2021).
Esse ponto é essencial porque a produção de ROS não deve ser interpretada simplesmente como “vazamento de elétrons da cadeia respiratória”. A contração muscular altera o estado redox celular por mecanismos múltiplos, incluindo alterações no Ca²⁺, pH, fluxo sanguíneo, atividade de NOX, metabolismo das purinas e estado energético.
A intensidade tende a aumentar a perturbação redox aguda, mas essa relação não é linear e depende também da duração, do volume, do estado de treinamento, da temperatura e da capacidade antioxidante. Um exercício máximo de cinco minutos e um exercício moderado de uma hora não representam a mesma exposição total, mesmo que ambos produzam alterações redox. Estudos experimentais demonstram que diferentes combinações de intensidade e duração podem produzir respostas diferentes de marcadores oxidativos, reforçando a necessidade de interpretar intensidade e volume conjuntamente.
O estudo clássico de Goto et al. é particularmente interessante nesse contexto. Homens jovens foram submetidos durante 12 semanas a exercício de baixa intensidade, 25% do VO₂max, intensidade moderada, 50% do VO₂max, ou alta intensidade, 75% do VO₂max. O grupo moderado apresentou melhora da vasodilatação dependente do endotélio, enquanto o grupo de alta intensidade apresentou aumento de marcadores de estresse oxidativo, incluindo 8-hidroxi-2′-desoxiguanosina e LDL modificada por malondialdeído. Os autores propuseram que uma intensidade elevada poderia ultrapassar a capacidade antioxidante vascular e produzir maior estresse oxidativo (GOTO et al., 2003).
Esse resultado é importante, mas deve ser interpretado corretamente. O estudo foi realizado no sistema vascular, não em mitocôndrias de fibras musculares. Entretanto, as células endoteliais possuem mitocôndrias e utilizam o metabolismo mitocondrial em funções relacionadas à sinalização redox, homeostase de Ca²⁺, apoptose e metabolismo celular. Portanto, o estudo fornece uma importante evidência de princípio: a relação entre intensidade do exercício, estresse oxidativo e adaptação pode possuir uma janela ótima e não ser simplesmente monotônica.
Essa observação é compatível com o conceito de hormese. ROS não são apenas agentes potencialmente lesivos; são também sinais moleculares necessários para desencadear adaptações. ROS podem ativar vias como AMPK, MAPK, NRF2 e PGC-1α, relacionadas à biogênese mitocondrial, metabolismo energético e defesa antioxidante. A eliminação excessiva desses sinais por suplementação antioxidante em altas doses pode inclusive atenuar algumas adaptações ao exercício (GOMES et al., 2021).
O objetivo do treinamento, portanto, não deveria ser eliminar ROS, mas produzir uma perturbação redox suficientemente grande para estimular adaptação sem ultrapassar repetidamente a capacidade de recuperação do organismo.
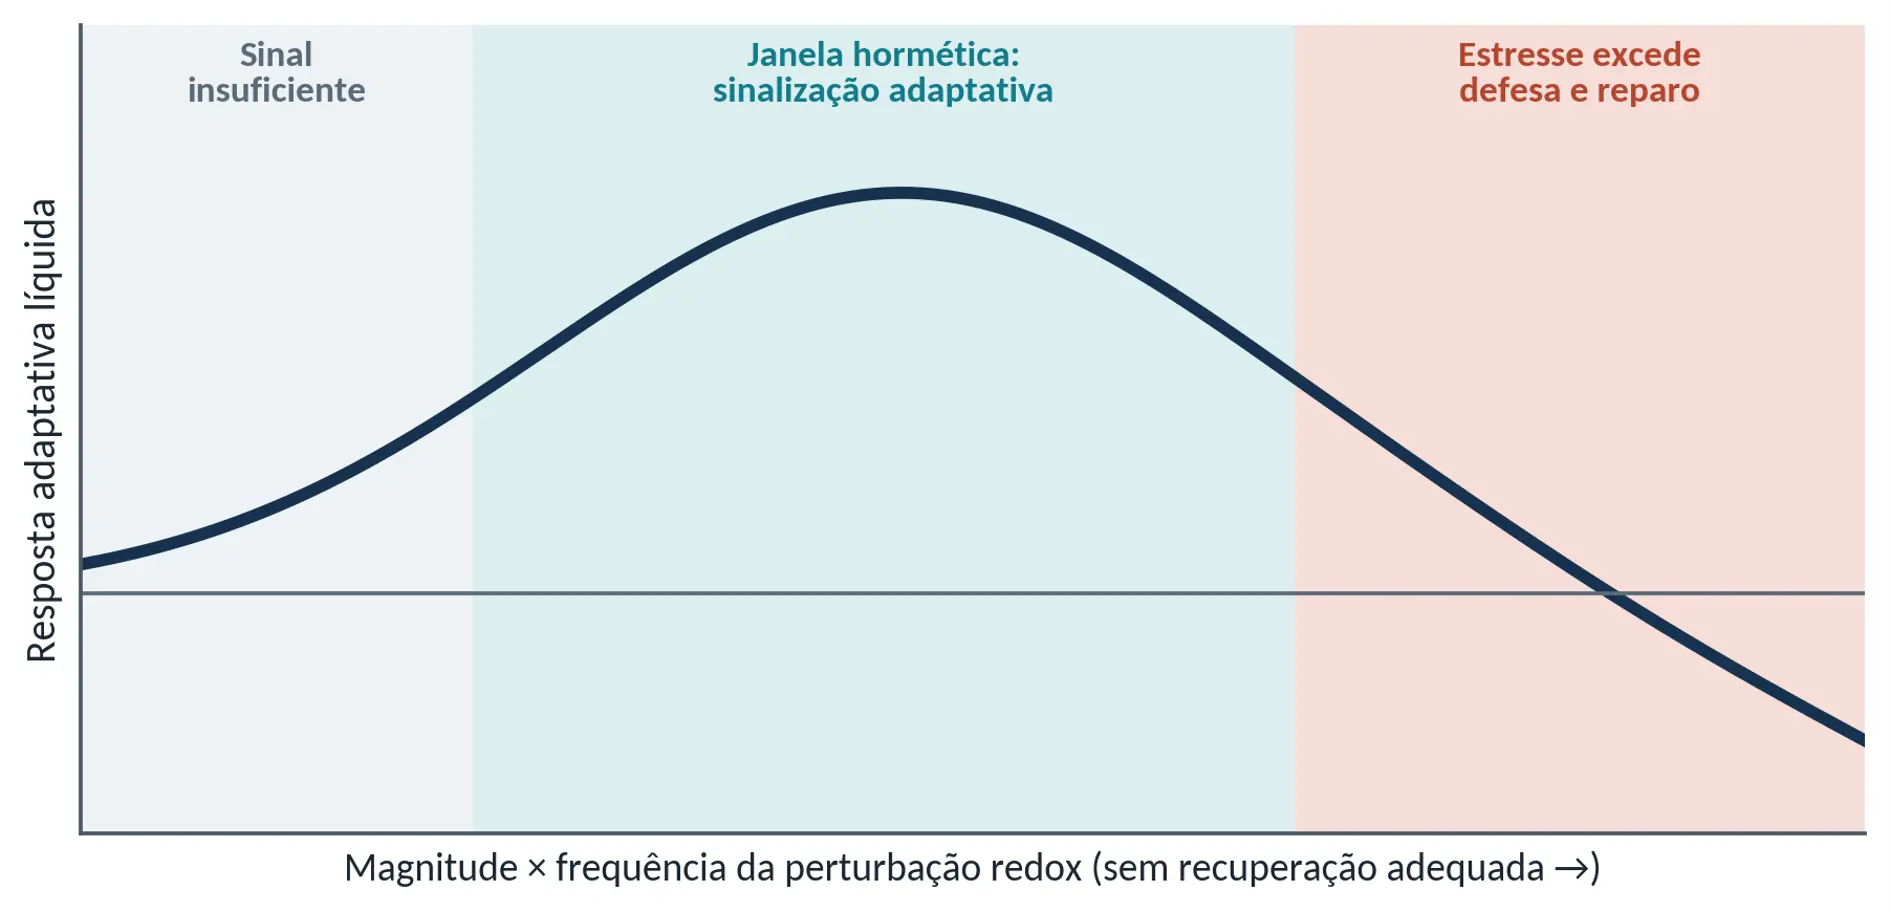
Figura complementar 11 — Representação conceitual da hormese redox: a resposta adaptativa líquida depende da magnitude, da frequência e da recuperação do estímulo oxidativo. Fonte: elaborada com base em Goto et al. (2003) e Merry e Ristow (2016).
Sistemas antioxidantes e a construção de uma reserva de tolerância
A exposição repetida a estímulos oxidativos moderados pode aumentar a capacidade antioxidante do organismo. Enzimas como superóxido dismutase, catalase e glutationa peroxidase, além do sistema glutationa e outros mecanismos de defesa, podem ser remodeladas pelo treinamento. A resposta antioxidante é, portanto, parte da adaptação ao exercício.
Essa ideia ajuda a compreender por que um atleta não deveria ser exposto exclusivamente a estímulos máximos. A alta intensidade também produz adaptação antioxidante, mas o problema é a relação entre magnitude do estímulo, duração, frequência e recuperação. Um estímulo muito grande, repetido antes que a capacidade de defesa e reparo tenha sido restaurada, pode produzir uma relação desfavorável entre estresse e adaptação.
Assim, a baixa intensidade pode exercer uma função importante não apenas pela produção de mitocôndrias e capilares, mas por permitir grande quantidade de exposição a estímulos metabólicos e redox moderados, com alta repetibilidade. Ao longo de semanas, esse processo pode aumentar a reserva antioxidante e a capacidade de lidar com os estímulos de maior magnitude.
Essa interpretação não significa que Z2 seja exclusivamente responsável pela adaptação antioxidante. Significa que o baixo custo relativo da sessão permite repetir o estímulo com elevada frequência e construir progressivamente uma capacidade de resposta.
Gradiente de prótons, potencial de membrana e desacoplamento mitocondrial
A discussão dos prótons precisa ser formulada com precisão. Durante a fosforilação oxidativa, os complexos da cadeia respiratória utilizam energia proveniente do fluxo eletrônico para transportar H⁺ da matriz para o espaço intermembrana, estabelecendo um gradiente eletroquímico denominado força próton-motriz. O retorno dos prótons pela ATP sintase é utilizado para produzir ATP.
Não é adequado, portanto, falar em “estagnação de prótons na zona 3”. O fenômeno fisiologicamente mais relevante é a relação entre fluxo eletrônico, força próton-motriz, potencial de membrana, disponibilidade de ADP e capacidade de utilização do gradiente para síntese de ATP.
Quando o potencial de membrana se torna elevado e o fluxo respiratório encontra limitações relativas, determinadas condições podem favorecer maior produção mitocondrial de ROS. Uma redução moderada da força próton-motriz pode diminuir essa pressão redox. É nesse contexto que entram as proteínas desacopladoras, especialmente UCP3 no músculo esquelético.
O proton leak permite que parte do gradiente seja dissipada sem passar pela ATP sintase. Isso pode reduzir o potencial de membrana e, potencialmente, diminuir a produção de ROS. O preço é evidente: parte da energia disponível para produzir ATP é dissipada como calor. Assim, existe um trade-off entre eficiência energética e proteção redox.
A UCP3 é particularmente interessante porque seu comportamento durante exercício e treinamento não é simples. Exercício agudo pode aumentar a expressão de UCP3, enquanto o treinamento crônico de endurance pode reduzir seu conteúdo muscular. Estudos em humanos demonstraram redução de UCP3 após treinamento de endurance, inclusive em diferentes tipos de fibras, com maior redução relativa em fibras tipo I em determinadas condições (RUSSELL et al., 2003).
Schrauwen et al. observaram que apenas duas semanas de treinamento de endurance em indivíduos previamente não treinados reduziram a razão entre UCP3 e citocromo c, sugerindo remodelamento da relação entre desacoplamento e capacidade mitocondrial (SCHRAUWEN et al., 2005).
Esse fenômeno pode ser interpretado como uma adaptação à maior eficiência metabólica. Uma mitocôndria treinada possui maior capacidade respiratória e maior infraestrutura oxidativa; portanto, pode ser capaz de processar maior fluxo eletrônico com menor necessidade relativa de dissipação do gradiente. Estudos experimentais também demonstraram redução da expressão e atividade de UCP e menor proton leak em mitocôndrias musculares após treinamento de endurance (DA SILVA et al., 2016).
Contudo, é importante não transformar UCP3 em uma simples “válvula de escape de prótons”. A proteína também parece participar do metabolismo de ácidos graxos e da proteção contra acúmulo de intermediários lipídicos, e a relação entre quantidade de UCP3, atividade de desacoplamento e produção de ROS permanece complexa. A literatura recente enfatiza que UCP3 possui funções que vão além do desacoplamento clássico.
Dessa forma, uma hipótese interessante para o treinamento é que o exercício repetido inicialmente aumenta a necessidade de mecanismos de proteção e controle do fluxo mitocondrial, enquanto o treinamento crônico melhora a capacidade oxidativa e reduz a necessidade relativa de desacoplamento defensivo. Isso pode contribuir para uma mitocôndria energeticamente mais eficiente.
Essa hipótese é especialmente interessante quando aplicada à interpretação da zona intermediária. Não há evidência suficiente para afirmar que Z3, especificamente, cause aumento de UCP3 por “estagnação de prótons”. Entretanto, é plausível que determinadas condições de exercício sustentado, nas quais coexistam elevado fluxo oxidativo, alta demanda energética e perturbação redox prolongada, aumentem a necessidade de mecanismos de controle da força próton-motriz. A existência desse mecanismo não prova que Z3 seja uma zona fisiologicamente desfavorável, mas oferece uma possível explicação para por que uma intensidade sustentada e repetida pode apresentar custo redox e de recuperação maior do que sua aparente posição intermediária sugeriria.
HSPs: a dimensão proteostática da adaptação
A resposta ao exercício não é apenas energética e redox. A célula também precisa preservar sua estrutura proteica. É nesse contexto que as proteínas de choque térmico, ou HSPs, tornam-se relevantes.
Embora sejam tradicionalmente associadas ao calor, as HSPs respondem a múltiplos estressores celulares, incluindo alterações de temperatura, ROS/RNS, alterações de Ca²⁺, perturbações energéticas, estresse mecânico e alterações na homeostase proteica. HSP70 é uma das principais proteínas de resposta ao estresse no músculo esquelético e atua como chaperona molecular, ajudando a preservar proteínas, impedir agregação, favorecer refolding e participar de processos de reparo e sobrevivência celular (KOH, 2002).
O exercício pode aumentar a expressão de HSP70 no músculo humano. Em um estudo clássico, apenas 30 minutos de exercício realizado próximo ao limiar anaeróbio foram suficientes para aumentar marcadamente o mRNA de HSP70, com resposta observável poucos minutos após o exercício (KOH; STEINER, 1996).
A resposta às HSPs não é, entretanto, simplesmente proporcional à intensidade. Duração, temperatura, estado de treinamento e tipo de estressor influenciam a resposta. Uma meta-análise publicada em 2026 mostrou que exercício prolongado pode aumentar HSP70 plasmática, mas que a resposta varia entre estudos e depende das características do exercício (CHAROENSAP et al., 2026).
Isso acrescenta uma dimensão importante ao modelo de treinamento: a adaptação não consiste apenas em construir mais mitocôndrias; consiste também em aumentar a capacidade da célula de suportar o estresse necessário para utilizar essas mitocôndrias em alta taxa.
Podemos, portanto, conceber uma reserva celular integrada composta por capacidade antioxidante, mecanismos de proteostase, capacidade de controle do Ca²⁺, capacidade mitocondrial e sistemas de reparo. O treinamento produz perturbação; a recuperação permite que a perturbação seja convertida em maior capacidade de tolerância.
Uma interpretação integrada das cinco zonas
Se um modelo de cinco zonas for utilizado para fins didáticos, pode-se interpretar cada domínio como uma combinação predominante, e não exclusiva, de estímulos.
A primeira zona representa principalmente recuperação e manutenção da capacidade de treinamento. A segunda constitui o principal domínio para acumulação de volume, desenvolvimento da capacidade oxidativa das unidades motoras predominantemente recrutadas, capilarização, eficiência metabólica e construção da base que permitirá tolerar cargas maiores. A terceira representa uma intensidade intermediária que pode ser altamente útil para especificidade de prova, mas que pode apresentar elevado custo de recuperação quando utilizada indiscriminadamente em grandes quantidades. A quarta representa um domínio particularmente importante para desenvolver a capacidade de sustentar elevada taxa de produção energética, combinando elevada contribuição glicolítica e oxidativa, maior fluxo de lactato e recrutamento adicional de fibras. A quinta expõe o organismo a elevado consumo de oxigênio, grande recrutamento neuromuscular e elevada taxa de turnover energético, sendo importante para ampliar o teto cardiorrespiratório e a capacidade de operar em alta intensidade.
Essa interpretação não significa que Z2 produza mitocôndrias enquanto Z4 e Z5 produzam apenas fibras II, nem que Z3 seja uma “zona tóxica”. Existe ampla sobreposição. A meta-regressão sobre adaptações mitocondriais demonstra justamente que diferentes formas de treinamento podem produzir aumentos substanciais no conteúdo mitocondrial. O que muda é a combinação de volume, recrutamento, fluxo energético, duração do estímulo, perturbação redox, especificidade e custo de recuperação.
Essa formulação permite compreender por que o atleta de endurance necessita simultaneamente de volume e intensidade. A baixa intensidade constrói a plataforma; a intensidade elevada amplia o teto; a intensidade intermediária pode desenvolver especificidade e capacidade de sustentação; a recuperação transforma todos esses estímulos em adaptação.
O lactato como elo entre fibras, intensidade e capacidade oxidativa
Dentro desse modelo, o lactato assume uma posição central. Durante a baixa intensidade, a demanda glicolítica é relativamente menor e a capacidade oxidativa das fibras recrutadas é suficiente para processar grande parte do substrato local. À medida que a intensidade aumenta, a participação das fibras tipo II e a taxa glicolítica aumentam, elevando a produção de piruvato e lactato. Parte desse lactato permanece no compartimento em que foi produzido; outra parte é transportada por MCTs para fibras vizinhas, outros músculos, coração e outros tecidos.
Essa organização cria uma hipótese fisiológica particularmente interessante para o treinamento de baixa intensidade: o desenvolvimento de uma grande capacidade oxidativa nas fibras predominantemente recrutadas em baixa intensidade pode ampliar a capacidade global do músculo de receber e oxidar lactato produzido por unidades motoras mais glicolíticas durante esforços de maior intensidade.
Nesse sentido, o treinamento de baixa intensidade não seria apenas treinamento das fibras tipo I para “usar gordura”. Ele poderia aumentar a capacidade de toda a rede muscular de processar substratos e integrar os diferentes compartimentos metabólicos.
A hipótese pode ser ainda mais refinada: o treinamento de alta intensidade aumentaria a capacidade de produzir e transportar lactato, enquanto o treinamento de baixa intensidade aumentaria a capacidade de oxidá-lo. O treinamento de endurance completo precisaria, portanto, desenvolver tanto o lado produtor quanto o consumidor do lactate shuttle. Brooks descreve justamente o lactato como elemento de comunicação metabólica entre compartimentos e como substrato energético, precursor gliconeogênico e sinalizador (BROOKS, 2018).
O que o lactato pode dizer sobre a competência mitocondrial?
É necessário evitar a interpretação de que uma concentração baixa de lactato necessariamente significa “mitocôndrias melhores”. O lactato sanguíneo resulta de múltiplos processos. Entretanto, quando lactato, VO₂, potência ou velocidade e FC são analisados conjuntamente, mudanças na curva podem fornecer informações importantes sobre a relação entre produção e utilização de energia.
Se um atleta realiza determinada potência com menor lactato, menor FC e VO₂ semelhante ou menor, pode ter ocorrido melhora na economia metabólica. Se a potência correspondente ao LT2 aumenta sem elevação proporcional do lactato, pode ter ocorrido aumento da capacidade de sustentar fluxo energético elevado. Se a SmO₂ apresenta comportamento diferente para a mesma carga, podemos inferir alterações na relação entre oferta e utilização de oxigênio no músculo.
Essa interpretação é muito mais rica do que utilizar o lactato como simples marcador de “zona”.
14. Distribuição polarizada e piramidal: modelos, não dogmas
O modelo de cinco zonas, por sua vez, é apresentado como uma ferramenta de coaching. Em atletas de alto rendimento, a faixa abaixo de LT1 pode ser muito ampla; subdividi-la em duas zonas ajuda a prescrever ritmos distintos de baixa intensidade. O mesmo ocorre acima do limiar: separar intensidades altas em zonas 4 e 5 permite distinguir sessões longas e controladas de intervalos próximos do V̇O₂máx. Seiler enfatiza, porém, que nem todas essas subdivisões correspondem a novas fronteiras fisiológicas discretas. Em outras palavras, o mapa de cinco zonas aumenta a resolução operacional, mas não cria cinco limiares biológicos.
2. Por que LT1 recebe tanta atenção [≈ 4:20–12:55]
Na discussão, LT1 emerge como uma fronteira especialmente importante para organizar grandes volumes de treinamento. Abaixo dela, atletas muito treinados conseguem acumular longa duração com perturbação sistêmica relativamente pequena. Ao ultrapassá-la, o custo interno tende a crescer: ventilação, lactato, ativação simpática e percepção de esforço passam a responder de modo mais pronunciado. Isso não significa que treinar acima de LT1 seja indesejável; significa que o treinador deve reconhecer que o custo de recuperação muda. O erro mais frequente em praticantes recreacionais, segundo Seiler, é transformar continuamente sessões fáceis em sessões moderadas. O resultado é uma convergência para o “meio”: a base fica dura demais e as sessões realmente intensas perdem qualidade.
A conversa também ressalta que o LT2 é metodologicamente mais dependente do critério adotado. Lactato, ventilação, potência crítica e outros marcadores podem localizar fronteiras próximas, porém não idênticas. A consistência do método ao longo do tempo é, portanto, tão importante quanto a busca de um número supostamente universal. Em laboratório, VT1 pode ser identificado por alterações ventilatórias e no equivalente ventilatório de O₂; VT2/RCP exige informação relacionada ao CO₂ para identificação convencional completa. No campo, lactato, frequência cardíaca, potência/velocidade e percepção devem ser combinados.
3. Distribuição da intensidade: polarização sem dogma [≈ 13:00–17:30]
Ao comparar dados de esquiadores e ciclistas, Seiler chama atenção para a predominância do treinamento de baixa intensidade, embora a fração intermediária varie com a modalidade e com a forma de quantificação. Em esquiadores bem treinados, seu trabalho clássico encontrou aproximadamente 75% das sessões na Zona 1, 8% na Zona 2 e 17% na Zona 3 quando o modelo era delimitado por VT1 e VT2 (SEILER; KJERLAND, 2006). Isso ajudou a consolidar o conceito de distribuição polarizada, mas o próprio Seiler adverte contra transformar 80/20 em regra rígida. Ciclismo de estrada, por exemplo, contém subidas, esforços estocásticos e sessões de quatro a seis horas que acumulam mais tempo intermediário.
A mensagem central é que a separação mais robusta pode ser pensada como “abaixo de LT1” versus “trabalho que ultrapassa LT1”, e não como uma obrigação de encaixar cada minuto em uma taxonomia perfeita. Atletas de elite também tendem a realizar muito trabalho intervalado em intensidades altas, porém submáximas, acumulando mais minutos com elevado estímulo cardiovascular sem pagar o custo de recuperação de sessões sistematicamente máximas. O estudo 4×4, 4×8 e 4×16 min ilustra esse princípio: 4×8 min, realizado a intensidade menor que 4×4, produziu maior ganho global em variáveis de endurance no protocolo investigado (SEILER et al., 2013).
4. Triangulação: carga externa, resposta interna e percepção [≈ 18:20–24:20]
A proposta de triangulação é um dos elementos mais úteis da entrevista. Potência, velocidade ou ritmo descrevem o trabalho externo; frequência cardíaca, lactato e ventilação descrevem o custo fisiológico; RPE e sensações do atleta descrevem a experiência integrada. Nenhuma dessas dimensões, isoladamente, é suficiente. A mesma potência pode custar mais em calor, altitude, desidratação ou fadiga acumulada; a mesma frequência cardíaca pode representar cargas externas diferentes; e uma RPE elevada sem contexto externo não informa se o atleta está produzindo 100 ou 400 W. A decisão melhora quando as três perspectivas convergem ou quando sua divergência é interpretada como informação.
Atletas experientes podem calibrar sua percepção com grande precisão porque repetidamente compararam sensações com lactato, potência e frequência cardíaca. Em altitude e calor, essa calibração pode se deslocar, justificando maior conservadorismo nas primeiras exposições. O princípio prático é reduzir a dependência de uma única métrica e observar a relação entre carga externa e custo interno ao longo do tempo.
5. Sinal adaptativo versus estresse sistêmico [≈ 24:20–fim]
Seiler resume a utilidade das zonas como um problema de engenharia biológica: produzir sinal suficiente para adaptação com um custo de estresse que permita repetir o treinamento. Intensidades mais altas recrutam mecanismos centrais e periféricos importantes, mas o aumento do estresse não é linearmente vantajoso. O treinamento de baixa intensidade sustenta volume, densidade mitocondrial e capilar, enquanto sessões mais intensas elevam débito cardíaco, recrutamento e sinalização metabólica. Essas vias se sobrepõem; não existe uma sessão que treine exclusivamente “V̇O₂máx” e outra que treine exclusivamente “limiar”.
A conclusão é pragmática: zonas são linguagem comum e instrumentos de controle, não compartimentos metabólicos estanques. O objetivo é preservar continuidade, saúde e capacidade de executar sessões de qualidade. A literatura experimental e observacional sustenta grande volume em baixa intensidade combinado a doses menores de trabalho intenso, mas a distribuição ótima depende de modalidade, nível, fase de treinamento e tolerância individual (SEILER, 2010; ESTEVE-LANAO et al., 2007; STÖGGL; SPERLICH, 2014).
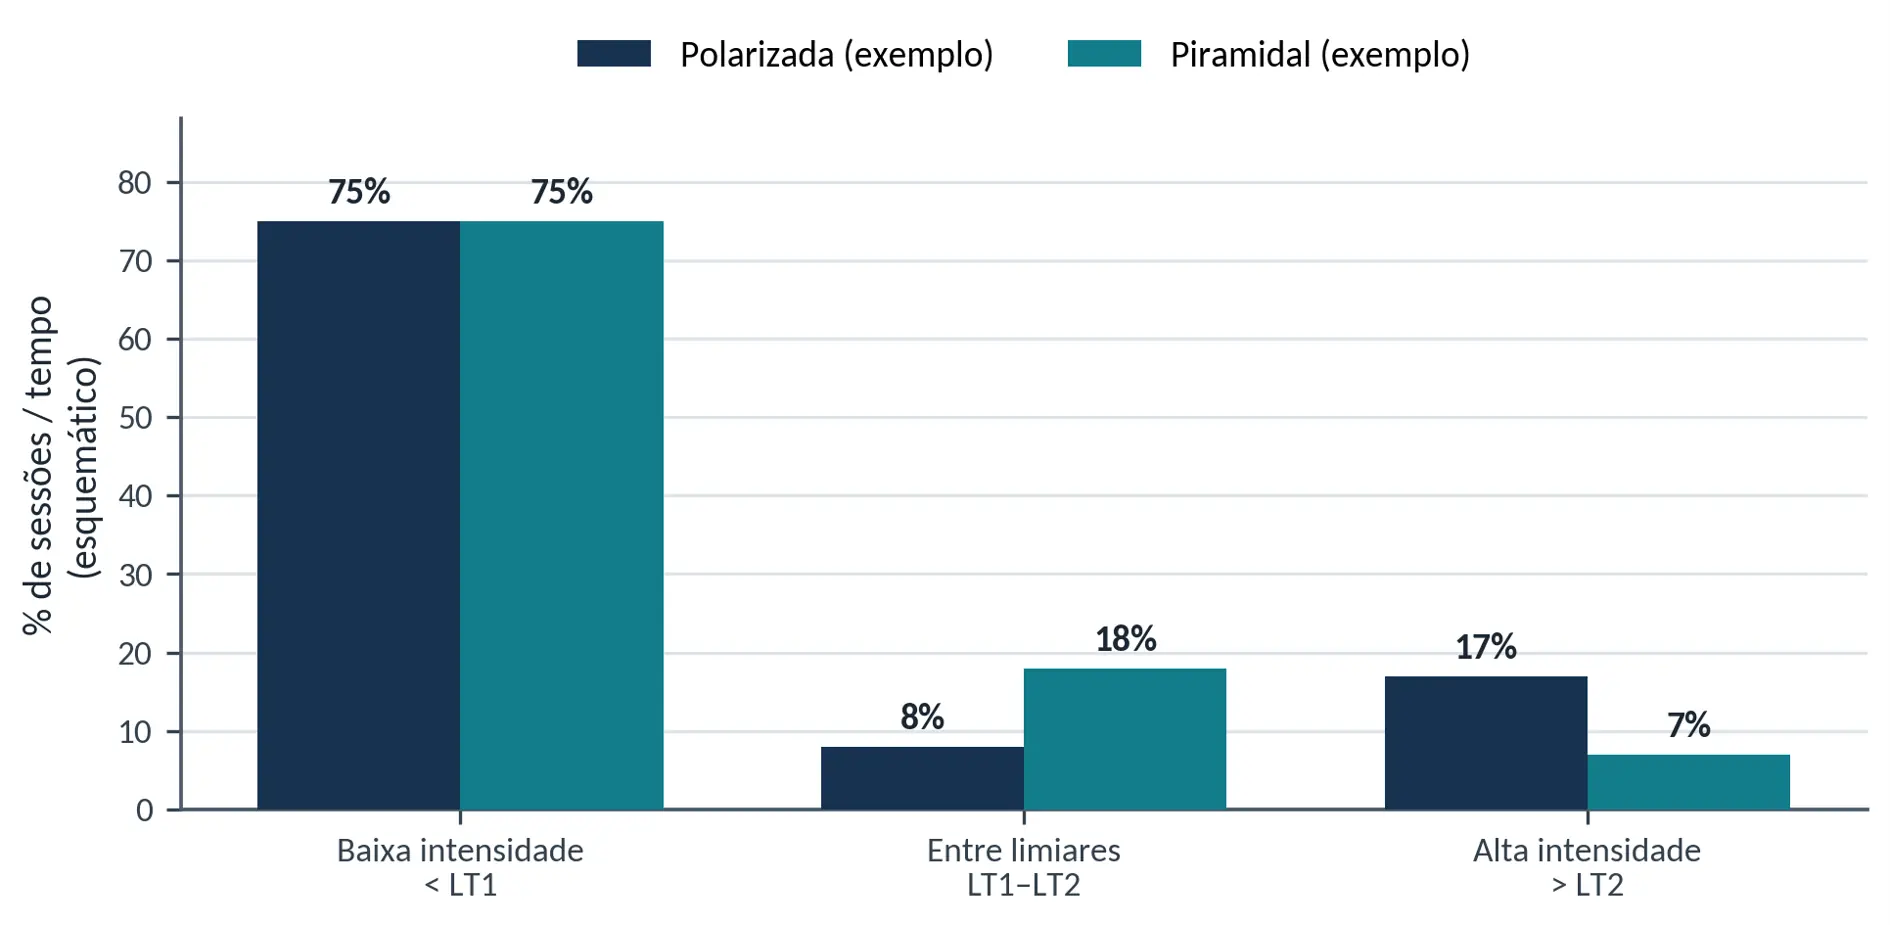
Figura 5 — Comparação didática entre distribuições polarizada e piramidal. As proporções são exemplos conceituais; a classificação depende do método de quantificação e da modalidade.
A literatura observacional mostra que atletas de endurance altamente treinados acumulam grande parte do treinamento em baixa intensidade, com menor fração entre os limiares e uma parcela de alta intensidade. Isso não significa que exista uma proporção universal ótima. Modalidade, fase da temporada, nível de treinamento, calendário competitivo e método de quantificação alteram a distribuição observada (SEILER; KJERLAND, 2006; SEILER, 2010; STÖGGL; SPERLICH, 2015).
15. Sinal adaptativo versus estresse: a lógica da sustentabilidade
10. Durabilidade e individualização [≈ 55:00–fim]
Nos eventos prolongados, o atleta de excelência não é apenas aquele que apresenta grande potência quando fresco, mas aquele cuja potência crítica, limiar, V̇O₂ e capacidade de sprint se deterioram menos após horas de trabalho. Essa propriedade é denominada durabilidade ou resistência à fadiga. Maunder et al. (2021) propuseram incorporá-la explicitamente ao perfil fisiológico, pois avaliações tradicionais em estado descansado podem não explicar quem preserva desempenho quando a competição já acumulou grande custo energético.
A síntese final é que princípios universais e individualização não são opostos. O treinamento de endurance bem-sucedido tende a compartilhar continuidade, grande base de baixa intensidade, doses estratégicas de intensidade, progressão de volume e monitoramento; contudo, a proporção exata, a forma dos intervalos, a tolerância ao estresse e a resposta longitudinal são individuais. Modelos são mapas de decisão, não substitutos para observação.
O princípio operacional é produzir sinal suficiente para adaptação sem tornar o custo de recuperação tão alto que reduza a qualidade ou a frequência das sessões subsequentes. A mesma sessão pode ser produtiva ou excessiva dependendo do estado do atleta. A carga total inclui ainda sono, nutrição, estresse psicossocial, viagens, calor, altitude e competição. A prescrição é, portanto, um problema de gestão de um sistema adaptativo, não de maximização aguda do sofrimento.
16. Triangulação: carga externa, resposta interna e percepção
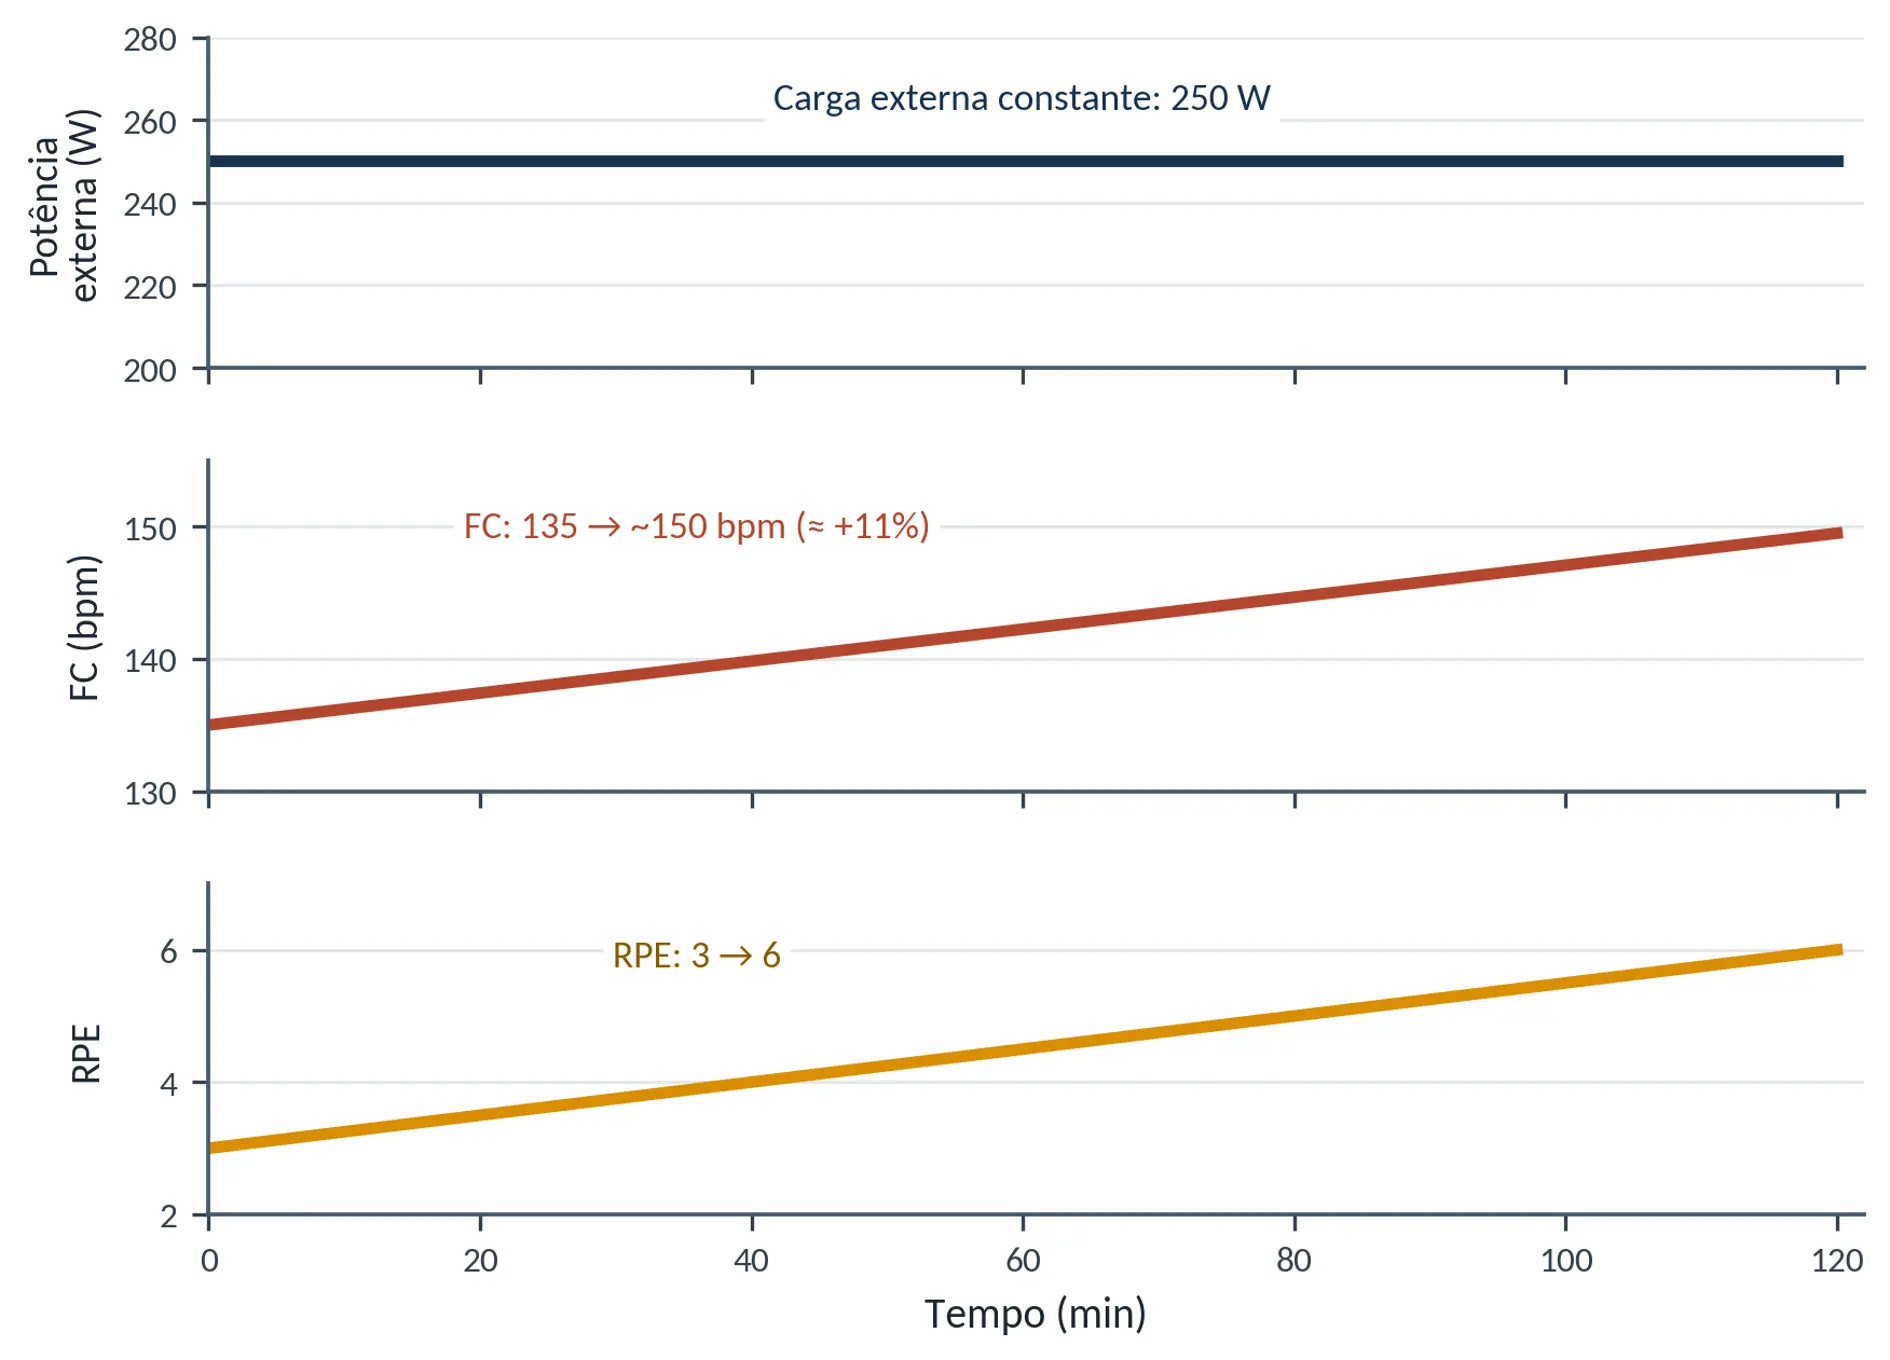
Figura 6 — Exemplo conceitual de desacoplamento entre carga externa e custo interno ao longo de exercício prolongado.
Tabela 6 — Triangulação aplicada ao monitoramento
| Pergunta | Carga externa | Resposta interna | Percepção | Interpretação possível |
| A sessão está estável? | Potência/velocidade estável | FC/lactato/VO₂ estáveis | RPE estável | Boa tolerância à dose |
| Há deriva? | Externa estável | FC ou VO₂ sobem | RPE sobe | Custo crescente; calor, desidratação, fadiga ou duração |
| Há supressão autonômica? | Potência cai | FC inesperadamente baixa | RPE alta | Fadiga acumulada possível; requer contexto |
| O atleta está calibrado? | Meta externa conhecida | Marcadores ocasionais | RPE coerente | Percepção pode ganhar valor operacional |
17. Durabilidade e desacoplamento: o atleta depois de horas de trabalho
Variabilidade interindividual
Em um conjunto de dez atletas realizando quatro horas de ciclismo em potência estável, escolhida entre aproximadamente 60 e 70% da potência de 60 minutos, a frequência cardíaca média aumentou de cerca de 65% para 74% da FCmáx entre o início e o final da sessão. O comportamento médio, entretanto, esconde heterogeneidade substancial. A durabilidade é uma característica individual e não pode ser inferida apenas do nível de desempenho ou da intensidade prescrita.
A percepção de esforço apresenta variabilidade semelhante. Dois atletas podem iniciar uma sessão com RPE baixa e terminar de maneira muito distinta: no exemplo apresentado, um atleta alcançou apenas RPE 12 após quatro horas, enquanto outro atingiu RPE 18, valor compatível com esforço muito intenso. A concordância entre elevação de RPE e aumento da carga interna reforça a necessidade de integrar sinais fisiológicos e perceptivos.
Determinantes do desacoplamento e da durabilidade
O aumento da carga interna durante exercício prolongado possui etiologia multifatorial. Temperatura e umidade elevadas aumentam a exigência termorregulatória; baixa movimentação de ar, particularmente em treinamento indoor, reduz a dissipação convectiva de calor; desidratação e hipovolemia podem agravar a redução do volume sistólico; queda da glicemia e depleção de glicogênio modificam a disponibilidade de substratos e o padrão de recrutamento muscular; fadiga prévia altera o estado inicial da sessão. Estado de treinamento, adaptações nutricionais e composição de fibras musculares também podem contribuir para diferenças individuais.
A literatura clássica demonstra que desidratação progressiva acentua hipertermia e deriva cardiovascular, enquanto revisões contemporâneas enfatizam que o fenômeno resulta de múltiplas interações hemodinâmicas e autonômicas. Consequentemente, protocolos destinados a quantificar durabilidade precisam padronizar ambiente, ventilação, hidratação, ingestão de carboidratos, estado de glicogênio e fadiga residual.
Quão baixa pode ser a intensidade?
Não existe um limite inferior universal de baixa intensidade que assegure adaptação em qualquer contexto. O estímulo resulta da interação intensidade × duração × estado de treinamento. Uma hora a 50% da FCres e cinco horas na mesma intensidade não constituem doses equivalentes. Da mesma forma, uma sessão longa que representa sobrecarga para um atleta recreacional pode ser apenas manutenção para um atleta altamente treinado.
O problema pode ser formulado como relação dose–resposta. A dose eficiente não é necessariamente a dose máxima. À medida que a sessão se prolonga, o benefício adaptativo potencial tende a apresentar retornos decrescentes, enquanto o custo de recuperação pode aumentar de forma não linear. O objetivo prático é localizar uma duração suficientemente longa para exceder a exposição habitual e gerar sinal adaptativo, mas não tão longa que a deterioração fisiológica e o tempo de recuperação se tornem desproporcionais.
Implicações para prescrição e monitoramento
A baixa intensidade deve ser entendida como uma faixa fisiológica individualizada, preferencialmente delimitada por LT1/VT1 e acompanhada por indicadores de carga interna e percepção. Em sessões prolongadas, a estabilidade da frequência cardíaca em relação à potência ou velocidade oferece informação adicional à intensidade instantânea. O momento em que surge desacoplamento, sua magnitude e sua associação com RPE podem ser acompanhados longitudinalmente como marcadores de durabilidade.
A interpretação, contudo, exige cautela. Um aumento de frequência cardíaca pode refletir calor, desidratação ou baixa disponibilidade de carboidratos, e não necessariamente uma alteração crônica da aptidão. Comparações entre sessões devem ser realizadas sob condições suficientemente padronizadas. Em avaliações seriadas, uma deriva menor, mais tardia ou acompanhada de menor RPE para a mesma carga externa constitui evidência compatível com melhora da durabilidade, desde que os principais fatores de confusão estejam controlados.
Conclusão
O treinamento de baixa intensidade constitui a base volumétrica do desenvolvimento de endurance, mas sua eficácia não pode ser reduzida a uma frequência cardíaca-alvo fixa ou a uma duração arbitrária. A propriedade central é a capacidade de sustentar trabalho sub-limiar com estabilidade do custo fisiológico e perceptivo. A durabilidade emerge, assim, como dimensão complementar ao V̇O₂máx, aos limiares e à economia: ela descreve quanto tempo o fenótipo aeróbico permanece funcionalmente preservado.
O desacoplamento entre carga externa e interna, especialmente quando integrado à RPE, oferece uma estratégia aplicada para quantificar essa resistência à deterioração. A individualização por limiares e reserva de frequência cardíaca, a padronização de fatores ambientais e nutricionais e a análise longitudinal permitem transformar a deriva cardiovascular de uma simples observação em ferramenta de monitoramento. A questão prática deixa de ser apenas “qual é a intensidade correta?” e passa a ser “qual dose de intensidade e duração produz adaptação adicional com custo de recuperação aceitável?”. Essa formulação aproxima a prescrição de endurance de uma verdadeira fisiologia da dose.
Tabela-síntese dos exemplos quantitativos reconstruídos
Durabilidade deve ser distinguida de simples resistência psicológica. Ela pode ser quantificada pela magnitude da deterioração de potência crítica, limiar, economia, V̇O₂, sprint ou outras características após quantidade padronizada de trabalho. O conceito desloca o foco da fisiologia “fresca” para a estabilidade funcional sob fadiga acumulada, aspecto particularmente importante no ciclismo de estrada, triatlo e maratona.
18. Prescrição individualizada: do diagnóstico à iteração
A prescrição contemporânea pode ser sintetizada como um ciclo: definir o objetivo biológico; escolher uma carga externa coerente; selecionar marcadores internos e perceptivos; executar; observar a resposta; interpretar dissociações; ajustar; e repetir. A individualização não significa abandonar modelos, mas utilizá-los como hipóteses operacionais que precisam ser confrontadas com a resposta real do atleta.
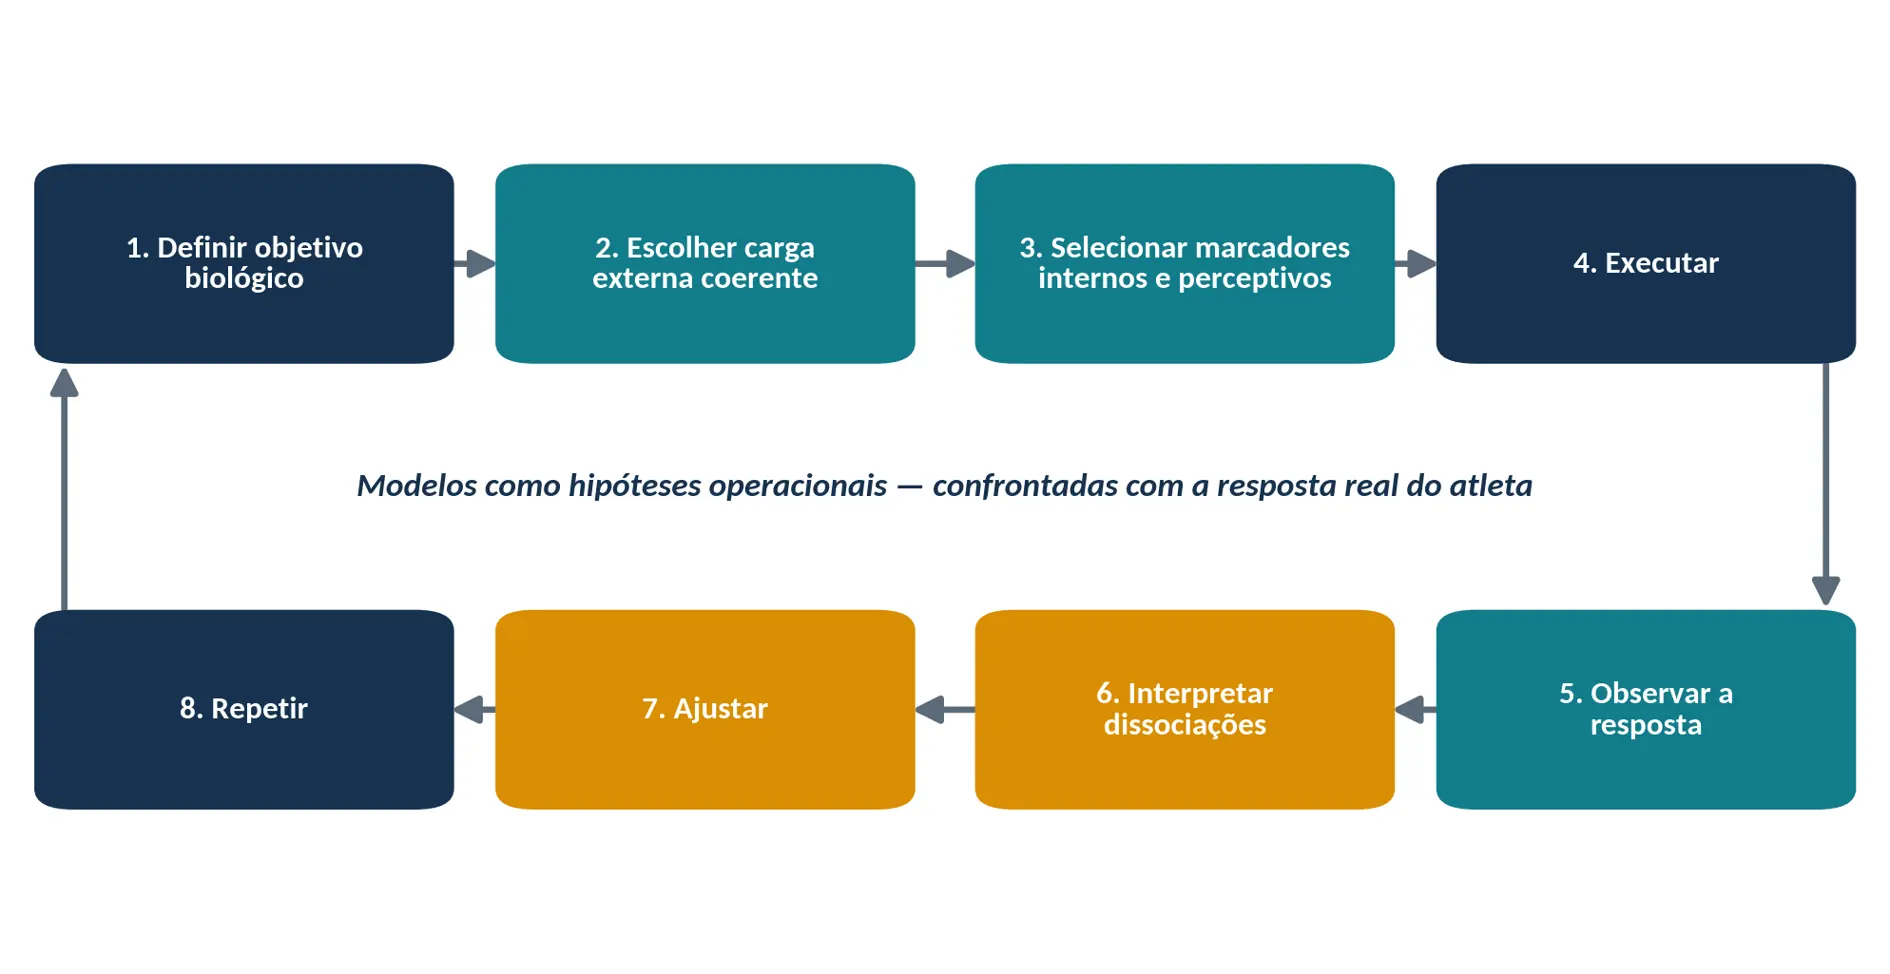
Figura complementar 12 — Ciclo iterativo da prescrição individualizada do treinamento de endurance. Fonte: elaborada com base em Bourdon et al. (2017) e Jamnick et al. (2020).
Tabela 7 — Síntese prática por objetivo biológico
| Objetivo | Estratégia predominante | Marcadores úteis | Risco de interpretação |
| Acumular volume oxidativo | Trabalho prolongado abaixo de LT1 | Potência/ritmo, FC, RPE, lactato ocasional | Transformar “Z2” em intensidade universal |
| Elevar capacidade sustentável | Trabalho próximo/entre limiares conforme objetivo | Potência/ritmo, lactato, FC, ventilação | Confundir LT2, MLSS, CP e FTP como sinônimos |
| Elevar teto aeróbico | Intervalos no domínio severo | VO₂, potência/velocidade, FC, RPE | Supor que apenas atingir FCmáx gera adaptação |
| Desenvolver durabilidade | Longa duração com controle de desacoplamento | Potência/ritmo, FC, VO₂, RPE, desempenho pós-fadiga | Avaliar apenas o estado fresco |
| Controlar recuperação | Distribuir estresse e preservar repetibilidade | RPE, FC/HRV, desempenho, sono/contexto | Depender de um único marcador |
Síntese final — Prescrever o estímulo, não apenas a zona
A fisiologia do endurance é melhor compreendida como uma rede de relações entre demanda mecânica, turnover de ATP, recrutamento muscular, fluxo glicolítico e oxidativo, transporte de O₂, metabolismo do lactato, homeostase ácido-base, controle ventilatório, sinalização celular, remodelamento mitocondrial e microvascular, estresse sistêmico e recuperação. Zonas e limiares são ferramentas que tornam esse sistema manejável, mas não substituem o raciocínio fisiológico.
O ponto central para avaliação e treinamento é a coerência entre objetivo, dose e resposta. Baixa intensidade permite acumular grande quantidade de trabalho com custo relativo menor; intensidades intermediárias e altas aumentam o fluxo metabólico, o recrutamento e o estímulo cardiorrespiratório, mas também elevam o custo de recuperação. Nenhuma intensidade monopoliza as adaptações. A excelência emerge da combinação entre estímulos parcialmente sobrepostos, organizados de forma sustentável e ajustados à modalidade, ao atleta e ao momento da preparação.
Referências
AHMED, K. et al. An autocrine lactate loop mediates insulin-dependent inhibition of lipolysis through GPR81. Cell Metabolism, v. 11, n. 4, p. 311–319, 2010.
ALLEN, David G.; LAMB, Graham D.; WESTERBLAD, Håkan. Skeletal muscle fatigue: cellular mechanisms. Physiological Reviews, v. 88, n. 1, p. 287–332, 2008. DOI: 10.1152/physrev.00015.2007.
AMANN, M.; SECHER, N. H. Point: afferent feedback from fatigued locomotor muscles is an important determinant of endurance exercise performance. Journal of Applied Physiology, Bethesda, v. 108, n. 2, p. 452-454, 2010.
AMANN, Markus; BLAIN, Gregory M.; PROCTOR, Lester T.; SEBRANEK, Joshua J.; PEGELOW, David F.; DEMPSEY, Jerome A. Group III and IV muscle afferents contribute to ventilatory and cardiovascular response to rhythmic exercise in humans. Journal of Applied Physiology, v. 109, n. 4, p. 966–976, 2010. DOI: 10.1152/japplphysiol.00462.2010.
ARCOVERDE-MELLO, A. P. et al. Twice-a-day exercise increases acute MCT1 gene expression in skeletal muscle but does not change the lactate curve after 3 weeks of training in adult men. Brazilian Journal of Medical and Biological Research, 2025.
BARTOLONI, B.; MANNELLI, M.; GAMBERI, T.; FIASCHI, T. The multiple roles of lactate in the skeletal muscle. Cells, v. 13, n. 14, p. 1177, 2024.
BARTOLONI, Bianca; MANNELLI, Michele; GAMBERI, Tania; FIASCHI, Tania. The multiple roles of lactate in the skeletal muscle. Cells, Basel, v. 13, n. 14, art. 1177, 2024. DOI: 10.3390/cells13141177.
BASSETT, D. R.; HOWLEY, E. T. Limiting factors for maximum oxygen uptake and determinants of endurance performance. Medicine & Science in Sports & Exercise, Hagerstown, v. 32, n. 1, p. 70-84, 2000.
BASSETT, D. R.; HOWLEY, E. T. Limiting factors for maximum oxygen uptake and determinants of endurance performance. Medicine & Science in Sports & Exercise, v. 32, n. 1, p. 70-84, 2000.
BEAVER, W. L.; WASSERMAN, K.; WHIPP, B. J. A new method for detecting anaerobic threshold by gas exchange. Journal of Applied Physiology, Bethesda, v. 60, n. 6, p. 2020-2027, 1986.
BEAVER, W. L.; WASSERMAN, K.; WHIPP, B. J. A new method for detecting anaerobic threshold by gas exchange. Journal of Applied Physiology, v. 60, n. 6, p. 2020–2027, 1986.
BEAVER, W. L.; WASSERMAN, K.; WHIPP, B. J. A new method for detecting anaerobic threshold by gas exchange. Journal of Applied Physiology, v. 60, n. 6, p. 2020–2027, 1986. DOI: 10.1152/jappl.1986.60.6.2020.
BEAVER, William L.; WASSERMAN, Karlman; WHIPP, Brian J. A new method for detecting anaerobic threshold by gas exchange. Journal of Applied Physiology, v. 60, n. 6, p. 2020–2027, 1986.
BENEKE, R. Methodological aspects of maximal lactate steady state: implications for performance. European Journal of Applied Physiology, Berlin, v. 89, n. 1, p. 95-99, 2003.
BENEKE, R. Methodological aspects of maximal lactate steady state: implications for performance. European Journal of Applied Physiology, v. 89, n. 1, p. 95-99, 2003.
BENÍTEZ-MUÑOZ, J. A. et al. Exercise influence on monocarboxylate transporter 1 (MCT1) and 4 (MCT4) in the skeletal muscle: a systematic review. Acta Physiologica, v. 240, n. 3, e14083, 2024.
BERNINI, A. et al. Hypertonic lactate for the treatment of intracranial hypertension in patients with acute brain injury. Scientific Reports, v. 12, n. 3035, 2022.
BILLAT, L. V. Use of blood lactate measurements for prediction of exercise performance and for control of training: recommendations for long-distance running. Sports Medicine, v. 22, n. 3, p. 157–175, 1996.
BISHOP, David J.; GRANATA, Cesare; EYNON, Nir. Can we optimise the exercise training prescription to maximise improvements in mitochondria function and content? Biochimica et Biophysica Acta – General Subjects, v. 1840, n. 4, p. 1266–1275, 2014. DOI: 10.1016/j.bbagen.2013.10.012.
BONEN, A. The expression of lactate transporters (MCT1 and MCT4) in heart and muscle. European Journal of Applied Physiology, Berlin, v. 86, n. 1, p. 6-11, 2001.
BONEN, A. The expression of lactate transporters (MCT1 and MCT4) in heart and muscle. European Journal of Applied Physiology, v. 86, n. 1, p. 6-11, 2001.
BOURDON, P. C. et al. Monitoring athlete training loads: consensus statement. International Journal of Sports Physiology and Performance, Champaign, v. 12, supl. 2, p. S2-161-S2-170, 2017.
BRAND, M. D. et al. Uncoupling protein-3 lowers reactive oxygen species production in isolated mitochondria. Free Radical Biology and Medicine, v. 49, n. 4, p. 606–611, 2010. DOI: 10.1016/j.freeradbiomed.2010.05.010.
BROOKS, G. A. et al. Lactate in contemporary biology: a phoenix risen. Journal of Physiology, v. 600, n. 5, p. 1229–1251, 2021.
BROOKS, G. A. et al. Postprandial lactate production and shuttling. Nature Metabolism, v. 6, n. 4, p. 670–677, 2024.
BROOKS, G. A. et al. Role of mitochondrial lactate dehydrogenase and lactate oxidation in the intracellular lactate shuttle. Proceedings of the National Academy of Sciences, v. 96, n. 3, p. 1129–1134, 1999.
BROOKS, G. A. Intra- and extra-cellular lactate shuttles. Medicine & Science in Sports & Exercise, v. 32, n. 4, p. 790–799, 2000.
BROOKS, G. A. Intra- and extra-cellular lactate shuttles. Medicine & Science in Sports & Exercise, v. 32, n. 4, p. 790–799, 2000. DOI: 10.1097/00005768-200004000-00011.
BROOKS, G. A. Lactate in contemporary biology: a phoenix risen. The Journal of Physiology, v. 600, n. 4, p. 863–888, 2022.
BROOKS, G. A. Lactate: glycolytic product and oxidative substrate during sustained exercise in mammals—the “lactate shuttle”. In: GILLES, R. (ed.). Circulation, respiration, and metabolism. Berlin: Springer-Verlag, 1985. p. 208-218.
BROOKS, G. A. The lactate shuttle during exercise and recovery. Medicine & Science in Sports & Exercise, v. 18, n. 3, p. 360–368, 1986.
BROOKS, G. A. The lactate shuttle during exercise and recovery. Medicine & Science in Sports & Exercise, v. 18, n. 3, p. 360–368, 1986. DOI: 10.1249/00005768-198606000-00019.
BROOKS, G. A. The Science and Translation of Lactate Shuttle Theory. Cell Metabolism, v. 27, n. 4, p. 757–785, 2018.
BROOKS, G. A. The science and translation of lactate shuttle theory. Cell Metabolism, v. 27, n. 4, p. 757–785, 2018. DOI: 10.1016/j.cmet.2018.03.008.
BROOKS, G. A. The science and translation of the lactate shuttle theory. Cell Metabolism, Cambridge, v. 27, n. 4, p. 757-785, 2018.
BROOKS, G. A. The science and translation of the lactate shuttle theory. Cell Metabolism, v. 27, n. 4, p. 757-785, 2018.
BROOKS, G. A.; BROWN, M. A.; BUTZ, C. E.; SICURELLO, J. P.; DUBOUCHAUD, H. Cardiac and skeletal muscle mitochondria have a monocarboxylate transporter MCT1. Journal of Applied Physiology, v. 87, n. 5, p. 1713–1718, 1999.
BROOKS, G. A.; MERCIER, J. Balance of carbohydrate and lipid utilization during exercise: the “crossover” concept. Journal of Applied Physiology, v. 76, n. 6, p. 2253–2261, 1994.
BROOKS, George A. Cell-cell and intracellular lactate shuttles. The Journal of Physiology, v. 587, n. 23, p. 5591–5600, 2009.
BROOKS, George A. The science and translation of lactate shuttle theory. Cell Metabolism, v. 27, n. 4, p. 757–785, 2018. DOI: 10.1016/j.cmet.2018.03.008.
BUCHHEIT, M. Monitoring training status with HR measures: do all roads lead to Rome? Frontiers in Physiology, Lausanne, v. 5, art. 73, 2014.
BUCHHEIT, M.; LAURSEN, P. B. High-intensity interval training, solutions to the programming puzzle: Part I. Cardiopulmonary emphasis. Sports Medicine, Auckland, v. 43, n. 5, p. 313-338, 2013.
BUCHHEIT, M.; LAURSEN, P. B. High-intensity interval training, solutions to the programming puzzle: Part I. Cardiopulmonary emphasis. Sports Medicine, v. 43, n. 5, p. 313-338, 2013.
BURNLEY, M.; JONES, A. M. Oxygen uptake kinetics as a determinant of sports performance. European Journal of Sport Science, Abingdon, v. 7, n. 2, p. 63-79, 2007.
BURNLEY, M.; JONES, A. M. Oxygen uptake kinetics as a determinant of sports performance. European Journal of Sport Science, v. 7, n. 2, p. 63-79, 2007.
CASADO, A.; FOSTER, C.; BAKKEN, M.; TJELTA, L. I. Does lactate-guided threshold interval training within a high-volume low-intensity approach represent the “next step” in the evolution of distance running training? International Journal of Environmental Research and Public Health, v. 20, p. 3782, 2023.
CHAROENSAP, T. et al. Plasma heat shock protein-70 response to acute prolonged exercise: a systematic review, meta-analysis, and meta-regression. Journal of Applied Physiology, v. 140, n. 2, p. 398–414, 2026. DOI: 10.1152/japplphysiol.00859.2025.
CHAROENSAP, T.; KILDING, A. E.; BARRETT, A. M. S.; CROSS, M. R.; STEWART, T.; MAUNDER, E. Plasma heat shock protein-70 response to acute prolonged exercise: a systematic review, meta-analysis, and meta-regression. Journal of Applied Physiology, v. 140, n. 2, p. 398–414, 2026. DOI: 10.1152/japplphysiol.00859.2025.
CHEN, Y. et al. Lactate transported by MCT1 plays an active role in promoting mitochondrial biogenesis and enhancing TCA flux in skeletal muscle. 2024.
CHEUVRONT, S. N.; HAYMES, E. M. Thermoregulation and marathon running: biological and environmental influences. Sports Medicine, Auckland, v. 31, n. 10, p. 743-762, 2001.
CONCONI, F.; FERRARI, M.; ZIGLIO, P. G.; DROGHETTI, P.; CODECA, L. Determination of the anaerobic threshold by a noninvasive field test in runners. Journal of Applied Physiology, v. 52, n. 4, p. 869–873, 1982.
CORI, C. F.; CORI, G. T. Glycogen formation in the liver from d- and l-lactic acid. Journal of Biological Chemistry, v. 81, n. 2, p. 389–403, 1929.
COYLE, E. F. Cardiovascular drift during prolonged exercise and the effects of dehydration. International Journal of Sports Medicine, v. 19, supl. 2, p. S121–S124, 1998. DOI: 10.1055/s-2007-971975.
COYLE, E. F.; GONZÁLEZ-ALONSO, J. Cardiovascular drift during prolonged exercise: new perspectives. Exercise and Sport Sciences Reviews, v. 29, n. 2, p. 88–92, 2001. DOI: 10.1097/00003677-200104000-00009.
DARTIGUELONGUE, J. B. Biological significance and clinical utility of lactate in sepsis. Archivos Argentinos de Pediatría, v. 122, n. 2, e202310149, 2024.
DERAVE, Wim et al. β-Alanine supplementation augments muscle carnosine content and attenuates fatigue during repeated isokinetic contraction bouts in trained sprinters. Journal of Applied Physiology, v. 103, n. 5, p. 1736–1743, 2007.
DRAKE, J. C.; WILSON, R. J.; YAN, Z. Molecular mechanisms for mitochondrial adaptation to exercise training in skeletal muscle. FASEB Journal, v. 30, p. 13–22, 2016.
DUBOUCHAUD, H. et al. Endurance training, expression, and physiology of LDH, MCT1, and MCT4 in human skeletal muscle. American Journal of Physiology-Endocrinology and Metabolism, v. 278, n. 4, p. E571–E579, 2000.
DUBOUCHAUD, Hervé; BUTTERFIELD, Gail E.; WOLFEL, Eugene E.; BERGMAN, Bryan C.; BROOKS, George A. Endurance training, expression, and physiology of LDH, MCT1, and MCT4 in human skeletal muscle. American Journal of Physiology-Endocrinology and Metabolism, Bethesda, v. 278, n. 4, p. E571-E579, 2000. DOI: 10.1152/ajpendo.2000.278.4.E571.
EDGE, Johann; BISHOP, David; GOODMAN, Carmel. The effects of training intensity on muscle buffer capacity in females. European Journal of Applied Physiology, v. 96, n. 1, p. 97–105, 2006. DOI: 10.1007/s00421-005-0068-6.
ENOKA, R. M.; DUCHATEAU, J. Rate coding and the control of muscle force. Cold Spring Harbor Perspectives in Medicine, Cold Spring Harbor, v. 7, n. 10, e a029702, 2017.
ENOKA, R. M.; DUCHATEAU, J. Rate coding and the control of muscle force. Cold Spring Harbor Perspectives in Medicine, v. 7, n. 10, e a029702, 2017.
ESTEVE-LANAO, J.; FOSTER, C.; SEILER, S.; LUCIA, A. Impact of training intensity distribution on performance in endurance athletes. Journal of Strength and Conditioning Research, v. 21, n. 3, p. 943-949, 2007. DOI: 10.1519/R-19725.1.
FAUDE, O.; KINDERMANN, W.; MEYER, T. Lactate threshold concepts: how valid are they? Sports Medicine, 2009.
FAUDE, O.; KINDERMANN, W.; MEYER, T. Lactate threshold concepts: how valid are they? Sports Medicine, Auckland, v. 39, n. 6, p. 469-490, 2009.
FAUDE, O.; KINDERMANN, W.; MEYER, T. Lactate threshold concepts: how valid are they? Sports Medicine, v. 39, n. 6, p. 469-490, 2009.
FELMLEE, M. A. et al. Monocarboxylate Transporters (SLC16): Function, Regulation, and Role in Health and Disease. Pharmacological Reviews, v. 72, n. 2, p. 466–485, 2020.
FERGUSON, B. S. et al. Lactate metabolism: historical context, prior misinterpretations, and current understanding. European Journal of Applied Physiology, v. 118, n. 4, p. 691–728, 2018.
FERRARI, M.; QUARESIMA, V. A brief review on the history of human functional near-infrared spectroscopy (fNIRS) development and fields of application. NeuroImage, Amsterdam, v. 63, n. 2, p. 921-935, 2012.
FLETCHER, W. M.; HOPKINS, F. G. Lactic acid in amphibian muscle. Journal of Physiology, v. 35, n. 4, p. 247–309, 1907.
GIBALA, M. J. et al. Physiological adaptations to interval training and the role of exercise intensity. The Journal of Physiology, v. 595, n. 9, p. 2915–2930, 2017.
GLADDEN, L. B. Lactate metabolism: a new paradigm for the third millennium. The Journal of Physiology, London, v. 558, pt. 1, p. 5-30, 2004.
GLADDEN, L. B. Lactate metabolism: a new paradigm for the third millennium. The Journal of Physiology, v. 558, pt. 1, p. 5-30, 2004.
GLADDEN, L. Bruce. Lactate metabolism: a new paradigm for the third millennium. The Journal of Physiology, v. 558, n. 1, p. 5–30, 2004.
GLENN, T. C. et al. Endogenous nutritive support after traumatic brain injury: peripheral lactate production for glucose supply via gluconeogenesis. Journal of Neurotrauma, v. 32, n. 11, p. 811–819, 2015.
GONZÁLEZ-ALONSO, J. et al. Influence of graded dehydration on hyperthermia and cardiovascular drift during exercise. Journal of Applied Physiology, v. 73, n. 4, p. 1340–1350, 1992. DOI: 10.1152/jappl.1992.73.4.1340.
GOTO, C. et al. Effect of different intensities of exercise on endothelium-dependent vasodilation in humans: role of endothelium-dependent nitric oxide and oxidative stress. Circulation, v. 108, n. 5, p. 530–535, 2003. DOI: 10.1161/01.CIR.0000080893.55729.28.
GRANATA, Cesare; JAMNICK, Nicholas A.; BISHOP, David J. Principles of exercise prescription, and how they influence exercise-induced changes of transcription factors and other regulators of mitochondrial biogenesis. Sports Medicine, v. 48, p. 1541–1559, 2018.
GRANATA, Cesare; OLIVEIRA, Rodrigo S. F.; LITTLE, Jonathan P.; RENNER, Kathrin; BISHOP, David J. Training intensity modulates changes in PGC-1α and p53 protein content and mitochondrial respiration, but not markers of mitochondrial content in human skeletal muscle. FASEB Journal, v. 30, n. 2, p. 959–970, 2016. DOI: 10.1096/fj.15-276907.
HALESTRAP, A. P. Monocarboxylic acid transport. Comprehensive Physiology, v. 3, n. 4, p. 1611–1643, 2013.
HALESTRAP, A. P.; PRICE, N. T. Lactate transport in skeletal muscle: role and regulation of the monocarboxylate transporter. Physiological Reviews, v. 79, n. 2, p. 511–548, 1999.
HALESTRAP, A. P.; PRICE, N. T. The proton-linked monocarboxylate transporter (MCT) family: structure, function and regulation. Biochemical Journal, London, v. 343, pt. 2, p. 281-299, 1999.
HARRIS, Roger C. et al. The absorption of orally supplied β-alanine and its effect on muscle carnosine synthesis in human vastus lateralis. Amino Acids, v. 30, p. 279–289, 2006.
HASHIMOTO, T.; HUSSIEN, R.; BROOKS, G. A. Colocalization of MCT1, CD147, and LDH in mitochondrial inner membrane of L6 muscle cells: evidence of a mitochondrial lactate oxidation complex. American Journal of Physiology-Endocrinology and Metabolism, v. 290, n. 6, p. E1237–E1244, 2006.
HASHIMOTO, Takeshi et al. Lactate sensitive transcription factor network in L6 cells: activation of MCT1 and mitochondrial biogenesis. FASEB Journal, v. 21, n. 10, p. 2602–2612, 2007.
HASHIMOTO, Takeshi; HUSSIEN, Rajaa; BROOKS, George A. Colocalization of MCT1, CD147, and LDH in mitochondrial inner membrane of L6 muscle cells: evidence of a mitochondrial lactate oxidation complex. American Journal of Physiology-Endocrinology and Metabolism, Bethesda, v. 290, n. 6, p. E1237-E1244, 2006. DOI: 10.1152/ajpendo.00594.2005.
HASHIMOTO, Takeshi; HUSSIEN, Rima; BROOKS, George A. Colocalization of MCT1, CD147, and LDH in mitochondrial inner membrane of L6 muscle cells: evidence of a mitochondrial lactate oxidation complex. American Journal of Physiology-Endocrinology and Metabolism, v. 290, n. 6, p. E1237–E1244, 2006.
HECK, H. et al. Justification of the 4-mmol/l lactate threshold. International Journal of Sports Medicine, Stuttgart, v. 6, n. 3, p. 117-130, 1985.
HECK, H. et al. Justification of the 4-mmol/l lactate threshold. International Journal of Sports Medicine, v. 6, n. 3, p. 117-130, 1985.
HENSTRIDGE, D. C.; FEBBRAIO, M. A.; HARGREAVES, M. Heat shock proteins and exercise adaptations: our knowledge thus far and the road still ahead. Journal of Applied Physiology, v. 120, n. 6, p. 683–691, 2016. DOI: 10.1152/japplphysiol.00811.2015.
HEW-BUTLER, Tamara et al. Statement of the Third International Exercise-Associated Hyponatremia Consensus Development Conference, Carlsbad, California, 2015. Clinical Journal of Sport Medicine, v. 25, n. 4, p. 303–320, 2015.
HILL, A. V.; LONG, C. N. H.; LUPTON, H. Muscular exercise, lactic acid, and the supply and utilization of oxygen. Proceedings of the Royal Society B, v. 96–97, p. 438–475, 1923–1924.
HODSON-TOLE, Emma F.; WAKELING, James M. Motor unit recruitment for dynamic tasks: current understanding and future directions. Journal of Comparative Physiology B, v. 179, p. 57–66, 2009.
HOEG, T. B.; MAFFETONE, P. The development and initial assessment of a novel heart rate training formula. Wilderness & Environmental Medicine, v. 26, n. 4, p. e5, 2015.
HOFMANN, P.; TSCHAKERT, G. Intensity- and duration-based options to regulate endurance training. Frontiers in Physiology, v. 8, art. 337, 2017. DOI: 10.3389/fphys.2017.00337.
HOIER, Birgitte; PASSOS, Madla; BANGSBO, Jens; HELLSTEN, Ylva. Intense intermittent exercise provides weak stimulus for vascular endothelial growth factor secretion and capillary growth in skeletal muscle. Experimental Physiology, London, v. 98, n. 2, p. 585-597, 2013. DOI: 10.1113/expphysiol.2012.067967.
HUERTAS, Jesús R.; CASUSO, Rafael A.; HERNANSANZ AGUSTÍN, Pablo; COGLIATI, Sara. Stay fit, stay young: mitochondria in movement: the role of exercise in the new mitochondrial paradigm. Oxidative Medicine and Cellular Longevity, [s. l.], v. 2019, art. 7058350, 2019. DOI: 10.1155/2019/7058350.
JACOBS, R. A. et al. Lactate oxidation in human skeletal muscle mitochondria. American Journal of Physiology-Endocrinology and Metabolism, v. 304, n. 7, p. E686–E694, 2013.
JACOBS, Robert A.; MEINILD, Anne-Kristine; NORDSBORG, Nikolai B.; LUNDBY, Carsten. Lactate oxidation in human skeletal muscle mitochondria. American Journal of Physiology-Endocrinology and Metabolism, Bethesda, v. 304, n. 7, p. E686-E694, 2013. DOI: 10.1152/ajpendo.00476.2012.
JAMNICK, N. A.; PETTITT, R. W.; GRANATA, C.; PYNE, D. B.; BISHOP, D. J. An examination and critique of current methods to determine exercise intensity. Sports Medicine, v. 50, p. 1729-1756, 2020. DOI: 10.1007/s40279-020-01322-8.
JAMNICK, Nicholas A.; PETTITT, Robert W.; GRANATA, Cesare; PYNE, David B.; BISHOP, David J. An examination and critique of current methods to determine exercise intensity. Sports Medicine, v. 50, p. 1729–1756, 2020.
JENSEN, Lotte; BANGSBO, Jens; HELLSTEN, Ylva. Effect of high intensity training on capillarization and presence of angiogenic factors in human skeletal muscle. The Journal of Physiology, London, v. 557, pt. 2, p. 571-582, 2004. DOI: 10.1113/jphysiol.2003.057711.
JONES, A. M. et al. The slow component of VO₂ kinetics: mechanistic bases and practical applications. Medicine & Science in Sports & Exercise, v. 43, 2011. DOI: 10.1249/MSS.0b013e31821fcfc1.
JONES, A. M. The physiology of the world record holder for the women’s marathon. International Journal of Sports Science & Coaching, v. 1, n. 2, p. 101-116, 2006. DOI: 10.1260/174795406777641258.
JONES, A. M.; VARDAS, A.; DOUGLASS, J. A. Critical power: physiology and applications. Sports Medicine, Auckland, 2023.
JOYNER, M. J.; COYLE, E. F. Endurance exercise performance: the physiology of champions. The Journal of Physiology, London, v. 586, n. 1, p. 35-44, 2008.
JOYNER, M. J.; COYLE, E. F. Endurance exercise performance: the physiology of champions. The Journal of Physiology, v. 586, n. 1, p. 35-44, 2008.
JUEL, C.; HALESTRAP, A. P. Lactate transport in skeletal muscle: role and regulation of the monocarboxylate transporter. The Journal of Physiology, v. 517, n. 3, p. 633–642, 1999.
JUEL, Carsten. Lactate/proton co-transport in skeletal muscle: regulation and importance for pH homeostasis. Acta Physiologica Scandinavica, v. 156, n. 3, p. 369–374, 1996.
JUEL, Carsten. Regulation of pH in human skeletal muscle: adaptations to physical activity. Acta Physiologica, v. 193, n. 1, p. 17–24, 2008. DOI: 10.1111/j.1748-1716.2008.01840.x.
KANE, D. A. Lactate oxidation at the mitochondria: a lactate-malate-aspartate shuttle at work. Frontiers in Neuroscience, v. 8, art. 366, 2014.
KARVONEN, J.; VUORIMAA, T. Heart rate and exercise intensity during sports activities: practical application. Sports Medicine, v. 5, n. 5, p. 303–311, 1988. DOI: 10.2165/00007256-198805050-00002.
KEIR, D. A. et al. Methodological considerations for determining the maximal lactate steady state in cycling. Journal of Applied Physiology, Bethesda, v. 119, n. 4, p. 463-472, 2015.
KEMP, G. J. Lactate accumulation, proton buffering, and pH change in ischaemic muscle. American Journal of Physiology: Regulatory, Integrative and Comparative Physiology, Bethesda, v. 289, n. 4, p. R895-R901, 2005.
KITAOKA, Y.; HOSHINO, D.; HATTA, H. Monocarboxylate transporter and lactate metabolism. Journal of Physical Fitness and Sports Medicine, v. 1, n. 2, p. 247–252, 2012.
KITAOKA, Y.; TAKAHASHI, K.; HATTA, H. Inhibition of monocarboxylate transporters (MCT) 1 and 4 reduces exercise capacity in mice. Physiological Reports, v. 10, n. 17, e15457, 2022.
KOH, T. J. Response and function of skeletal muscle heat shock protein 70. Frontiers in Bioscience, v. 7, p. d1258–d1267, 2002. DOI: 10.2741/2011.
KOH, T. J.; STEINER, P. M. Hsp70 expression in human skeletal muscle after exercise. Acta Physiologica Scandinavica, v. 157, n. 4, p. 347–350, 1996. DOI: 10.1046/j.1365-201X.1996.512270000.x.
KOWALCHUK, J. M. et al. Factors influencing hydrogen ion concentration in muscle after intense exercise. Journal of Applied Physiology, v. 65, n. 5, p. 2080–2089, 1988.
LITTLE, J. P. et al. A practical model of low-volume high-intensity interval training induces mitochondrial biogenesis in human skeletal muscle: potential mechanisms. The Journal of Physiology, v. 588, n. 6, p. 1011–1022, 2010. DOI: 10.1113/jphysiol.2009.181743.
LIU, Y.; CHRISTENSEN, P. M.; HELLSTEN, Y.; GLIEMANN, L. Effects of exercise training intensity and duration on skeletal muscle capillarization in healthy subjects: a meta-analysis. Medicine & Science in Sports & Exercise, v. 54, p. 1714–1728, 2022. DOI: 10.1249/MSS.0000000000002955.
LIU, Yujia; CHRISTENSEN, Peter M.; HELLSTEN, Ylva; GLIEMANN, Lasse. Effects of exercise training intensity and duration on skeletal muscle capillarization in healthy subjects: a meta-analysis. Medicine & Science in Sports & Exercise, Indianapolis, v. 54, n. 10, p. 1714-1728, 2022. DOI: 10.1249/MSS.0000000000002955.
LOAT, C. E. R.; RHODES, E. C. Relationship between the lactate and ventilatory thresholds during prolonged exercise. Sports Medicine, v. 15, n. 2, p. 104–115, 1993.
MACINNIS, M. J.; GIBALA, M. J. Physiological adaptations to interval training and the role of exercise intensity. The Journal of Physiology, 2017.
MANN, T. N.; LAMBERTS, R. P.; LAMBERT, M. I. Methods of prescribing relative exercise intensity: physiological and practical considerations. Sports Medicine, v. 43, p. 613–625, 2013.
MANN, T.; LAMBERTS, R. P.; LAMBERT, M. I. Methods of prescribing relative exercise intensity: physiological and practical considerations. Sports Medicine, v. 43, n. 7, p. 613–625, 2013. DOI: 10.1007/s40279-013-0045-x.
MAUGUIN, D. et al. The concept of durability in endurance exercise: a narrative review. Sports Medicine, Auckland, 2023.
MAUNDER, E. et al. The importance of “durability” in the physiological profiling of endurance athletes. Sports Medicine, v. 51, p. 1619-1628, 2021.
MAUNDER, E.; SEILER, S.; MILDENHALL, M. J.; KILDING, A. E.; PLEWS, D. J. The importance of ‘durability’ in the physiological profiling of endurance athletes. Sports Medicine, v. 51, n. 8, p. 1619-1628, 2021. DOI: 10.1007/s40279-021-01459-0.
MOUNTJOY, M. et al. 2023 International Olympic Committee’s consensus statement on Relative Energy Deficiency in Sport (REDs). British Journal of Sports Medicine, v. 57, n. 17, p. 1073–1097, 2023. DOI: 10.1136/bjsports-2023-106994.
MUJIKA, I. Intense training: the key to optimal performance before and during the taper. Scandinavian Journal of Medicine & Science in Sports, Copenhagen, v. 20, supl. 2, p. 24-31, 2010.
MØLMEN, K. S.; ALMQUIST, N. W.; SKATTEBO, Ø. Effects of exercise training on mitochondrial and capillary growth in human skeletal muscle: a systematic review and meta-regression. Sports Medicine, v. 55, p. 115–144, 2025. DOI: 10.1007/s40279-024-02120-2.
MØLMEN, K. S.; ALMQUIST, N. W.; SKATTEBØ, Ø. et al. Effects of exercise training on mitochondrial and capillary growth in human skeletal muscle: a systematic review and meta-regression. Sports Medicine, v. 55, p. 115–144, 2025. DOI: 10.1007/s40279-024-02120-2.
NØST, H. L.; AUNE, M. A.; VAN DEN TILLAAR, R. The effect of polarized training intensity distribution on maximal oxygen uptake and work economy among endurance athletes: a systematic review. Sports, v. 12, n. 12, 326, 2024. DOI: 10.3390/sports12120326.
OLIVEIRA, P. S.; BOPPRE, G.; FONSECA, H. Comparison of polarized versus other types of endurance training intensity distribution on athletes’ endurance performance: a systematic review with meta-analysis. Sports Medicine, v. 54, p. 2071–2095, 2024. DOI: 10.1007/s40279-024-02034-z.
PERREY, S.; FERRARI, M. Muscle oximetry in sports science: a systematic review. Sports Medicine, Auckland, v. 48, n. 3, p. 597-616, 2018.
PERRY, C. G. R. et al. Repeated transient mRNA bursts precede increases in transcriptional and mitochondrial proteins during training in human skeletal muscle. The Journal of Physiology, London, v. 588, n. 23, p. 4795-4810, 2010.
PILEGAARD, H. et al. High-intensity exercise induces transcription of the lactate/H⁺ transporter MCT4 and increases MCT4 mRNA in human skeletal muscle. American Journal of Physiology-Endocrinology and Metabolism, Bethesda, v. 276, n. 5, p. E802-E809, 1999.
PILEGAARD, Henriette; TERZIS, Gerasimos; HALESTRAP, Andrew; JUEL, Carsten. Distribution of the lactate/H+ transporter isoforms MCT1 and MCT4 in human skeletal muscle. American Journal of Physiology-Endocrinology and Metabolism, Bethesda, v. 276, n. 5, p. E843-E848, 1999. DOI: 10.1152/ajpendo.1999.276.5.E843.
PONTZER, H. et al. Constrained total energy expenditure and metabolic adaptation to physical activity in adult humans. Current Biology, v. 26, n. 3, p. 410–417, 2016. DOI: 10.1016/j.cub.2015.12.046.
POOLE, D. C.; BURNLEY, M.; VANHATALO, A.; ROSSITER, H. B.; JONES, A. M. Critical power: an important fatigue threshold in exercise physiology. Medicine & Science in Sports & Exercise, v. 48, n. 11, p. 2320–2334, 2016. DOI: 10.1249/MSS.0000000000000939.
POOLE, D. C.; BURNLEY, M.; VICIANA, J.; JONES, A. M. Critical power: an important fatigue threshold in exercise physiology. Medicine & Science in Sports & Exercise, v. 48, n. 11, p. 2320–2334, 2016.
POOLE, D. C.; ROSSITER, H. B.; BROOKS, G. A.; GLADDEN, L. B. Oxygen flux in muscle and the regulation of mitochondrial oxidative phosphorylation. Medicine & Science in Sports & Exercise, 2021.
POOLE, David C.; JONES, Andrew M. Oxygen uptake kinetics. Comprehensive Physiology, v. 2, p. 933–996, 2012.
POWERS, S. K.; JACKSON, M. J. Exercise-induced oxidative stress: cellular mechanisms and impact on muscle force production. Physiological Reviews, v. 88, n. 4, p. 1243–1276, 2008.
RACINAIS, S. et al. Consensus recommendations on training and competing in the heat. Scandinavian Journal of Medicine & Science in Sports, Copenhagen, v. 25, supl. 1, p. 6-19, 2015.
RASMUSSEN, Hans N.; VAN HALL, Gerrit; RASMUSSEN, Ulla F. Lactate dehydrogenase is not a mitochondrial enzyme in human and mouse vastus lateralis muscle. The Journal of Physiology, London, v. 541, pt. 2, p. 575-580, 2002. DOI: 10.1113/jphysiol.2002.019216.
REISMAN, E. G.; HAWLEY, J. A.; HOFFMAN, N. J. Exercise-regulated mitochondrial and nuclear signalling networks in skeletal muscle. Sports Medicine, v. 54, p. 1097–1119, 2024. DOI: 10.1007/s40279-024-02007-2.
REISMAN, Elizabeth G.; HAWLEY, John A.; HOFFMAN, Nolan J. Exercise-regulated mitochondrial and nuclear signalling networks in skeletal muscle. Sports Medicine, Auckland, v. 54, p. 1097-1119, 2024. DOI: 10.1007/s40279-024-02007-2.
ROBERGS, R. A.; GHIASVAND, F.; PARKER, D. Biochemistry of exercise-induced metabolic acidosis. American Journal of Physiology: Regulatory, Integrative and Comparative Physiology, Bethesda, v. 287, n. 3, p. R502-R516, 2004.
ROBERGS, Robert A.; GHIASVAND, Farzenah; PARKER, Daryl. Biochemistry of exercise-induced metabolic acidosis. American Journal of Physiology-Regulatory, Integrative and Comparative Physiology, v. 287, n. 3, p. R502–R516, 2004.
ROGATZKI, M. J. et al. Lactate is always the end product of glycolysis. Frontiers in Neuroscience, v. 9, art. 22, 2015.
ROSENBLAT, M. A. et al. Training intensity distribution in endurance athletes: a systematic review and meta-analysis. Sports Medicine, Auckland, v. 49, n. 7, p. 1159-1177, 2019.
ROSS, M.; KARGL, C. K.; FERGUSON, R.; GAVIN, T. P.; HELLSTEN, Y. Exercise-induced skeletal muscle angiogenesis: impact of age, sex, angiocrines and cellular mediators. European Journal of Applied Physiology, v. 123, p. 1415–1432, 2023. DOI: 10.1007/s00421-022-05128-6.
RUSSELL, A. P. et al. UCP3 protein regulation in human skeletal muscle fibre types I, IIa and IIx is dependent on exercise intensity. The Journal of Physiology, 2003. DOI: 10.1113/jphysiol.2003.044701.
SAHLIN, K. et al. No evidence of an intracellular lactate shuttle in rat skeletal muscle. Journal of Physiology, v. 541, n. 2, p. 569–574, 2002.
SAHLIN, Kent. Metabolic factors in fatigue. Sports Medicine, v. 13, n. 2, p. 99–107, 1992.
SAN-MILLÁN, I. et al. Is Lactate an Oncometabolite? Evidence Supporting a Role for Lactate in the Regulation of Transcriptional Activity of Cancer-Related Genes in MCF7 Breast Cancer Cells. Frontiers in Oncology, v. 9, art. 1536, 2019.
SAN-MILLÁN, I. et al. Metabolomics of Endurance Capacity in World Tour Professional Cyclists. Frontiers in Physiology, v. 11, art. 578, 2020.
SAN-MILLÁN, I.; BROOKS, G. A. Assessment of Metabolic Flexibility by Means of Measuring Blood Lactate, Fat, and Carbohydrate Oxidation Responses to Exercise in Professional Endurance Athletes and Less-Fit Individuals. Sports Medicine, v. 48, n. 2, p. 467–479, 2018.
SAN-MILLÁN, I.; BROOKS, G. A. Reexamining cancer metabolism: lactate production for carcinogenesis could be the purpose and explanation of the Warburg Effect. Carcinogenesis, v. 38, n. 2, p. 119–133, 2017.
SCHIAFFINO, Stefano; REGGIANI, Carlo. Fiber types in mammalian skeletal muscles. Physiological Reviews, v. 91, n. 4, p. 1447–1531, 2011.
SCHRAUWEN, P. et al. Effect of 2 weeks of endurance training on uncoupling protein 3 content in untrained human subjects. Acta Physiologica Scandinavica, v. 183, p. 273–280, 2005. DOI: 10.1111/j.1365-201X.2004.01393.x.
SEILER, K. S.; KJERLAND, G. Ø. Quantifying training intensity distribution in elite endurance athletes: is there evidence for an ‘optimal’ distribution? Scandinavian Journal of Medicine & Science in Sports, v. 16, n. 1, p. 49-56, 2006. DOI: 10.1111/j.1600-0838.2004.00418.x.
SEILER, S. What is best practice for training intensity and duration distribution in endurance athletes? International Journal of Sports Physiology and Performance, Champaign, v. 5, n. 3, p. 276-291, 2010.
SEILER, S. What is best practice for training intensity and duration distribution in endurance athletes? International Journal of Sports Physiology and Performance, v. 5, n. 3, p. 276-291, 2010.
SEILER, S.; HAUGEN, O.; KUFFEL, E. Autonomic recovery after exercise in trained athletes: intensity and duration effects. Medicine & Science in Sports & Exercise, v. 39, n. 8, p. 1366–1373, 2007. DOI: 10.1249/mss.0b013e318060f17d.
SEILER, S.; JØRANSON, K.; OLESEN, B. V.; HETLELID, K. J. Adaptations to aerobic interval training: interactive effects of exercise intensity and total work duration. Scandinavian Journal of Medicine & Science in Sports, v. 23, n. 1, p. 74-83, 2013. DOI: 10.1111/j.1600-0838.2011.01351.x.
SEILER, S.; KJERLAND, G. Ø. Quantifying training intensity distribution in elite endurance athletes: is there evidence for an “optimal” distribution? Scandinavian Journal of Medicine & Science in Sports, v. 16, n. 1, p. 49–56, 2006. DOI: 10.1111/j.1600-0838.2004.00418.x.
SEILER, S.; TØNNESSEN, E. Intervals, thresholds, and long slow distance: the role of intensity and duration in endurance training. Sportscience, v. 13, p. 32-53, 2009.
SEILER, Stephen. Low intensity training, durability and cardiac drift [vídeo]. YouTube. Disponível em: https://www.youtube.com/watch?v=3GXc474Hu5U. Acesso em: 22 set. 2026.
SONVEAUX, P. et al. Targeting lactate-fueled respiration selectively kills hypoxic tumor cells in mice. Journal of Clinical Investigation, v. 118, n. 12, p. 3930–3942, 2008.
STEWART, P. A. Modern quantitative acid-base chemistry. Canadian Journal of Physiology and Pharmacology, v. 61, n. 12, p. 1444–1461, 1983.
STOROSCHUK, K. L.; MORAN-MACDONALD, A.; GIBALA, M. J.; GURD, B. J. Much ado about Zone 2: a narrative review assessing the efficacy of Zone 2 training for improving mitochondrial capacity and cardiorespiratory fitness in the general population. Sports Medicine, v. 55, p. 1611–1624, 2025. DOI: 10.1007/s40279-025-02261-y.
STULTS-KOLEHMAINEN, M. A.; BARTHOLOMEW, J. B. Psychological stress impairs short-term muscular recovery from resistance exercise. Medicine & Science in Sports & Exercise, v. 44, n. 11, p. 2220-2227, 2012. DOI: 10.1249/MSS.0b013e31825f67a0.
STÖGG, T. L.; SPERLICH, B. Polarized training has greater impact on key endurance variables than threshold, high intensity, or high volume training. Frontiers in Physiology, Lausanne, v. 5, art. 33, 2014.
STÖGG, T. L.; SPERLICH, B. Polarized training has greater impact on key endurance variables than threshold, high intensity, or high volume training. Frontiers in Physiology, v. 5, art. 33, 2014.
STÖGGL, T. L.; SPERLICH, B. The training intensity distribution among well-trained and elite endurance athletes. Frontiers in Physiology, v. 6, art. 295, 2015. DOI: 10.3389/fphys.2015.00295.
STÖGGL, T.; SPERLICH, B. Polarized training has greater impact on key endurance variables than threshold, high intensity, or high volume training. Frontiers in Physiology, v. 5, art. 33, 2014. DOI: 10.3389/fphys.2014.00033.
TAKEDA, R. et al. Effect of endurance training and PGC-1α overexpression on calculated lactate production volume during exercise based on blood lactate concentration. Scientific Reports, v. 12, p. 1635, 2022.
THIRKETTLE-WATTS, D. et al. Redox basis of exercise physiology. 2020.
THOMAS, C.; BISHOP, D. J.; LAMBERT, K.; MERCIER, J.; BROOKS, G. A. Effects of acute and chronic exercise on sarcolemmal MCT1 and MCT4 contents in human skeletal muscles: current status. American Journal of Physiology-Regulatory, Integrative and Comparative Physiology, v. 302, n. 1, p. R1–R14, 2012. DOI: 10.1152/ajpregu.00250.2011.
THOMAS, Claire et al. Effects of acute and chronic exercise on sarcolemmal MCT1 and MCT4 contents in human skeletal muscles. American Journal of Physiology-Regulatory, Integrative and Comparative Physiology, v. 302, 2012.
TREFF, G. et al. Four different methods for the determination of the individual anaerobic threshold in endurance athletes: methodological and practical considerations. Sports, Basel, v. 7, n. 7, art. 163, 2019.
TØNNESSEN, E.; SANDBAKK, Ø.; SANDBAKK, S. B.; SEILER, S.; HAUGEN, T. Training session models in endurance sports: a Norwegian perspective on best practice recommendations. Sports Medicine, v. 54, p. 2935–2953, 2024. DOI: 10.1007/s40279-024-02067-4.
VAN LOON, L. J. C. et al. The effects of exercise training on mitochondrial and capillary growth in human skeletal muscle: a systematic review and meta-regression. 2024.
VAN RASSEL, C. R. et al. Is running power a useful metric? Quantifying training intensity and aerobic fitness using Stryd running power near the maximal lactate steady state. Sensors, v. 23, n. 21, 8729, 2023. DOI: 10.3390/s23218729.
WAKAYOSHI, K.; IKUTA, K.; YOSHIDA, T.; UDO, M.; MORITANI, T.; MUTŌ, Y.; MIYASHITA, M. Determination and validity of critical velocity as an index of swimming performance in the competitive swimmer. European Journal of Applied Physiology and Occupational Physiology, v. 64, n. 2, p. 153–157, 1992.
WARBURG, O. On the origin of cancer cells. Science, v. 123, n. 3191, p. 309–314, 1956.
WASSERMAN, K. et al. Anaerobic threshold and respiratory gas exchange during exercise. Journal of Applied Physiology, Bethesda, v. 35, n. 2, p. 236-243, 1973.
WASSERMAN, Karlman; BEAVER, William L.; WHIPP, Brian J. Gas exchange theory and the lactic acidosis (anaerobic) threshold. Circulation, v. 81, supl. II, p. II14–II30, 1990.
WESTON, Andrew R.; MYBURGH, Kathryn H.; LINDSAY, Francis H.; DENNIS, Steven C.; NOAKES, Timothy D.; HAWLEY, John A. Skeletal muscle buffering capacity and endurance performance after high-intensity interval training by well-trained cyclists. European Journal of Applied Physiology and Occupational Physiology, v. 75, n. 1, p. 7–13, 1997. DOI: 10.1007/s004210050119.
WINGO, J. E.; GANIO, M. S.; CURETON, K. J. Cardiovascular drift during heat stress: implications for exercise prescription. Exercise and Sport Sciences Reviews, v. 40, n. 2, p. 88–94, 2012. DOI: 10.1097/JES.0b013e31824c43af.
WOLAHAN, S. M. et al. Lactate supplementation in severe traumatic brain injured adults by primed constant infusion of sodium L-lactate. Journal of Neuroscience Research, v. 96, n. 4, p. 688–695, 2018.
WRIGHT, David C. et al. Exercise-induced mitochondrial biogenesis begins before the increase in muscle PGC-1α expression. Journal of Biological Chemistry, v. 282, 2007.
YOSHIDA, Y. et al. Negligible direct lactate oxidation in subsarcolemmal and intermyofibrillar mitochondria obtained from red and white rat skeletal muscle. Journal of Physiology, v. 582, n. 3, p. 1317–1335, 2007.
ZHANG, D. et al. Metabolic regulation of gene expression by histone lactylation. Nature, v. 574, n. 7779, p. 575–580, 2019.
ZHANG, L. et al. Lactate transported by MCT1 plays an active role in promoting mitochondrial biogenesis and enhancing TCA flux in skeletal muscle. Science Advances, v. 10, eadn4508, 2024.
ZHANG, T. et al. Lactate’s impact on immune cells in sepsis: unraveling the complex interplay. Frontiers in Immunology, v. 15, art. 1483400, 2024.
Referências complementares (Figuras complementares)
Referências adicionadas nesta revisão para fundamentar as figuras complementares; as demais citações das legendas constam da lista principal.
COYLE, E. F. Integration of the physiological factors determining endurance performance ability. Exercise and Sport Sciences Reviews, v. 23, p. 25–63, 1995.
GRASSI, B.; QUARESIMA, V. Near-infrared spectroscopy and skeletal muscle oxidative function in vivo in health and disease: a review from an exercise physiology perspective. Journal of Biomedical Optics, v. 21, n. 9, art. 091313, 2016.
JONES, A. M.; BURNLEY, M.; BLACK, M. I.; POOLE, D. C.; VANHATALO, A. The maximal metabolic steady state: redefining the ‘gold standard’. Physiological Reports, v. 7, n. 10, e14098, 2019.
MERRY, T. L.; RISTOW, M. Do antioxidant supplements interfere with skeletal muscle adaptation to exercise training? The Journal of Physiology, v. 594, n. 18, p. 5135–5147, 2016.
ROSSITER, H. B. Exercise: kinetic considerations for gas exchange. Comprehensive Physiology, v. 1, n. 1, p. 203–244, 2011.
SPRAGG, J.; LEO, P.; SWART, J. The relationship between physiological characteristics and durability in male professional cyclists. Medicine & Science in Sports & Exercise, v. 55, n. 1, p. 133–140, 2023.